

|
1 komplet (10 bočica)
| Količina: | |
|---|---|
▎ Kisspeptin struktura
Izvor: PubChem |
Slijed:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF Molekularna formula: C 258H 401N 79O78 Molekulska težina: 5857 g/mol PubChem CID:71306396 Sinonimi: Protein KISS-1;Kisspeptins |
▎ Kisspeptina Istraživanje
Molecular Background
Kisspeptin-10 (KP-10) je C-terminalni fragment od 10 aminokiselina prekursora kisspeptina koji potiče od KISS1. Njegova aminokiselinska sekvenca je Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2), a vezuje se za G protein spojen receptor KISS1R. PubChem navodi ljudski Kisspeptin-10 pod CID 25240297, sa molekulskom formulom C63H83N17O14 i molekulskom težinom od približno 1302,4 g/mol.[1,8]
Napredak istraživanja
Zhangsong Wu i kolege su odredili krio-EM strukture KISS1R-Gq i KISS1R-Gi kompleksa vezanih za sintetički agonist TAK448, zajedno sa KISS1R-Gq kompleksom vezanim za endogeni KP54. Funkcionalni testovi u istoj studiji pokazali su da KISS1R može da se poveže sa Gi/o stazom pored utvrđenog puta Gq/11. Autori su izvijestili o strukturnim razlikama u ekstracelularnim i intracelularnim petljama receptora i u interfejsu Gα-podjedinice koje mogu doprinijeti selektivnosti spajanja G-proteina. Ova strukturna studija koristila je KP54 i TAK448 umjesto KP-10 kao vezane ligande.[2]
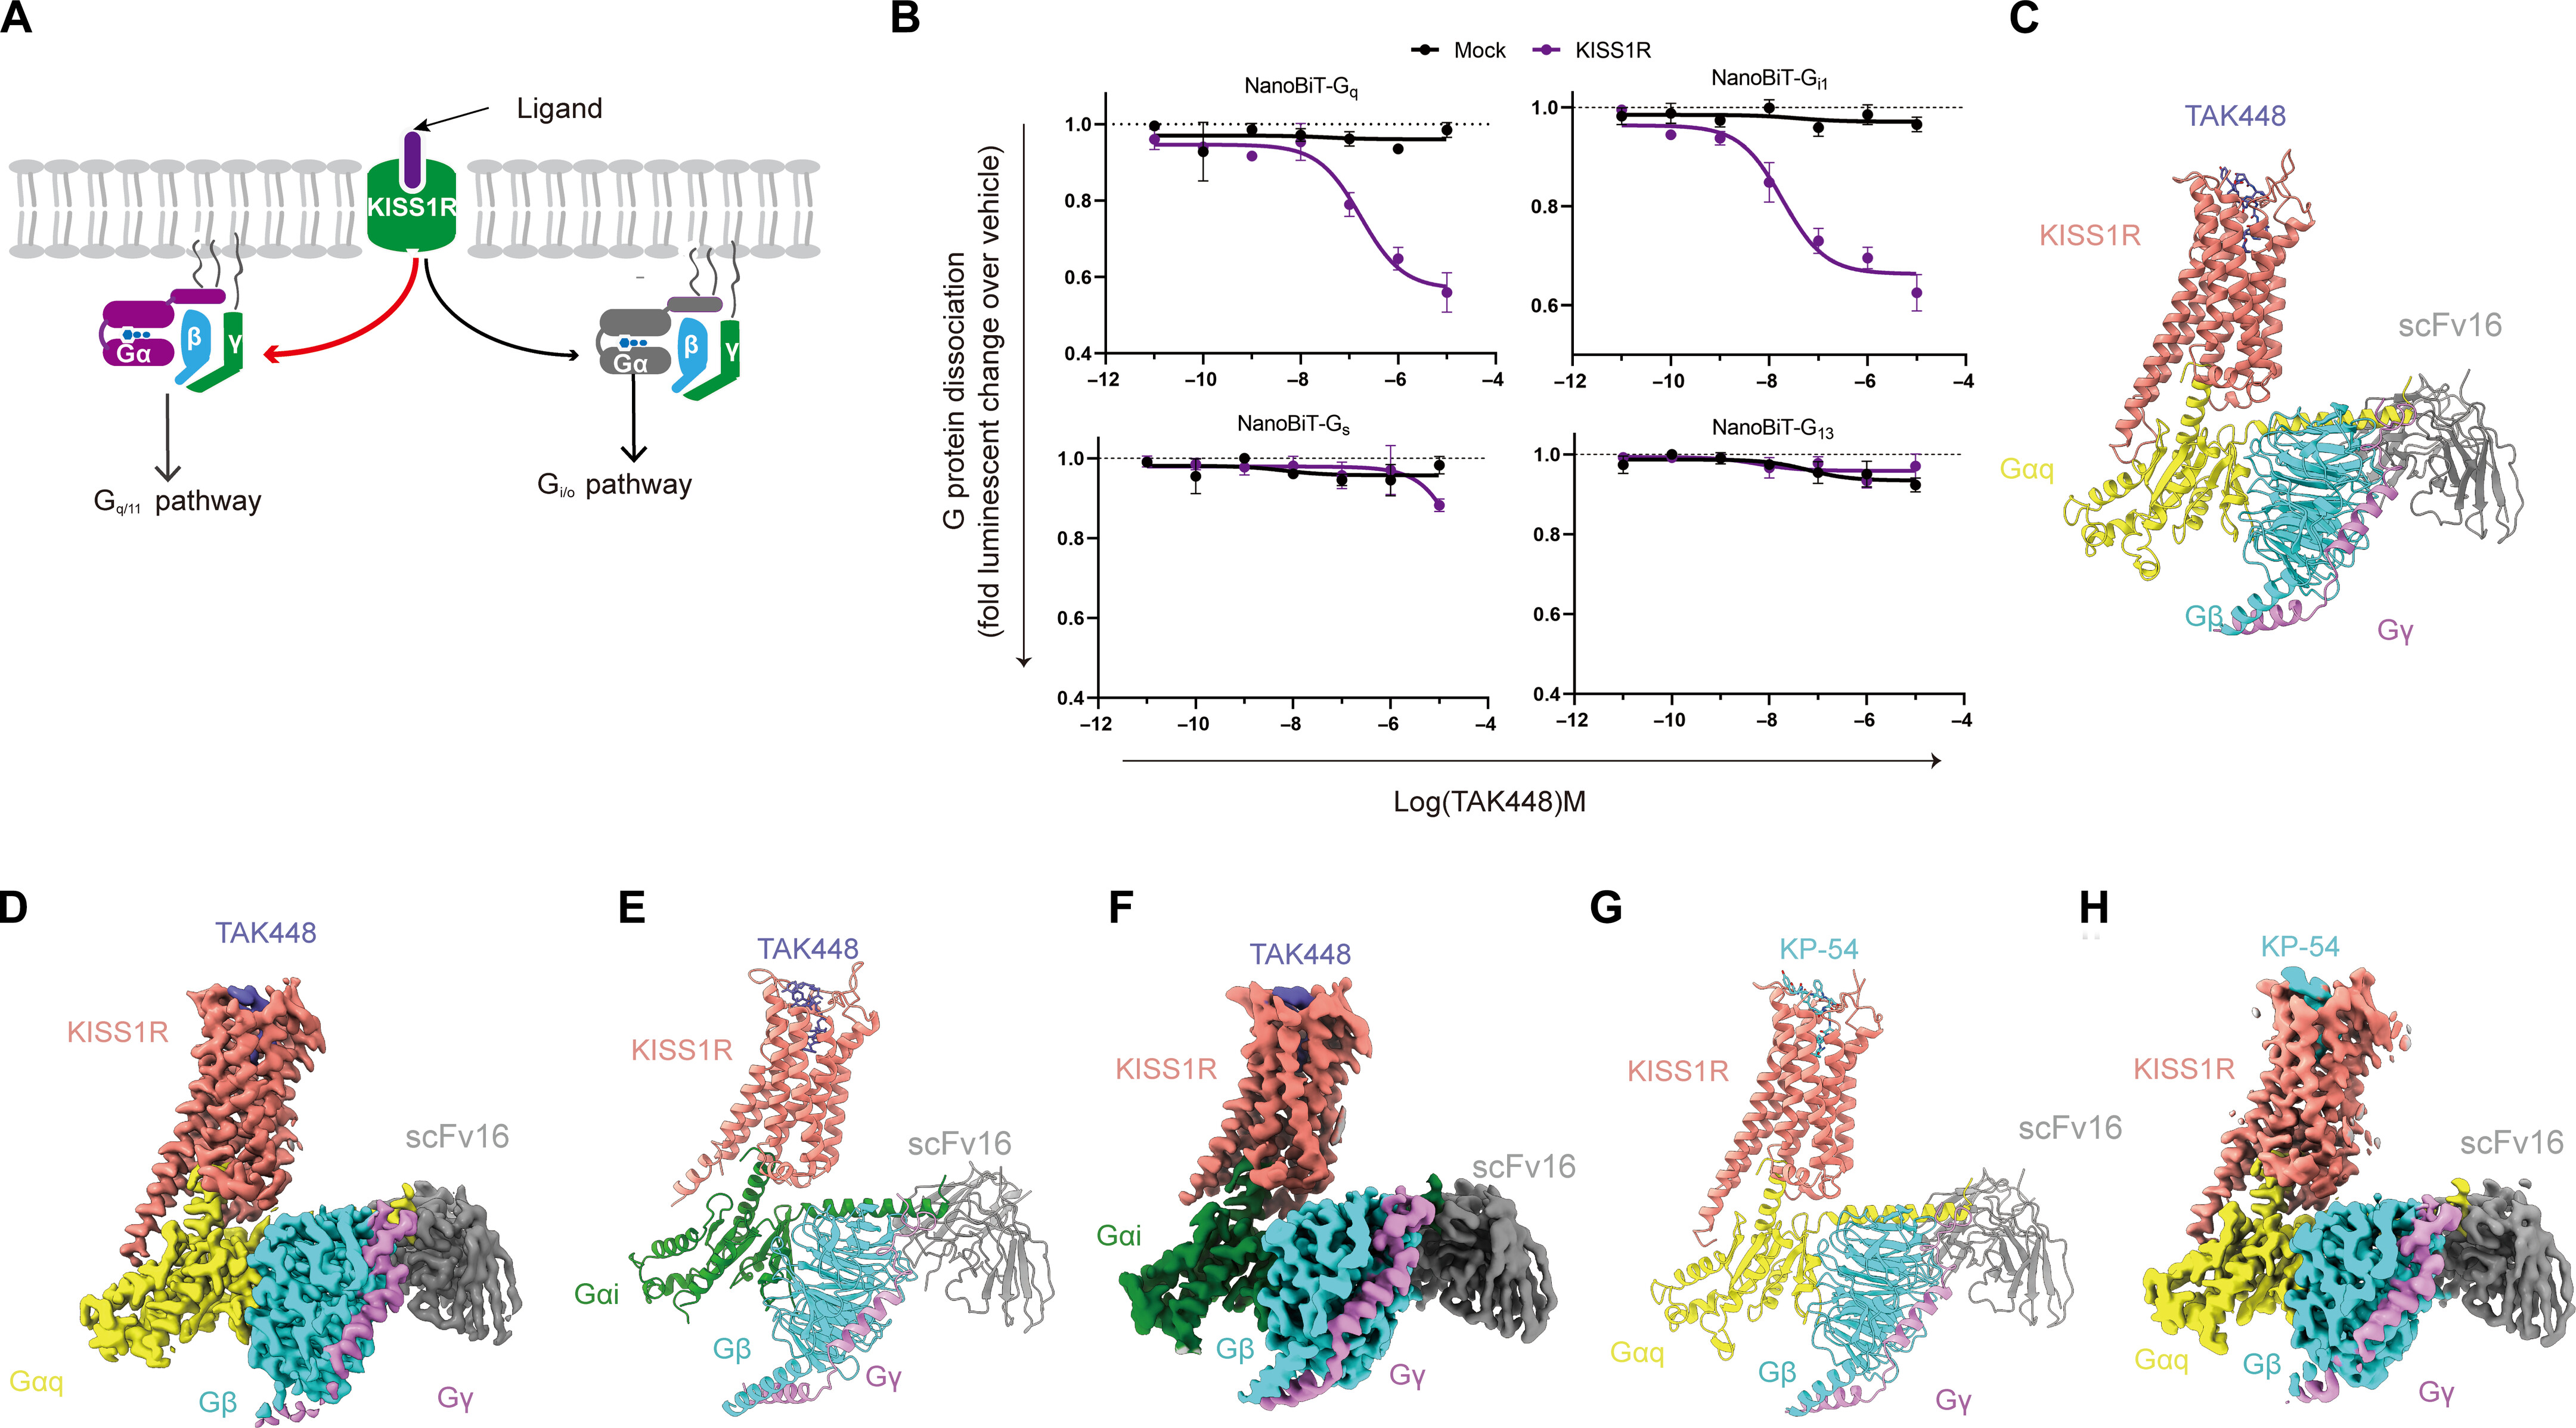
Fig1. Cryo-EM strukture proteinskih kompleksa KISS1R-G prikazane sa TAK448 i KP54 u citiranoj studiji.[2]
(A) Šematski prikaz spajanja KISS1R G-proteina ispitanog u izvornoj studiji. (B) NanoBiT testovi disocijacije G-proteina za naznačene članove G-proteina nakon izlaganja TAK448. (CH) Cryo-EM modeli i mape kompleksa TAK448-KISS1R-Gq, TAK448-KISS1R-Gi i KP54-KISS1R-Gq. Eksperimentalni uslovi i statistički detalji su navedeni u originalnoj publikaciji.[2]
Jenny Clarkson i Allan Herbison proučavali su postnatalni razvoj populacija neurona kisspeptina i njihove projekcije na GnRH neurone kod miševa. Koristeći antiserum podignut protiv mišjeg kisspeptina-10, oni su identificirali kisspeptin-imunoreaktivne populacije u anteroventralnoj periventrikularnoj/preoptičkoj periventrikularnoj regiji, dorzomedijalnom hipotalamusu i arkuatnom jezgru. Autori su prijavili izraženu žensku dominantnu razliku u broju neurona AVPV/PeN kisspeptina i uočili bliske apozicije između kisspeptinskih vlakana i GnRH neuronskih ćelija koje se pojavljuju tokom postnatalnog razvoja. Ovaj rad je karakterizirao ekspresiju i razvoj endogenih neurona prije nego efekte KP-10 materijala koji se isporučuje spolja.[3]
Alexander S. Kauffman i kolege su koristili odrasle miševe divljeg tipa (WT) i GPR54/KISS1R nokaut (KO) miševa da ispitaju ulogu signalizacije kisspeptin-receptora u seksualno dimorfnom ponašanju i neuralnom razvoju. Muškarci i ženke zamijenjeni hormonima GPR54 KO zadržali su spolno tipično kopulativno ponašanje, dok su razlike uočene u preferencijama olfaktornog partnera i nekoliko seksualno dimorfnih neuralnih osobina. Autori su zaključili da GPR54 signalizacija nije bila potrebna za kopulativno ponašanje odraslih u korištenim uvjetima zamjene hormona, ali je bila uključena u razvoj odabranih spolno dimorfnih osobina.[4]
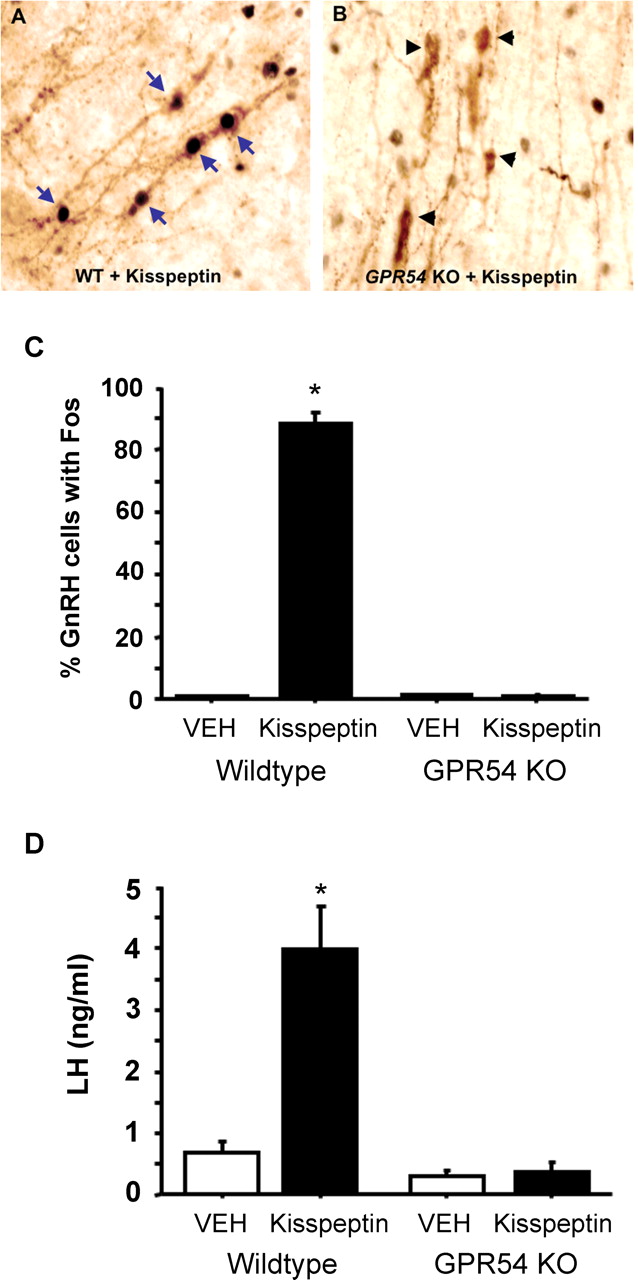
Fig2. GnRH-neuron Fos imunoreaktivnost i mjerenja LH u plazmi prijavljena nakon intracerebroventrikularnog izlaganja kisspeptinu kod muških miševa WT i GPR54 KO.[4]
*p < 0,05 u odnosu na WT grupu tretiranu vozilom, kao što je navedeno u originalnoj studiji.[4]
Oscar González-Flores i kolege ispitivali su intracerebroventrikularnu izloženost kisspeptinu kod pacova sa ovariektomijom napunjenih estradiol benzoatom. Autori su mjerili kvocijent lordoze i intenzitet refleksa lordoze, a zatim su koristili KISS1R antagonist Kiss-234, antagonist progesteronskih receptora RU486 i antid antagonista GnRH-1 receptora da ispitaju uključenost receptora. Izloženost kisspeptinu bila je povezana sa većim mjerenjima lordoze u modelu pacova, dok je antagonistički tretman smanjio odgovor u odabranim vremenskim tačkama. Nalazi su podržali uključenost signalizacije KISS1R, progesteron-receptora i GnRH-receptora u uslovima studije.[5]
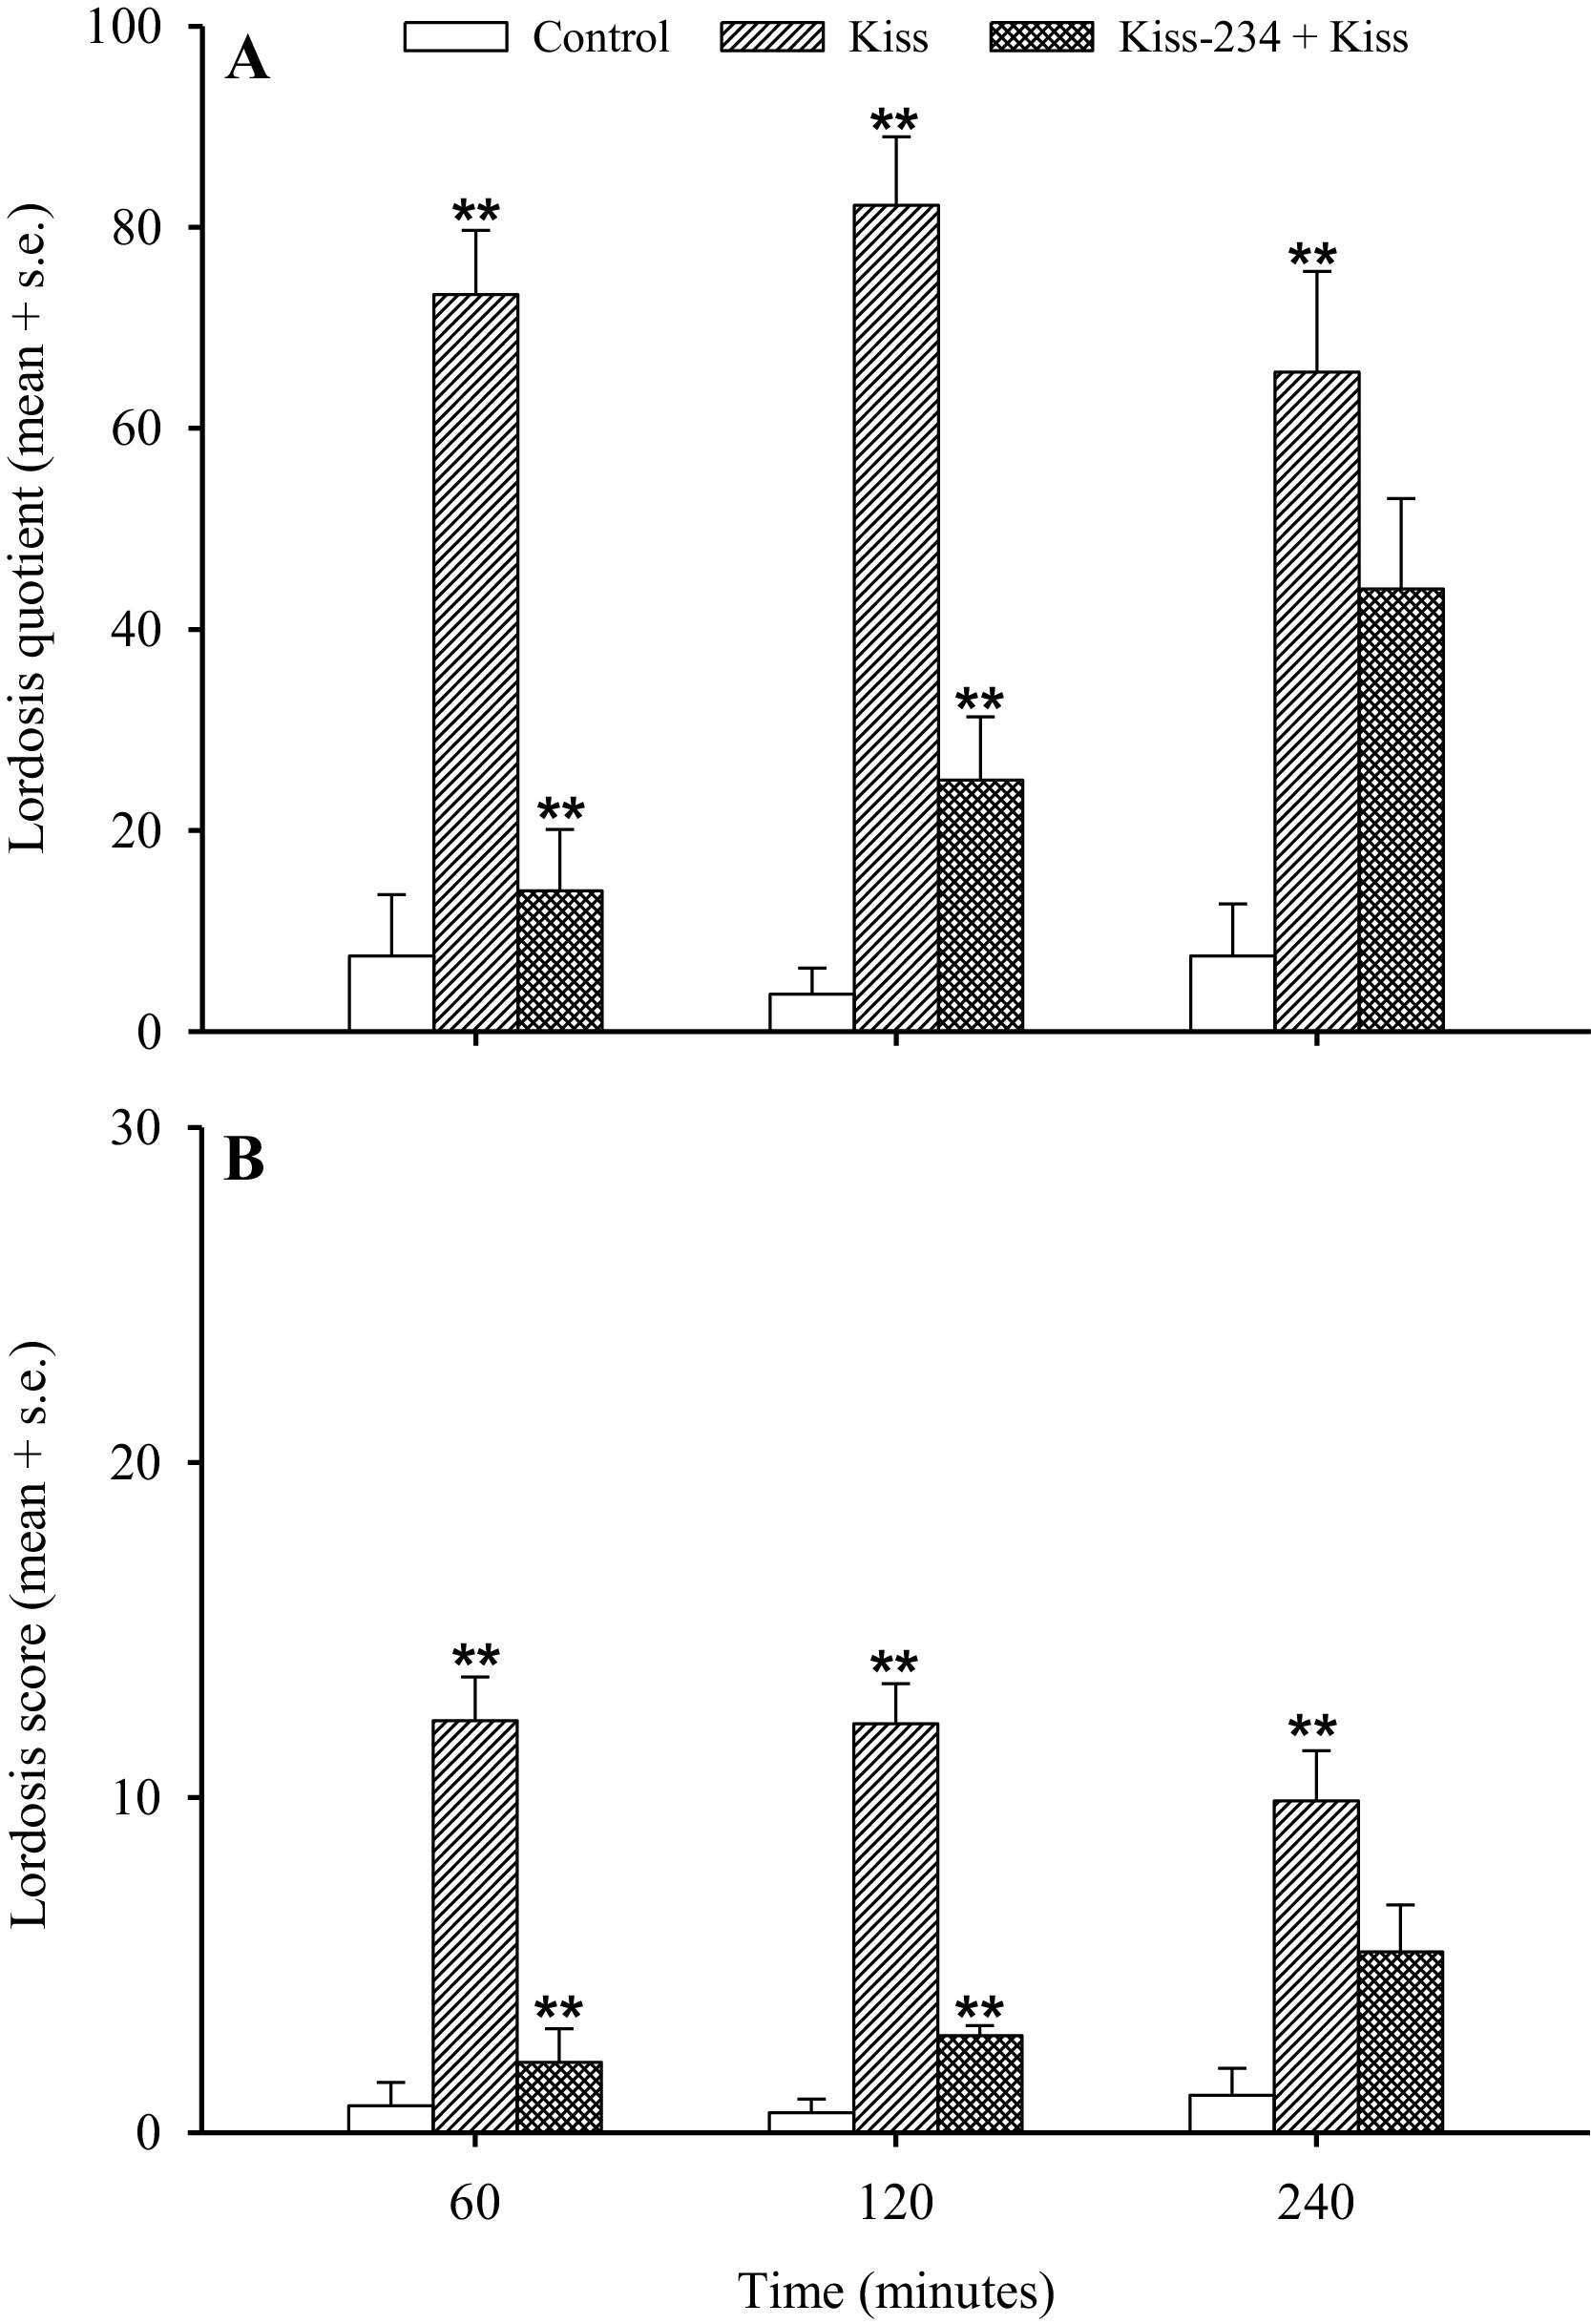
Fig3. Mjerenja lordoze prijavljena nakon izlaganja kisspeptinu sa ili bez KISS1R antagonista Kiss-234 kod pacova sa ovariektomijom.[5]
Izvorna studija je upoređivala kisspeptin i kontrolne grupe i procijenila učinak prethodnog tretmana Kiss-234 na kvocijent lordoze i intenzitet refleksa lordoze. Veličine grupa, doze ispitivanja, vremenske tačke i statistička poređenja prikazani su u originalnoj publikaciji.[5]
Suvi T. Ruohonen i kolege su generisali miševe sa selektivnom delecijom Gpr54/Kiss1r oocita ukrštanjem linije Gdf9-Cre sa linijom Gpr54 LoxP. Dobijeni OoGpr54−/− miševi su podvrgnuti fenotipskim, histološkim, hormonskim i molekularnim analizama u nekoliko postnatalnih dobi. Autori su prijavili normalan početak puberteta, ali progresivnu ovulacijsku neuspjeh s godinama, uključujući histološke promjene i izmijenjene profile ekspresije gena jajnika. Budući da je ova studija koristila deleciju receptora umjesto primjene peptida kisspeptina, njeni nalazi se tiču biološke uloge KISS1R signalizacije jajnika i nisu direktna studija izloženosti KP-10.[6]
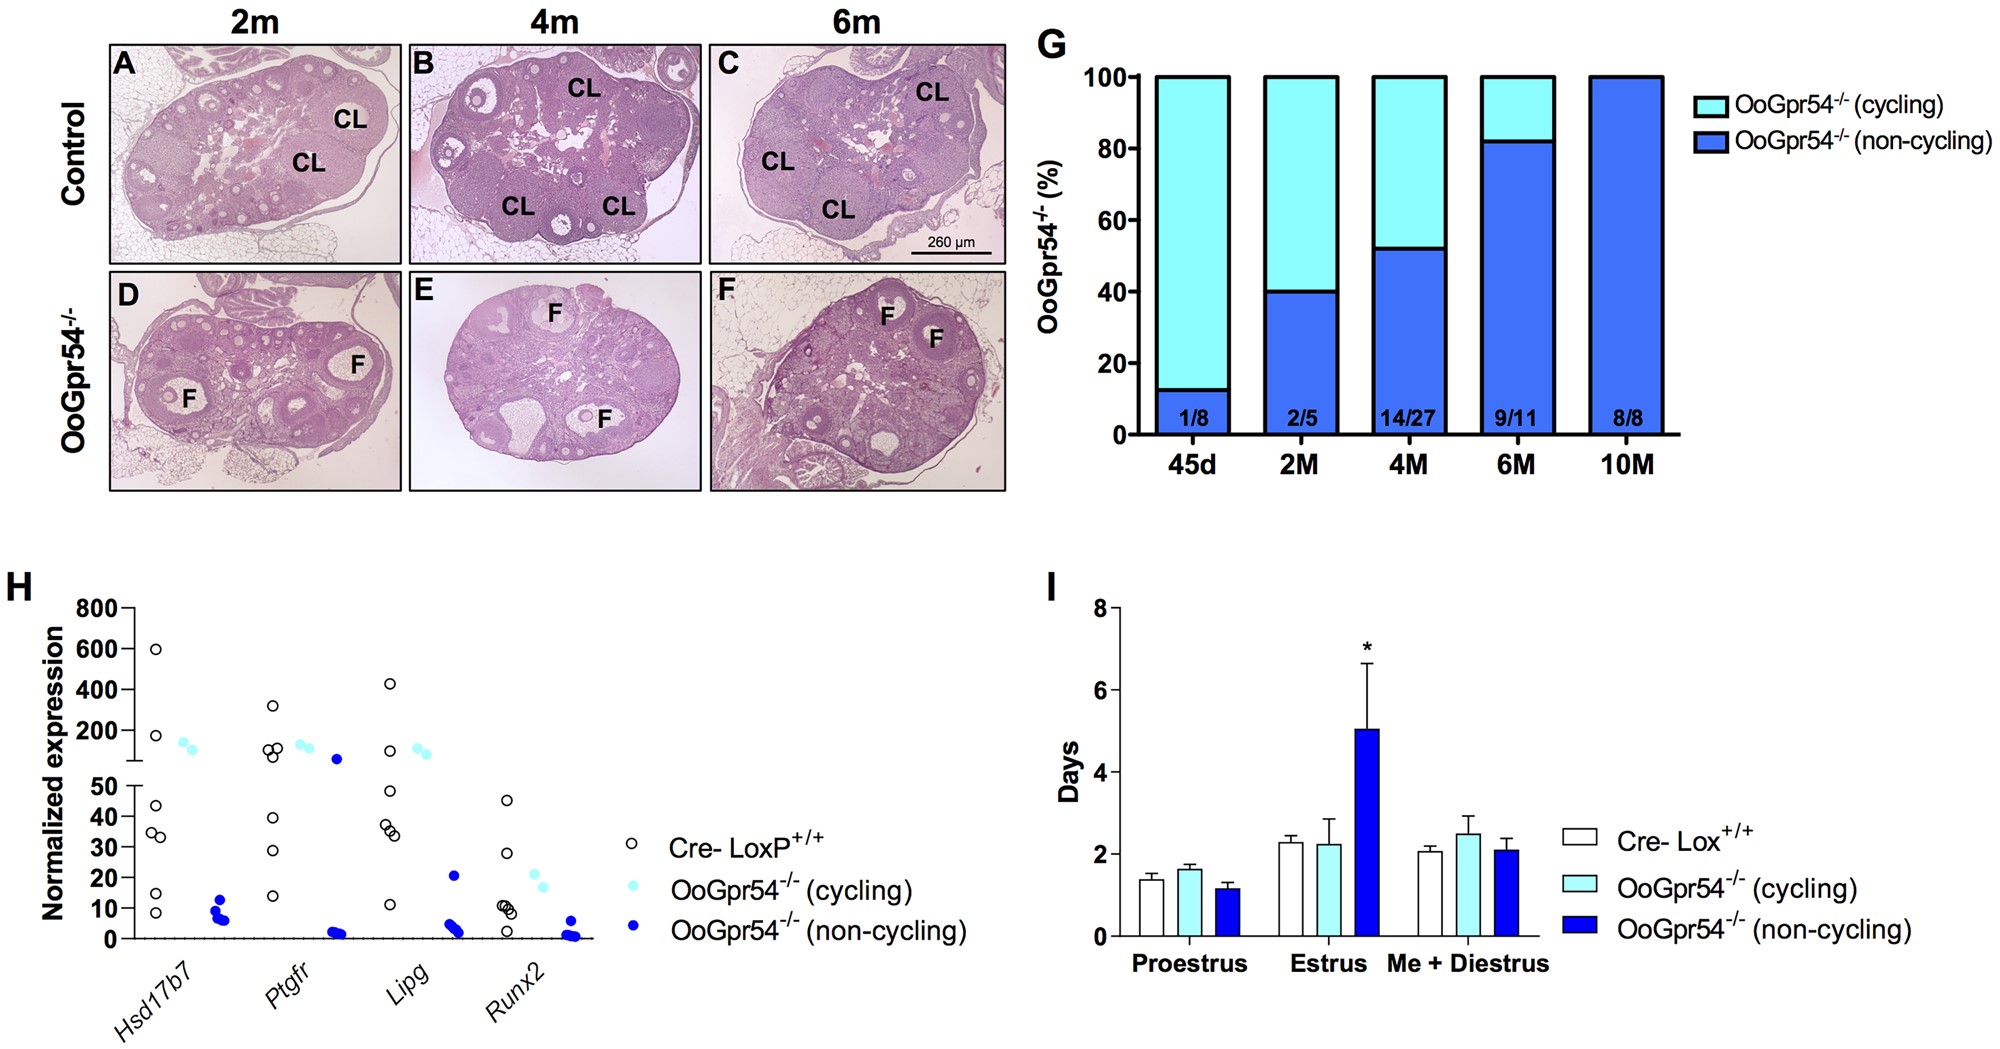
Fig4. Progresivne ovulatorne promjene prijavljene kod miševa sa delecijom Gpr54/Kiss1r selektivnog oocita.[6]
Paneli (AF) pokazuju reprezentativnu histologiju jajnika kontrolnih i OoGpr54−/− miševa u naznačenim godinama. Panel (G) sumira udio OoGpr54−/− ženki bez žutog tijela, panel (H) predstavlja odabrane nalaze sekvenciranja RNK, a panel (I) prikazuje mjerenja estrusnog ciklusa. Veličina grupa i statistički metodi su navedeni u originalnoj publikaciji.[6]
Ograničenja istraživanja
Gore sažete studije ne procjenjuju sve isti molekularni oblik kisspeptina. Prekursor KISS1 može se preraditi u nekoliko bioaktivnih peptida, uključujući KP54, KP14, KP13 i KP10, koji dijele isti C-terminalni dekapeptid, ali se razlikuju po dužini i farmakokinetičkom ponašanju. Wu studija je koristila KP54 i TAK448, dok je drugi citirani rad ispitivao endogenu signalizaciju kisspeptina, modele nokauta receptora ili preparate kisspeptina koji nisu dizajnirani kao direktna poređenja komercijalnog materijala za istraživanje KP-10.[2,3,4,6,7].
KISS1R je receptor povezan sa proteinom klase AG i najpoznatiji je po Gq/11 signalizaciji, iako nedavni strukturalni i funkcionalni radovi takođe podržavaju spajanje na Gi/o pod specifičnim eksperimentalnim uslovima.[2] Razlike u izoformi peptida, ekspresiji receptora, vrsti, kontekstu tkiva, putu izlaganja i eksperimentalnom dizajnu mogu uticati na uočeni odgovor. Rezultati sa modela miša i pacova bi stoga trebali ostati vezani za tačan model peptida, receptora i eksperimentalne uslove opisane u svakoj publikaciji.[2,7]
COCER Peptides predstavlja Kisspeptin-10 isključivo za laboratorijska istraživanja i analitičku upotrebu. Nije namijenjeno za ljudsku ili veterinarsku upotrebu. Gore opisano istraživanje sažima nalaze objavljene u publikacijama trećih strana i nije izjava o kliničkoj djelotvornosti, sigurnosti, dijagnozi, liječenju, prevenciji ili uputama za upotrebu.


