

|
1 κιτ (10 φιαλίδια)
| Ποσότητα: | |
|---|---|
▎ κισπεπτίνης Δομή
Πηγή: PubChem |
Ακολουθία:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF Μοριακός Τύπος: C 258H 401N 79O78 Μοριακό Βάρος: 5857 g/mol PubChem CID: 71306396 Συνώνυμα: Protein KISS-1;Kisspeptins |
▎ Kisspeptin Research
Μοριακό υπόβαθρο
Η κισπεπτίνη-10 (KP-10) είναι ένα Ο-τελικό θραύσμα 10-αμινοξέων του προδρόμου κισπεπτίνης που προέρχεται από το KISS1. Η αλληλουχία αμινοξέων του είναι Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2) και δεσμεύει τον συζευγμένο με πρωτεΐνη G υποδοχέα KISS1R. Το PubChem καταγράφει την ανθρώπινη Kisspeptin-10 με CID 25240297, με μοριακό τύπο C63H83N17O14 και μοριακό βάρος περίπου 1302,4 g/mol.[1,8]
Πρόοδος έρευνας
Ο Zhangsong Wu και οι συνεργάτες του προσδιόρισαν τις κρυο-ΕΜ δομές των συμπλεγμάτων KISS1R-Gq και KISS1R-Gi που συνδέονται με τον συνθετικό αγωνιστή TAK448, μαζί με ένα σύμπλεγμα KISS1R-Gq συνδεδεμένο με την ενδογενή KP54. Λειτουργικές δοκιμασίες στην ίδια μελέτη έδειξαν ότι το KISS1R μπορεί να συζευχθεί με την οδό Gi/o επιπλέον της καθιερωμένης οδού Gq/11. Οι συγγραφείς ανέφεραν δομικές διαφορές στους εξωκυτταρικούς και ενδοκυτταρικούς βρόχους υποδοχέα και στη διεπιφάνεια Gα-υπομονάδας που μπορεί να συμβάλλουν στην επιλεκτικότητα σύζευξης G-πρωτεΐνης. Αυτή η δομική μελέτη χρησιμοποίησε KP54 και TAK448 αντί KP-10 ως δεσμευμένους συνδέτες.[2]
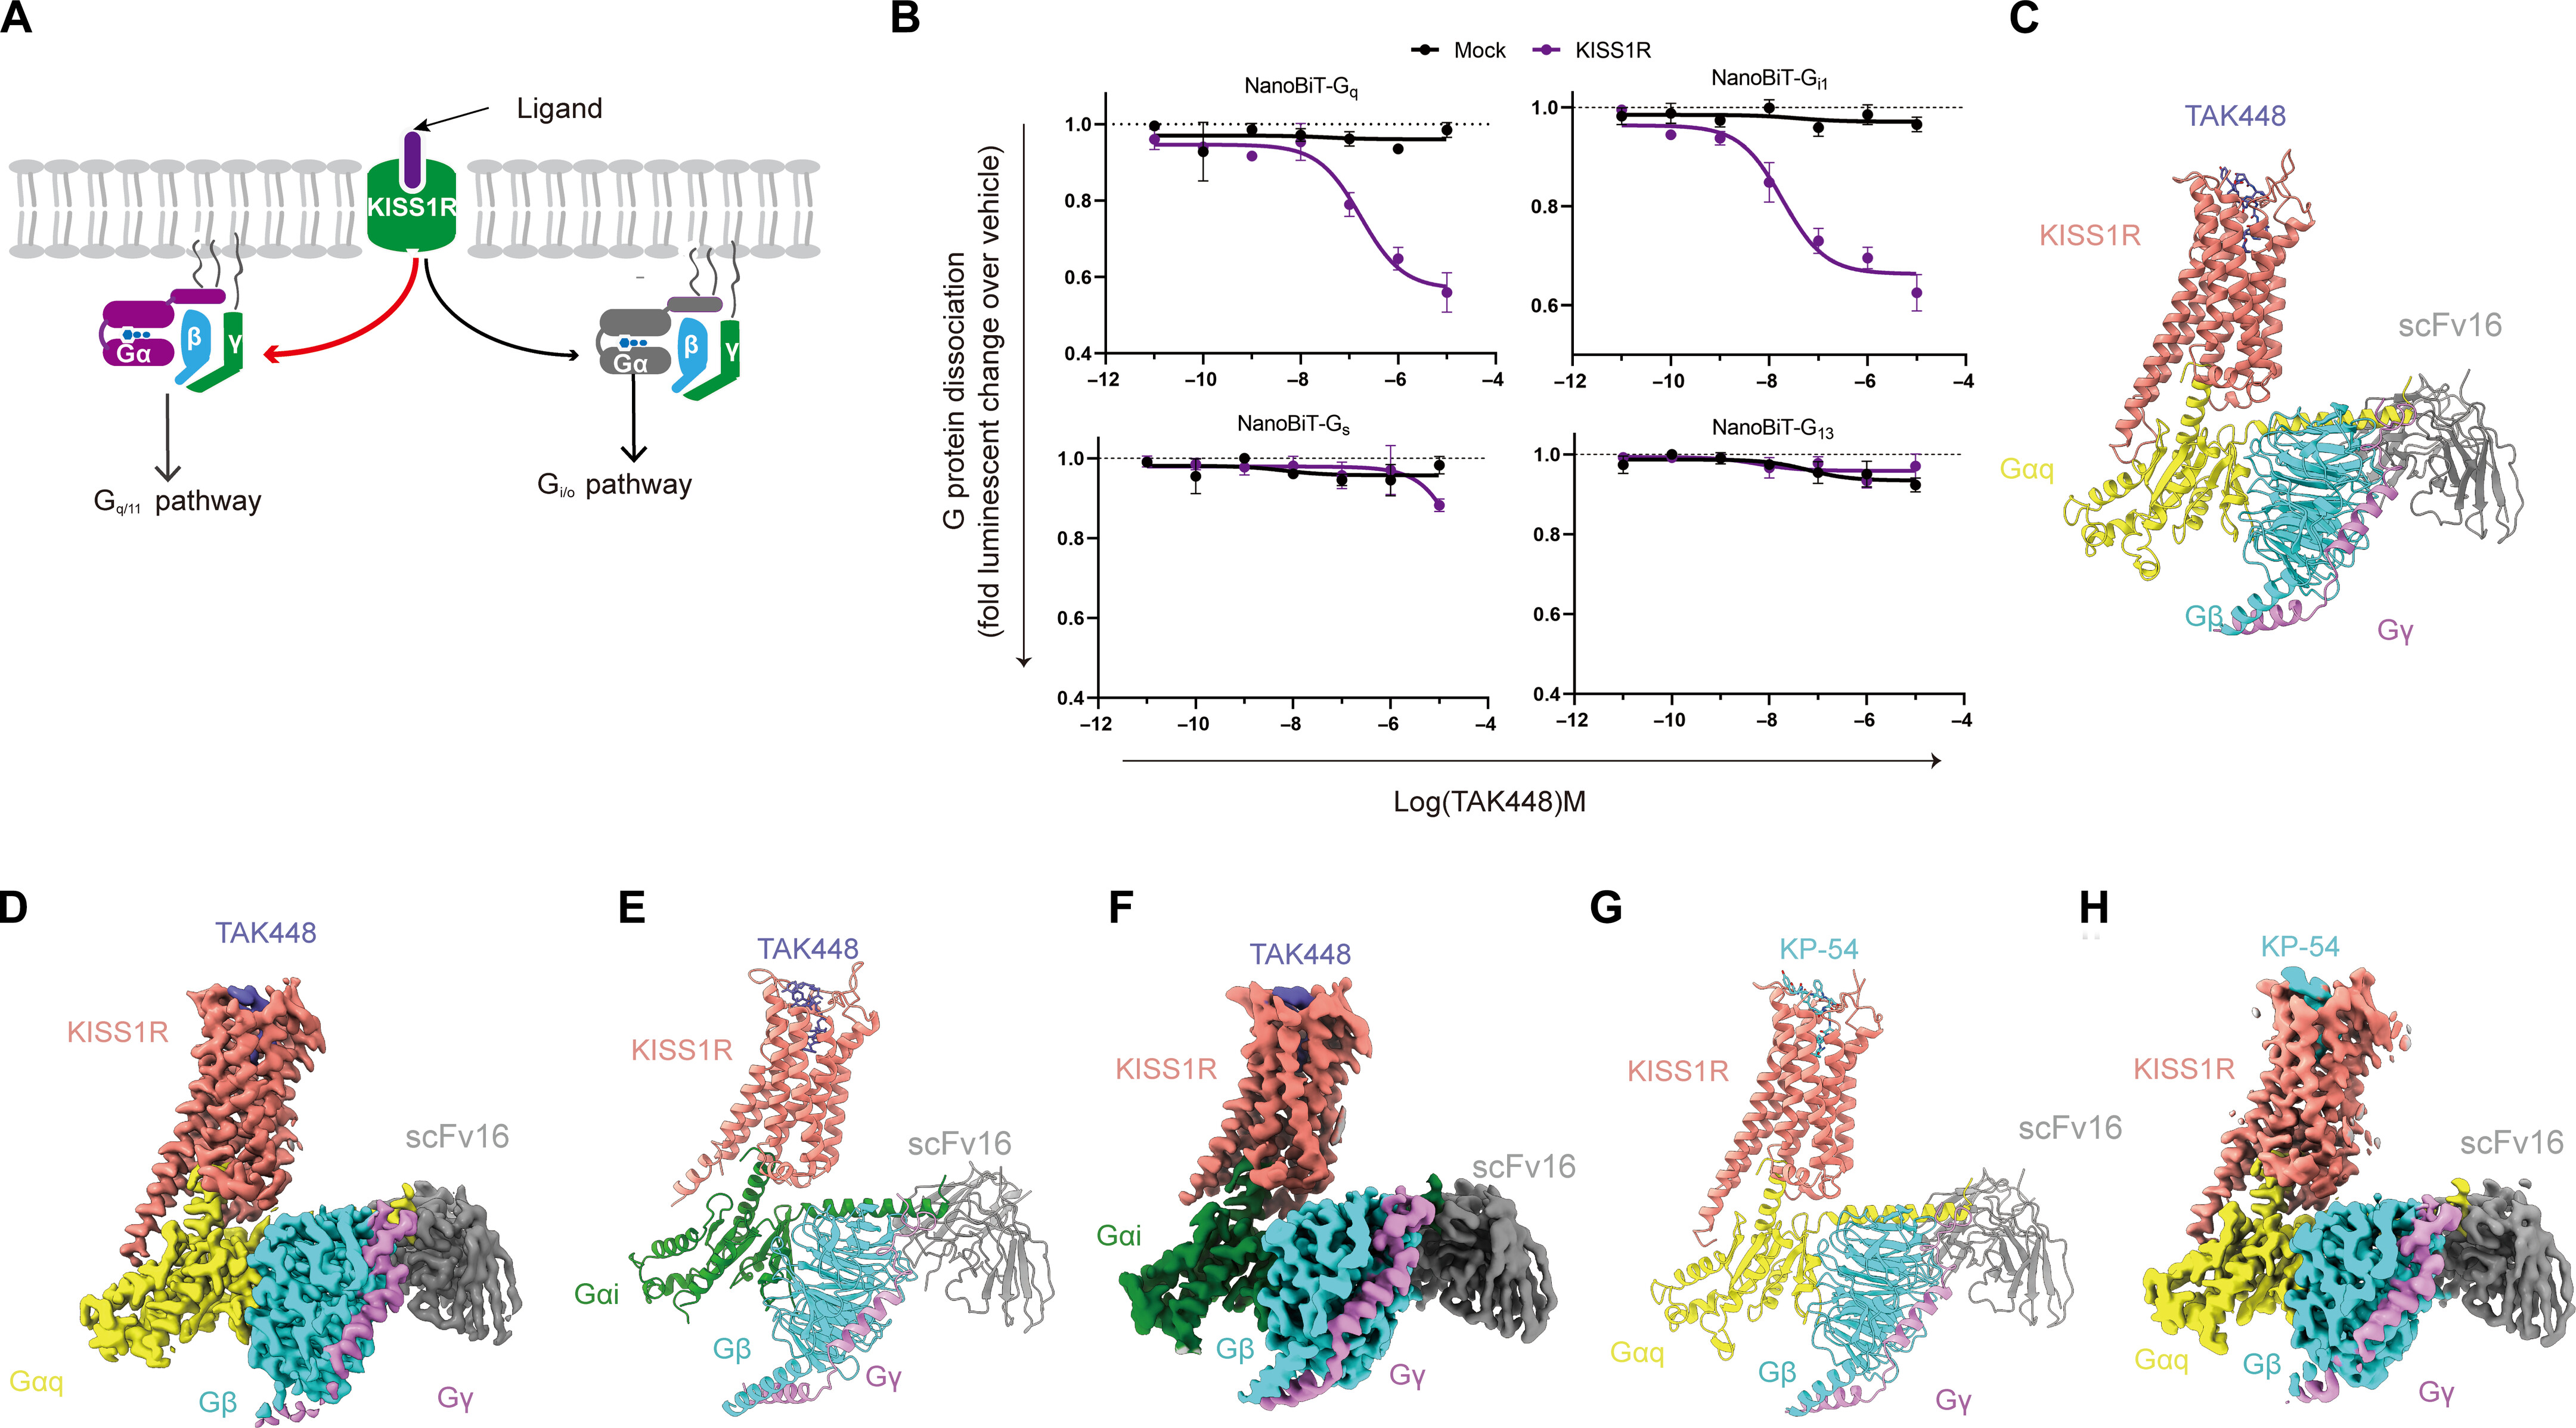
Εικ1. Οι δομές κρυο-ΕΜ συμπλεγμάτων πρωτεΐνης KISS1R-G αναφέρθηκαν με TAK448 και KP54 στην αναφερόμενη μελέτη.[2]
(Α) Σχηματική αναπαράσταση της σύζευξης G-πρωτεΐνης KISS1R που εξετάστηκε στη μελέτη πηγής. (Β) Δοκιμασίες διάστασης G-πρωτεΐνης NanoBiT για τα υποδεικνυόμενα μέλη G-πρωτεΐνης μετά από έκθεση σε TAK448. (CH) Μοντέλα Cryo-EM και χάρτες συμπλεγμάτων TAK448-KISS1R-Gq, TAK448-KISS1R-Gi και KP54-KISS1R-Gq. Οι πειραματικές συνθήκες και οι στατιστικές λεπτομέρειες αναφέρονται στην αρχική δημοσίευση.[2]
Οι Jenny Clarkson και Allan Herbison μελέτησαν τη μεταγεννητική ανάπτυξη πληθυσμών νευρώνων κισπεπτίνης και τις προβολές τους στους νευρώνες GnRH σε ποντίκια. Χρησιμοποιώντας έναν αντιορό που αναπτύχθηκε κατά της κισπεπτίνης-10 ποντικού, εντόπισαν πληθυσμούς ανοσοαντιδραστικούς με κισπεπτίνη στην προσκοιλιακή περικοιλιακή/προοπτική περικοιλιακή περιοχή, στον ραχιαίο υποθάλαμο και στον τοξοειδή πυρήνα. Οι συγγραφείς ανέφεραν μια αξιοσημείωτη κυρίαρχη διαφορά στις γυναίκες στους αριθμούς των νευρώνων κισπεπτίνης AVPV/PeN και παρατήρησαν στενές συσχετίσεις μεταξύ των ινών κισπεπτίνης και των κυτταρικών σωμάτων νευρώνων GnRH που αναδύονται κατά τη μεταγεννητική ανάπτυξη. Αυτή η εργασία χαρακτήρισε την ενδογενή νευρωνική έκφραση και ανάπτυξη παρά τις επιδράσεις ενός υλικού KP-10 που παρέχεται εξωτερικά.[3]
Ο Alexander S. Kauffman και οι συνεργάτες του χρησιμοποίησαν ενήλικα ποντίκια άγριου τύπου (WT) και GPR54/KISS1R knockout (KO) για να εξετάσουν το ρόλο της σηματοδότησης του υποδοχέα κισπεπτίνης στη σεξουαλικά διμορφική συμπεριφορά και τη νευρική ανάπτυξη. Τα αρσενικά και τα θηλυκά GPR54 KO που αντικατέστησαν την ορμόνη διατήρησαν την τυπική σεξουαλική συζυγική συμπεριφορά, ενώ παρατηρήθηκαν διαφορές στην προτίμηση του οσφρητικού συντρόφου και σε αρκετά σεξουαλικά διμορφικά νευρικά χαρακτηριστικά. Οι συγγραφείς κατέληξαν στο συμπέρασμα ότι η σηματοδότηση GPR54 δεν απαιτείται για τη συζυγική συμπεριφορά ενηλίκων υπό τις συνθήκες ορμονικής υποκατάστασης που χρησιμοποιήθηκαν, αλλά εμπλέκεται στην ανάπτυξη επιλεγμένων σεξουαλικά διμορφικών χαρακτηριστικών.[4]
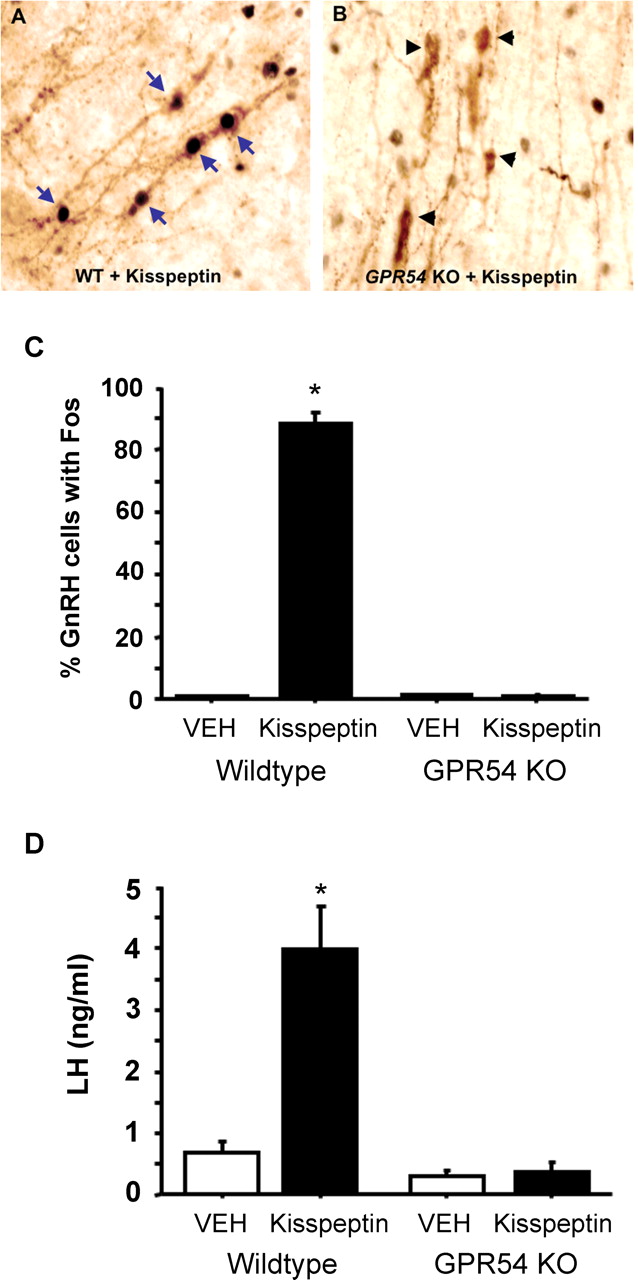
Εικ2. Η ανοσοαντιδραστικότητα του GnRH-νευρώνα Fos και οι μετρήσεις της LH στο πλάσμα αναφέρθηκαν μετά από έκθεση στην ενδοεγκεφαλοκοιλιακή κισπεπτίνη σε αρσενικά ποντίκια WT και GPR54 KO.[4]
*p < 0,05 έναντι της ομάδας WT που υποβλήθηκε σε θεραπεία με όχημα, όπως αναφέρθηκε στην αρχική μελέτη.[4]
Ο Oscar González-Flores και οι συνεργάτες του εξέτασαν την ενδοεγκεφαλοκοιλιακή έκθεση σε κισπεπτίνη σε αρουραίους που είχαν υποβληθεί σε ωοθηκεκτομή που είχαν προετοιμαστεί με βενζοϊκή οιστραδιόλη. Οι συγγραφείς μέτρησαν το πηλίκο λόρδωσης και την ένταση του αντανακλαστικού λόρδωσης και στη συνέχεια χρησιμοποίησαν τον ανταγωνιστή KISS1R Kiss-234, τον ανταγωνιστή του υποδοχέα προγεστερόνης RU486 και τον ανταγωνιστή του υποδοχέα GnRH-1 για να εξετάσουν τη συμμετοχή του υποδοχέα. Η έκθεση στην κισπεπτίνη συσχετίστηκε με υψηλότερες μετρήσεις λόρδωσης στο μοντέλο αρουραίου, ενώ η προκαταρκτική θεραπεία με ανταγωνιστή μείωσε την ανταπόκριση σε επιλεγμένα χρονικά σημεία. Τα ευρήματα υποστήριξαν τη συμμετοχή του KISS1R, του υποδοχέα προγεστερόνης και της σηματοδότησης του υποδοχέα GnRH υπό τις συνθήκες της μελέτης.[5]
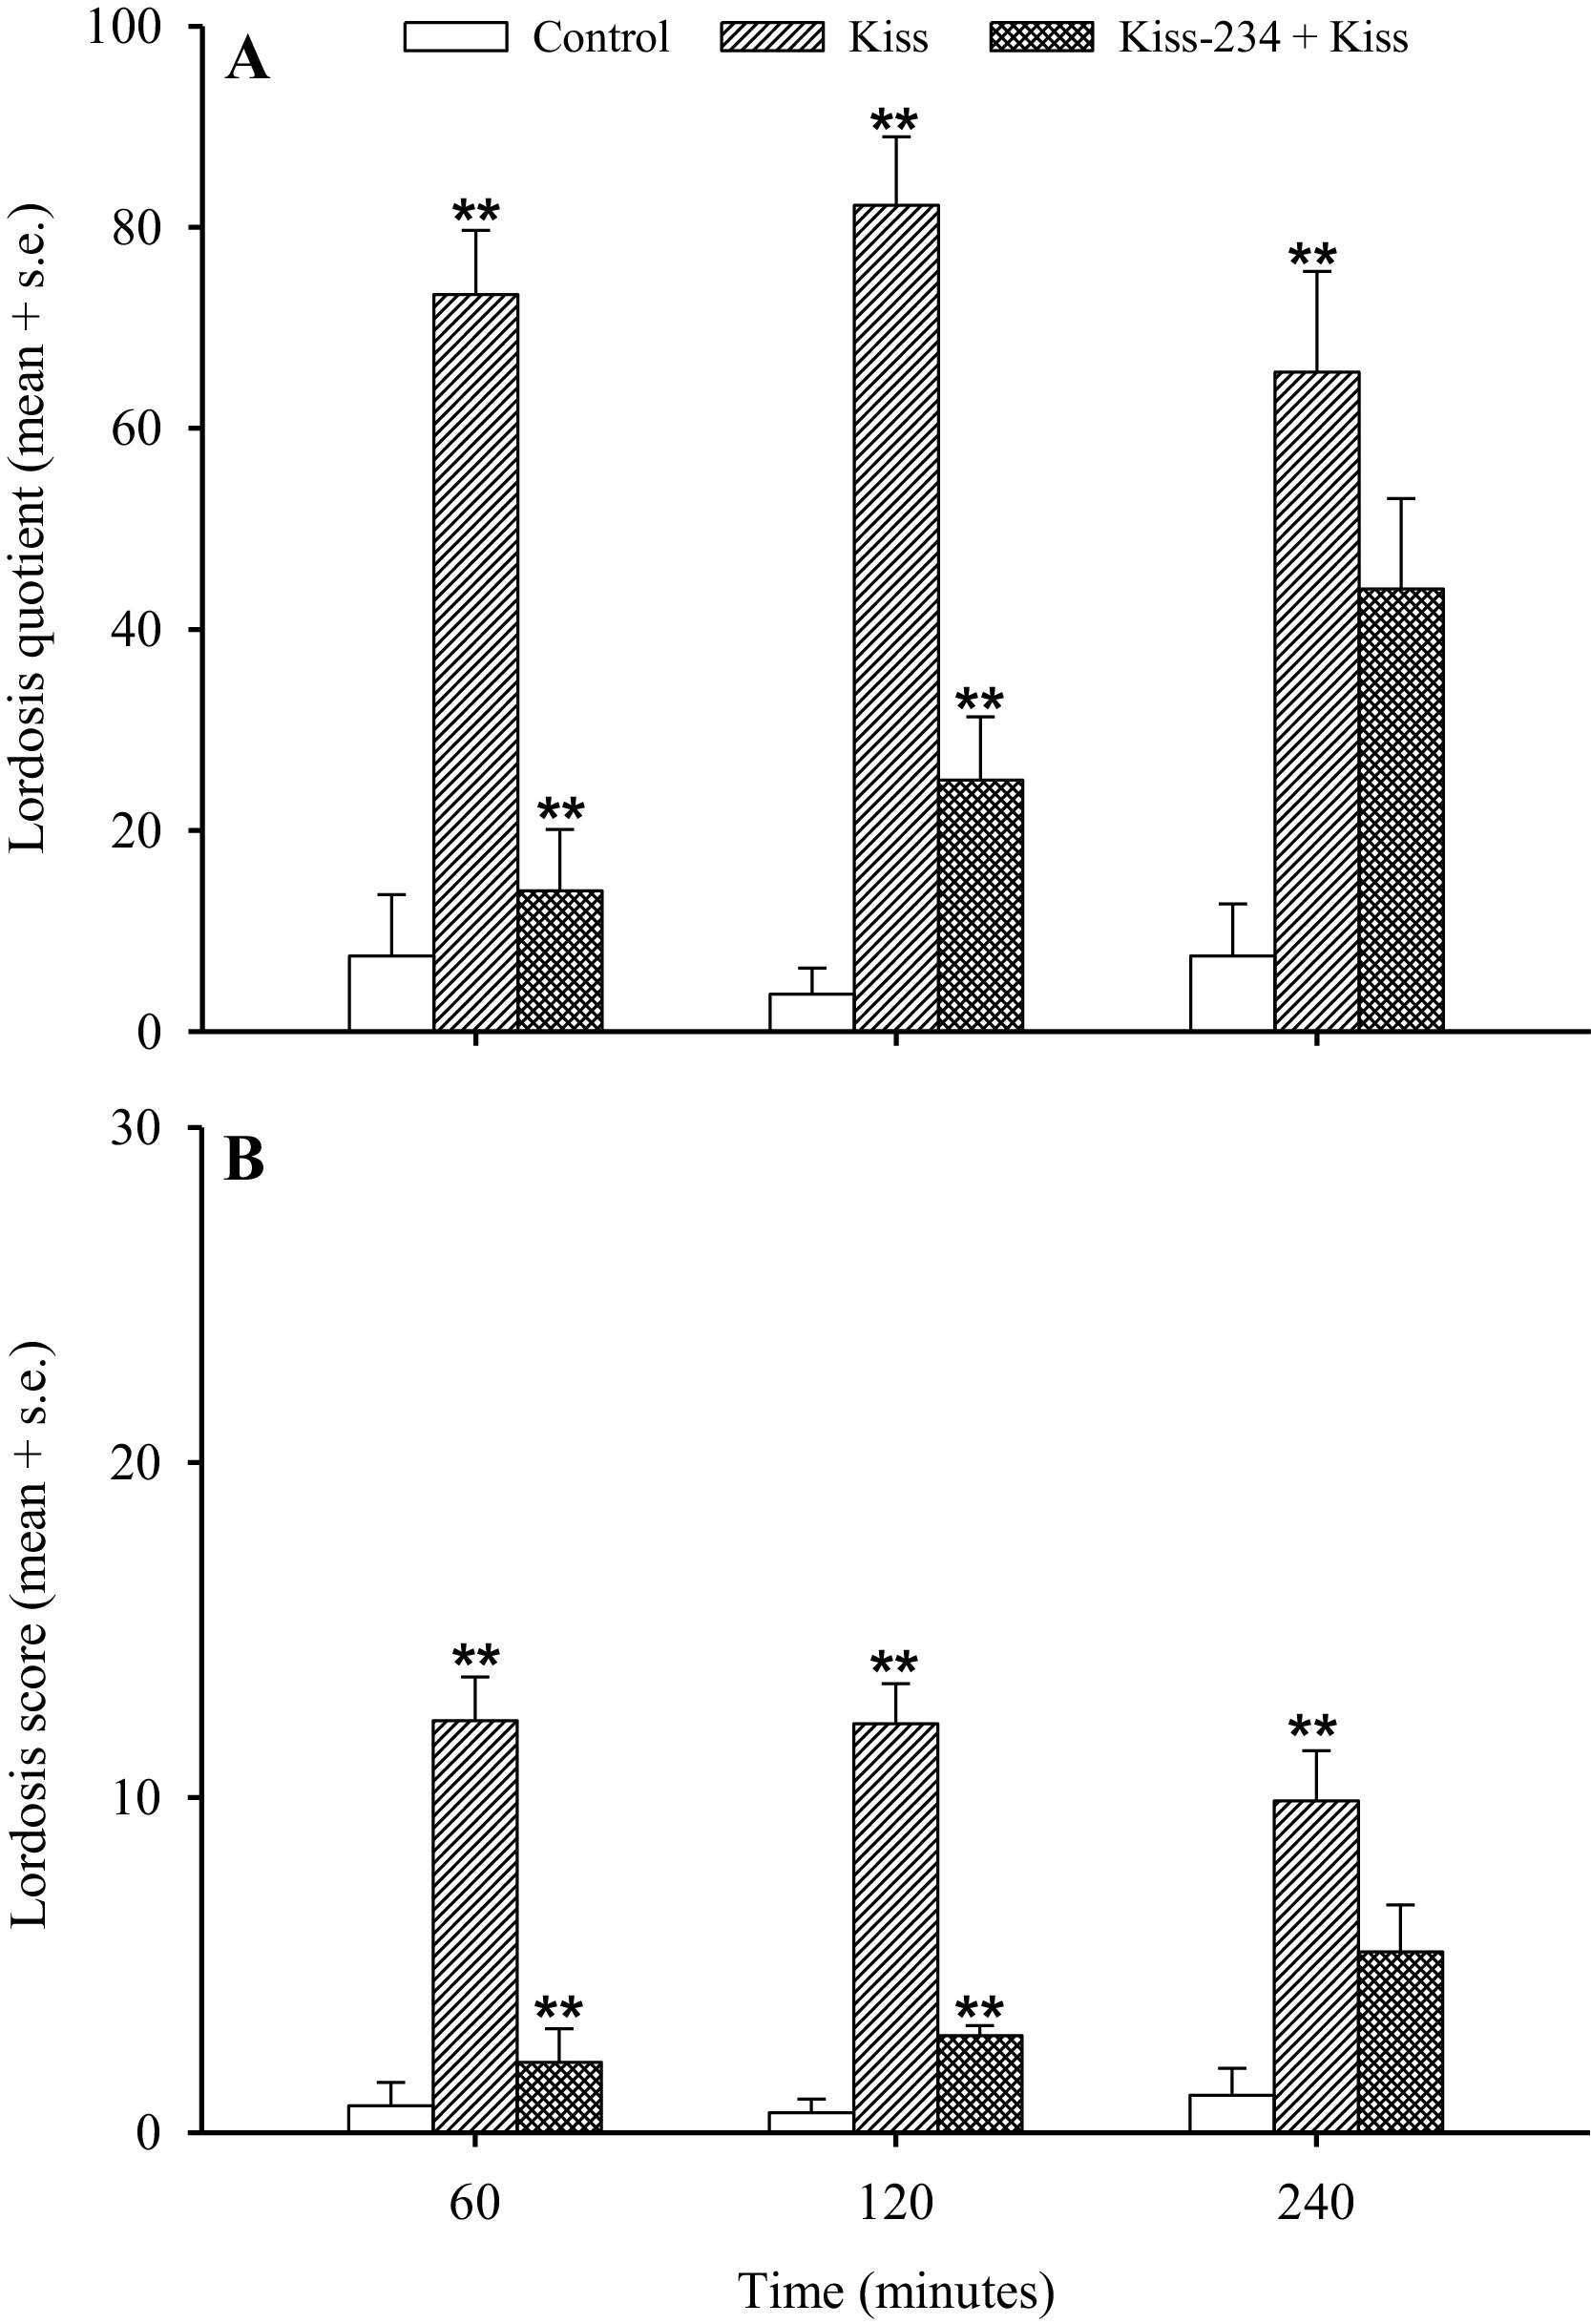
Εικ3. Μετρήσεις λόρδωσης αναφέρθηκαν μετά από έκθεση σε κισπεπτίνη με ή χωρίς τον ανταγωνιστή KISS1R Kiss-234 σε αρουραίους με ωοθηκεκτομή.[5]
Η μελέτη πηγής συνέκρινε τις ομάδες κισπεπτίνης και ελέγχου και αξιολόγησε την επίδραση της προθεραπείας Kiss-234 στο πηλίκο λόρδωσης και την ένταση του αντανακλαστικού λόρδωσης. Τα μεγέθη των ομάδων, οι δόσεις μελέτης, τα χρονικά σημεία και οι στατιστικές συγκρίσεις αναφέρονται στην αρχική δημοσίευση.[5]
Ο Suvi T. Ruohonen και οι συνεργάτες του δημιούργησαν ποντίκια με ωοκύτταρα επιλεκτική διαγραφή του Gpr54/Kiss1r διασταυρώνοντας μια γραμμή Gdf9-Cre με μια γραμμή Gpr54 LoxP. Τα προκύπτοντα ποντίκια OoGpr54−/− υποβλήθηκαν σε φαινοτυπικές, ιστολογικές, ορμονικές και μοριακές αναλύσεις σε αρκετές μεταγεννητικές ηλικίες. Οι συγγραφείς ανέφεραν φυσιολογική έναρξη της εφηβείας αλλά προοδευτική ωορρηξική ανεπάρκεια με την ηλικία, συμπεριλαμβανομένων των ιστολογικών αλλαγών και των αλλαγμένων προφίλ γονιδιακής έκφρασης των ωοθηκών. Επειδή αυτή η μελέτη χρησιμοποίησε διαγραφή υποδοχέα αντί για χορήγηση ενός πεπτιδίου κισπεπτίνης, τα ευρήματά της αφορούν τον βιολογικό ρόλο της σηματοδότησης KISS1R των ωοθηκών και δεν αποτελούν μελέτη έκθεσης άμεσης KP-10.[6]
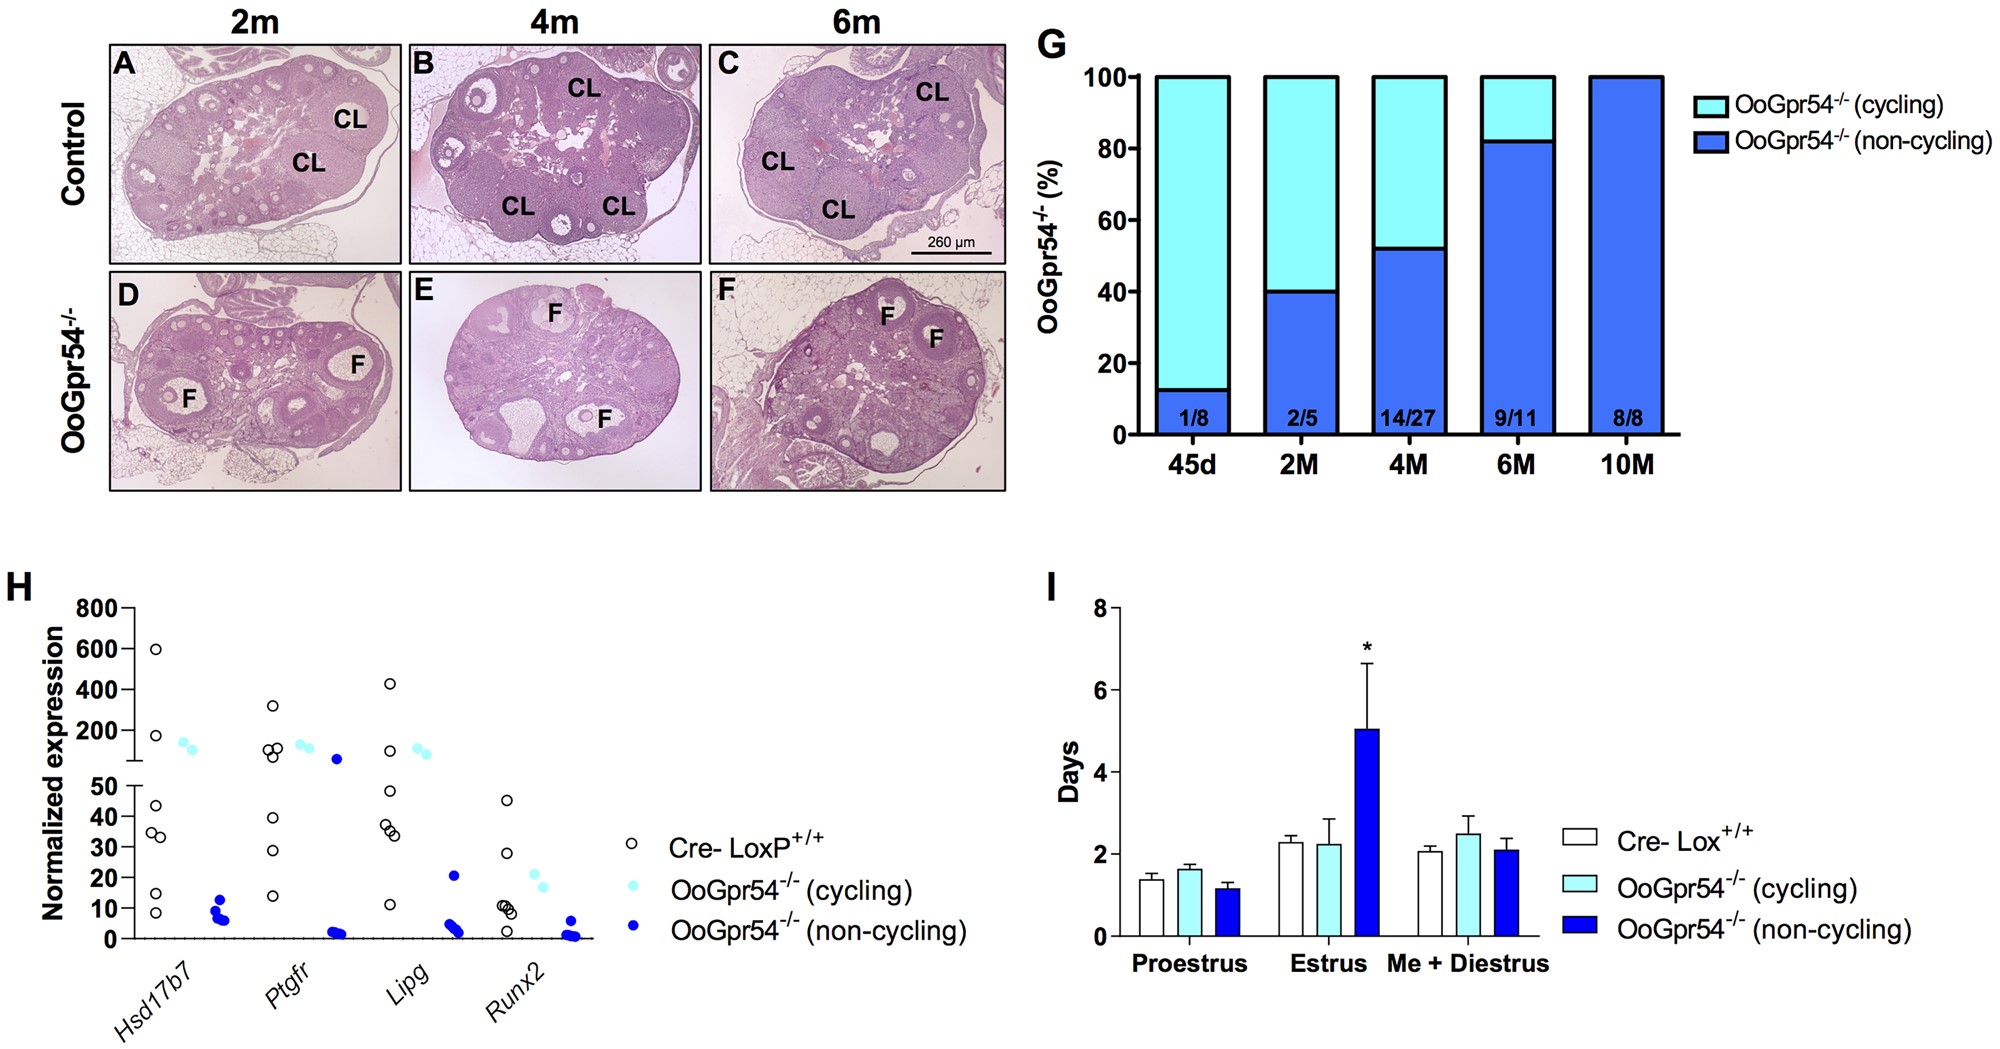
Εικ4. Προοδευτικές αλλαγές ωορρηξίας αναφέρθηκαν σε ποντικούς με ωοκυττάρου εκλεκτική διαγραφή Gpr54/Kiss1r.[6]
Τα πάνελ (AF) δείχνουν αντιπροσωπευτική ιστολογία ωοθηκών από ποντίκια ελέγχου και OoGpr54−/− στις ενδεικνυόμενες ηλικίες. Το πλαίσιο (G) συνοψίζει την αναλογία των θηλυκών OoGpr54−/− χωρίς ωχρά σωμάτια, το πλαίσιο (Η) παρουσιάζει επιλεγμένα ευρήματα αλληλουχίας RNA και το πλαίσιο (Ι) δείχνει μετρήσεις του οιστρικού κύκλου. Τα μεγέθη των ομάδων και οι στατιστικές μέθοδοι αναφέρονται στην αρχική δημοσίευση.[6]
Περιορισμοί Έρευνας
Οι μελέτες που συνοψίζονται παραπάνω δεν αξιολογούν όλες την ίδια μοριακή μορφή κισπεπτίνης. Ο πρόδρομος KISS1 μπορεί να υποβληθεί σε επεξεργασία σε πολλά βιοενεργά πεπτίδια, συμπεριλαμβανομένων των KP54, KP14, KP13 και KP10, τα οποία μοιράζονται το ίδιο C-τερματικό δεκαπεπτίδιο αλλά διαφέρουν ως προς το μήκος και τη φαρμακοκινητική συμπεριφορά. Η μελέτη Wu χρησιμοποίησε KP54 και TAK448, ενώ άλλες αναφερόμενες εργασίες εξέτασαν την ενδογενή σηματοδότηση κισπεπτίνης, μοντέλα υποδοχέα νοκ-άουτ ή παρασκευάσματα κισπεπτίνης που δεν σχεδιάστηκαν ως άμεσες συγκρίσεις ενός εμπορικού ερευνητικού υλικού KP-10.[2,3,4,6,7]
Ο KISS1R είναι ένας υποδοχέας συζευγμένος με πρωτεΐνη κατηγορίας AG και είναι περισσότερο γνωστός για τη σηματοδότηση Gq/11, αν και πρόσφατη δομική και λειτουργική εργασία υποστηρίζει επίσης τη σύζευξη με Gi/o υπό συγκεκριμένες πειραματικές συνθήκες.[2] Οι διαφορές στην ισομορφή του πεπτιδίου, την έκφραση του υποδοχέα, το είδος, το πλαίσιο ιστού, την οδό έκθεσης και τον πειραματικό σχεδιασμό μπορεί να επηρεάσουν την παρατηρούμενη απόκριση. Επομένως, τα αποτελέσματα από μοντέλα ποντικών και αρουραίων θα πρέπει να παραμένουν συνδεδεμένα με το ακριβές πεπτίδιο, το μοντέλο υποδοχέα και τις πειραματικές συνθήκες που περιγράφονται σε κάθε δημοσίευση.[2,7]
Η COCER Peptides παρουσιάζει την Kisspeptin-10 αποκλειστικά για εργαστηριακή έρευνα και αναλυτική χρήση. Δεν προορίζεται για ανθρώπινη ή κτηνιατρική χρήση. Η έρευνα που περιγράφεται παραπάνω συνοψίζει ευρήματα που αναφέρονται σε δημοσιεύσεις τρίτων και δεν αποτελεί δήλωση κλινικής αποτελεσματικότητας, ασφάλειας, διάγνωσης, θεραπείας, πρόληψης ή οδηγίες χρήσης.


