

|
1 kit (10 viales)
| Cantidad: | |
|---|---|
▎ de Kisspeptina Estructura
Fuente: PubChem |
Secuencia:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF Fórmula molecular: C 258H 401N 79O78 Peso molecular: 5857 g/mol CID de PubChem: 71306396 Sinónimos: Proteína KISS-1;Kisspeptinas |
▎ sobre kispeptina Investigación
Fondo molecular
Kisspeptina-10 (KP-10) es un fragmento C-terminal de 10 aminoácidos del precursor de kisspeptina derivado de KISS1. Su secuencia de aminoácidos es Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2) y se une al receptor KISS1R acoplado a proteína G. PubChem enumera la Kisspeptina-10 humana bajo CID 25240297, con la fórmula molecular C63H83N17O14 y un peso molecular de aproximadamente 1302,4 g/mol.[1,8]
Progreso de la investigación
Zhangsong Wu y sus colegas determinaron estructuras crio-EM de los complejos KISS1R-Gq y KISS1R-Gi unidos al agonista sintético TAK448, junto con un complejo KISS1R-Gq unido al KP54 endógeno. Los ensayos funcionales en el mismo estudio indicaron que KISS1R puede acoplarse a la vía Gi/o además de la vía Gq/11 establecida. Los autores informaron diferencias estructurales en los bucles extracelulares e intracelulares del receptor y en la interfaz de la subunidad Gα que pueden contribuir a la selectividad del acoplamiento de la proteína G. Este estudio estructural utilizó KP54 y TAK448 en lugar de KP-10 como ligandos unidos.[2]
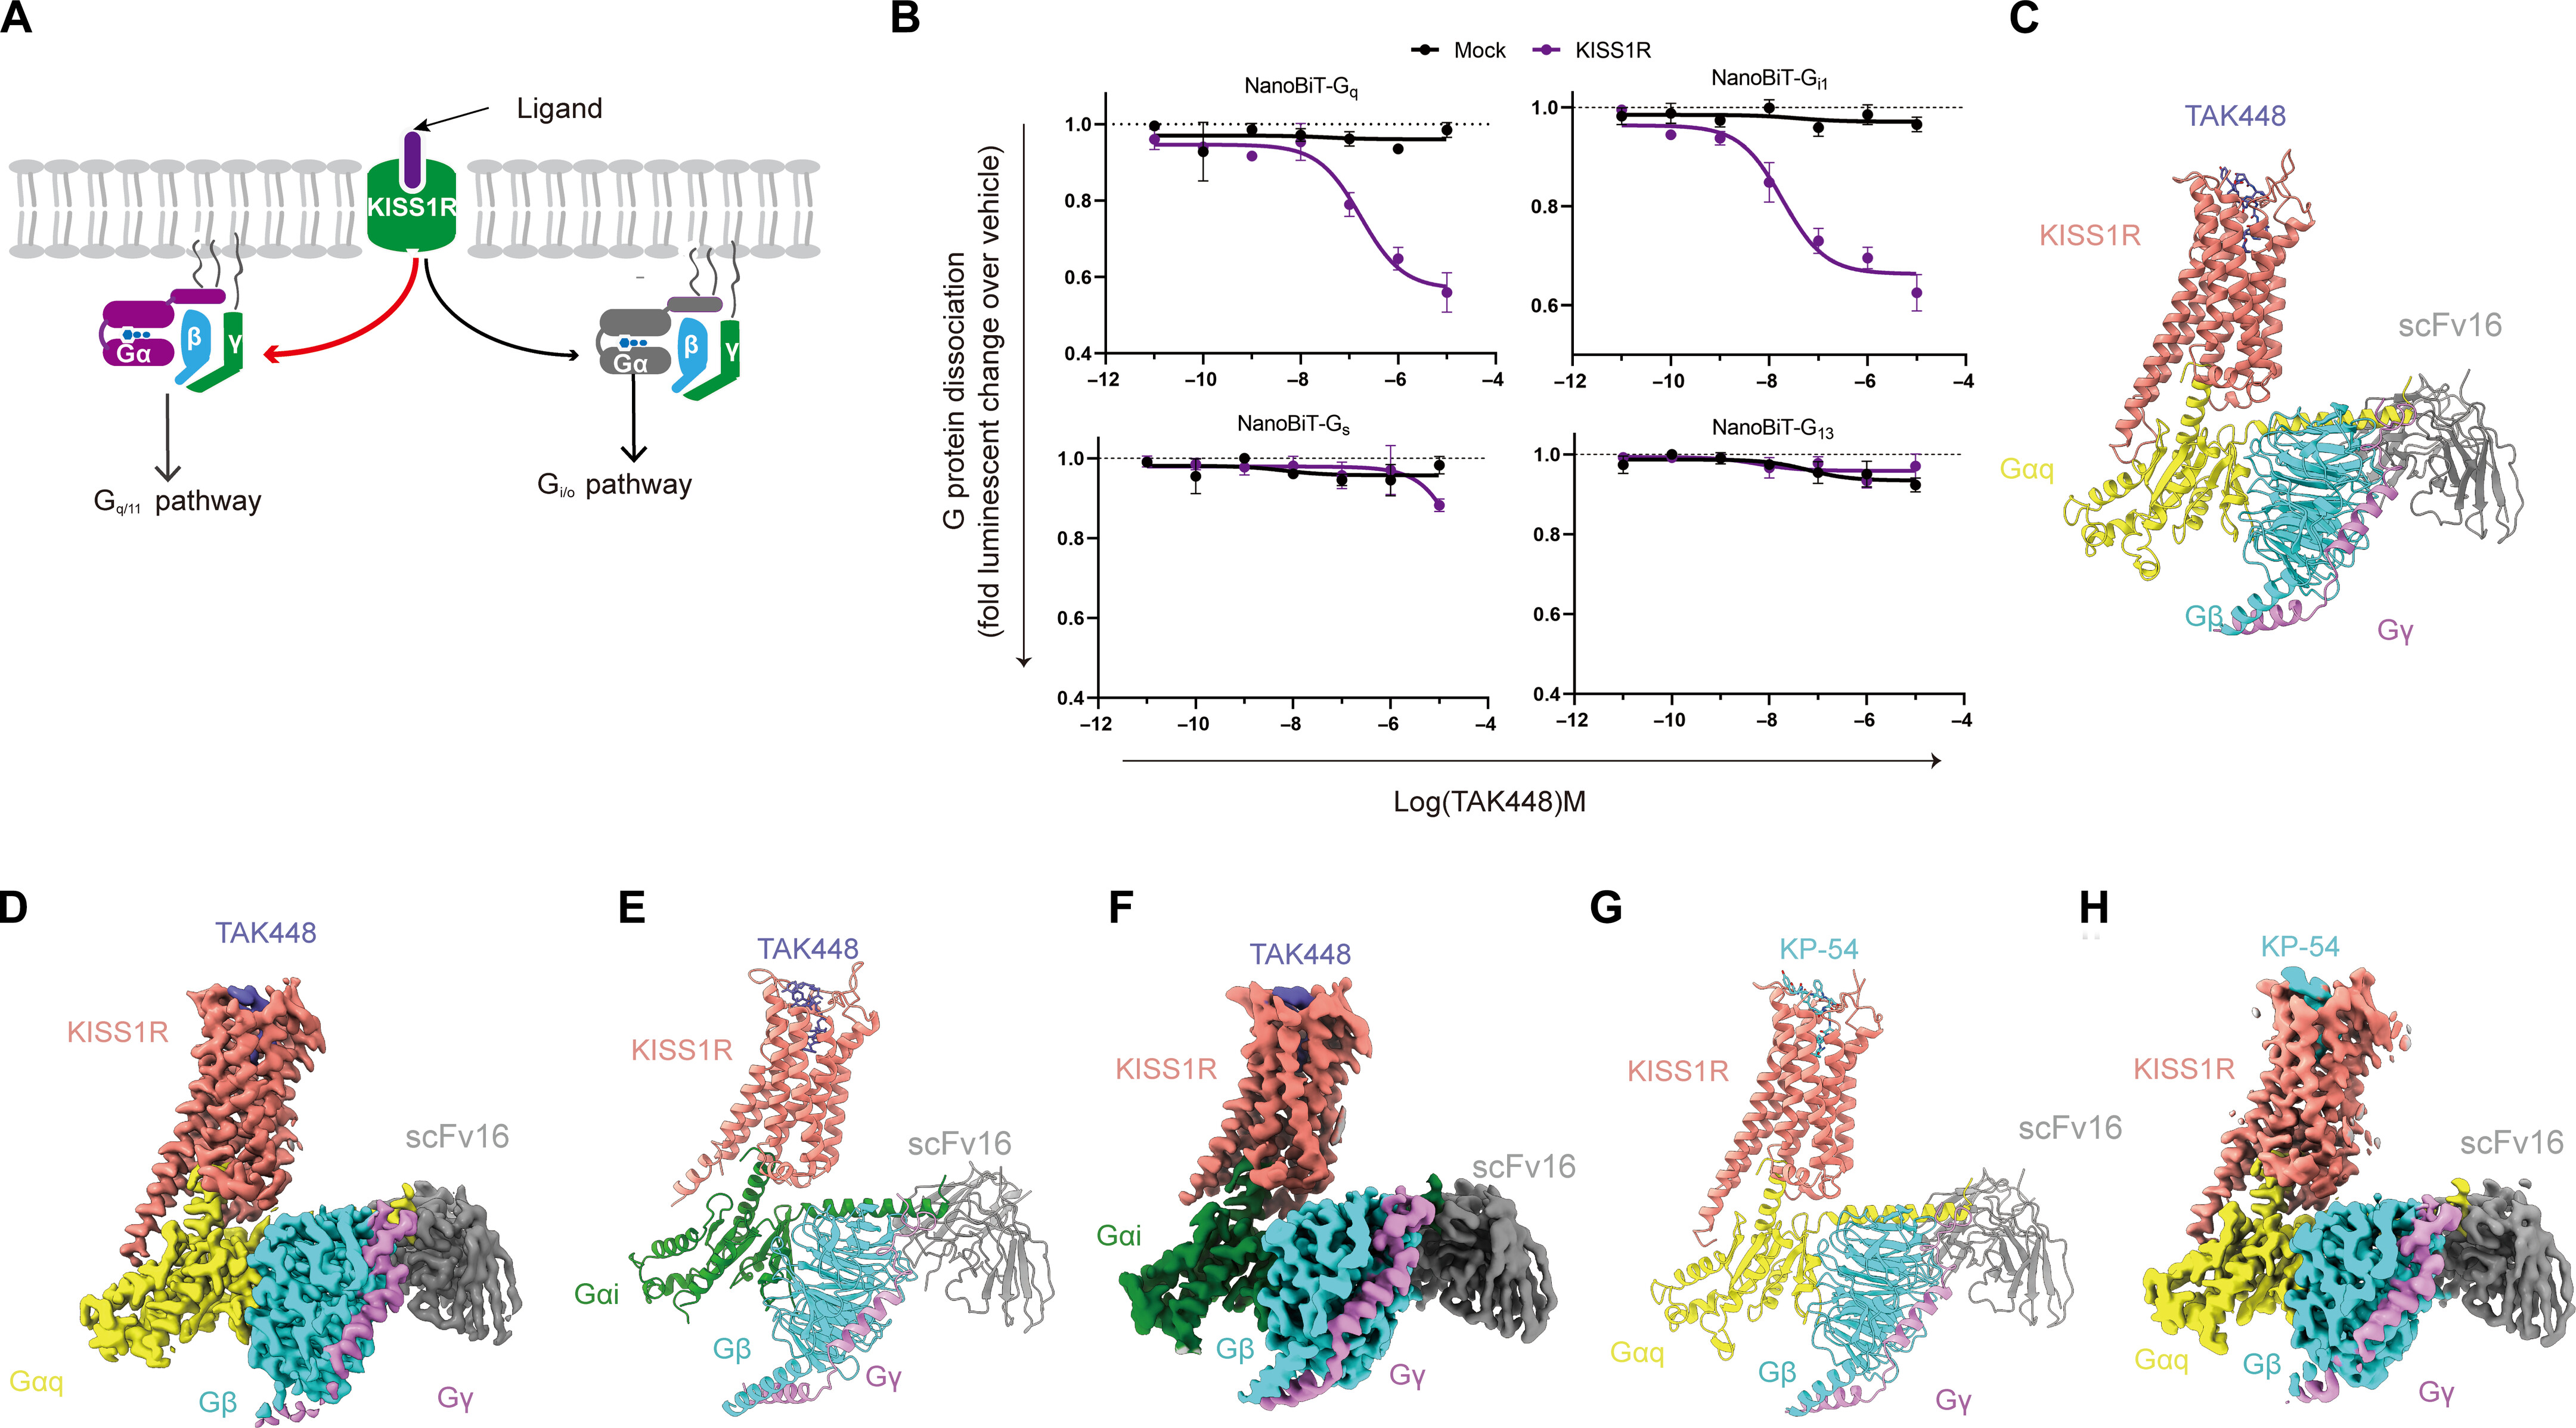
Fig1. Las estructuras crio-EM de los complejos proteicos KISS1R-G se informaron con TAK448 y KP54 en el estudio citado.[2]
(A) Representación esquemática del acoplamiento de proteína G KISS1R examinado en el estudio fuente. (B) Ensayos de disociación de proteína G NanoBiT para los miembros de proteína G indicados después de la exposición a TAK448. (CH) Modelos Cryo-EM y mapas de los complejos TAK448-KISS1R-Gq, TAK448-KISS1R-Gi y KP54-KISS1R-Gq. Las condiciones experimentales y los detalles estadísticos se informan en la publicación original.[2]
Jenny Clarkson y Allan Herbison estudiaron el desarrollo posnatal de las poblaciones de neuronas kisspeptina y sus proyecciones a las neuronas GnRH en ratones. Utilizando un antisuero producido contra la kisspeptina-10 de ratón, identificaron poblaciones inmunorreactivas a la kisspeptina en la región periventricular anteroventral/periventricular preóptica, el hipotálamo dorsomedial y el núcleo arqueado. Los autores informaron una marcada diferencia femenina dominante en el número de neuronas de kisspeptina AVPV/PeN y observaron aposiciones estrechas entre las fibras de kisspeptina y los cuerpos celulares de las neuronas GnRH que emergen durante el desarrollo posnatal. Este trabajo caracterizó la expresión y el desarrollo neuronal endógeno en lugar de los efectos de un material KP-10 suministrado externamente.
Alexander S. Kauffman y sus colegas utilizaron ratones adultos de tipo salvaje (WT) y knockout (KO) GPR54/KISS1R para examinar el papel de la señalización del receptor de kisspeptina en el comportamiento sexualmente dimórfico y el desarrollo neuronal. Los machos y hembras GPR54 KO reemplazados con hormonas mantuvieron el comportamiento copulador típico del sexo, mientras que se observaron diferencias en la preferencia de pareja olfativa y en varios rasgos neuronales sexualmente dimórficos. Los autores concluyeron que la señalización de GPR54 no era necesaria para el comportamiento copulador de un adulto en las condiciones de reemplazo hormonal utilizadas, pero estaba involucrada en el desarrollo de rasgos sexualmente dimórficos seleccionados.[4]
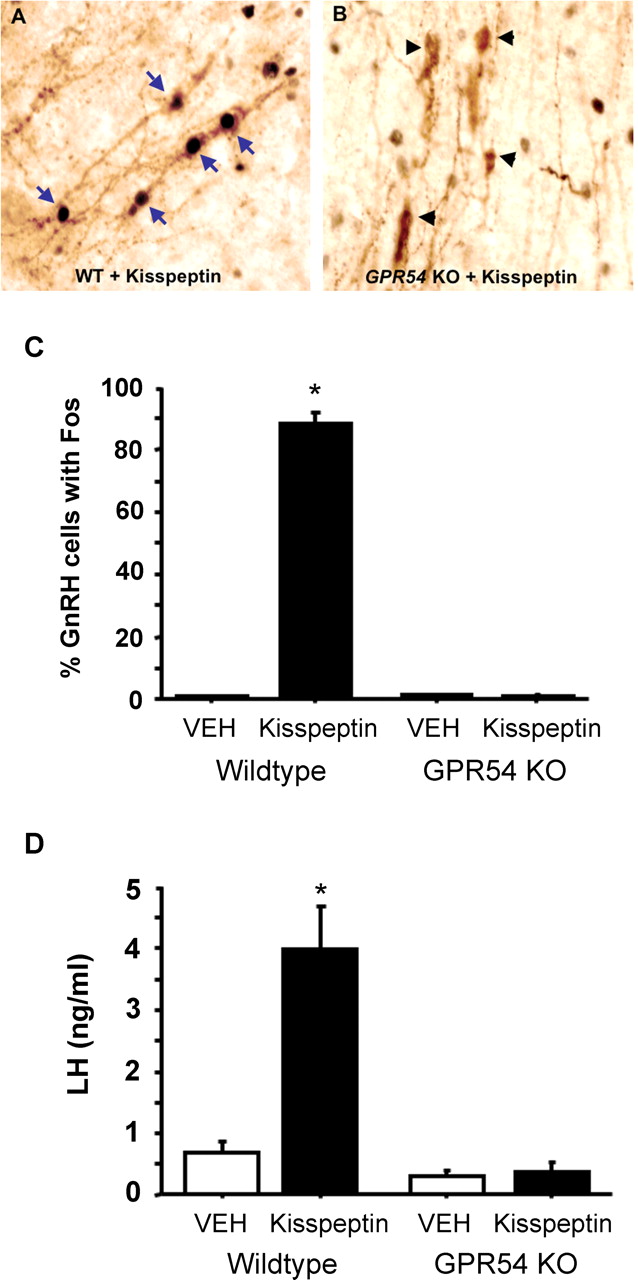
Fig2. Se informaron mediciones de inmunorreactividad de la neurona GnRH Fos y LH plasmática después de la exposición intracerebroventricular a kisspeptina en ratones macho WT y GPR54 KO.[4]
*p < 0,05 versus el grupo WT tratado con vehículo, como se informó en el estudio original.[4]
Oscar González-Flores y sus colegas examinaron la exposición intracerebroventricular a kisspeptina en ratas ovariectomizadas preparadas con benzoato de estradiol. Los autores midieron el cociente de lordosis y la intensidad del reflejo de lordosis y luego utilizaron el antagonista de KISS1R Kiss-234, el antagonista del receptor de progesterona RU486 y la antídota antagonista del receptor de GnRH-1 para examinar la participación del receptor. La exposición a kisspeptina se asoció con mediciones de lordosis más altas en el modelo de rata, mientras que el tratamiento previo con antagonistas redujo la respuesta en momentos seleccionados. Los hallazgos respaldaron la participación de KISS1R, el receptor de progesterona y la señalización del receptor de GnRH en las condiciones del estudio.[5]
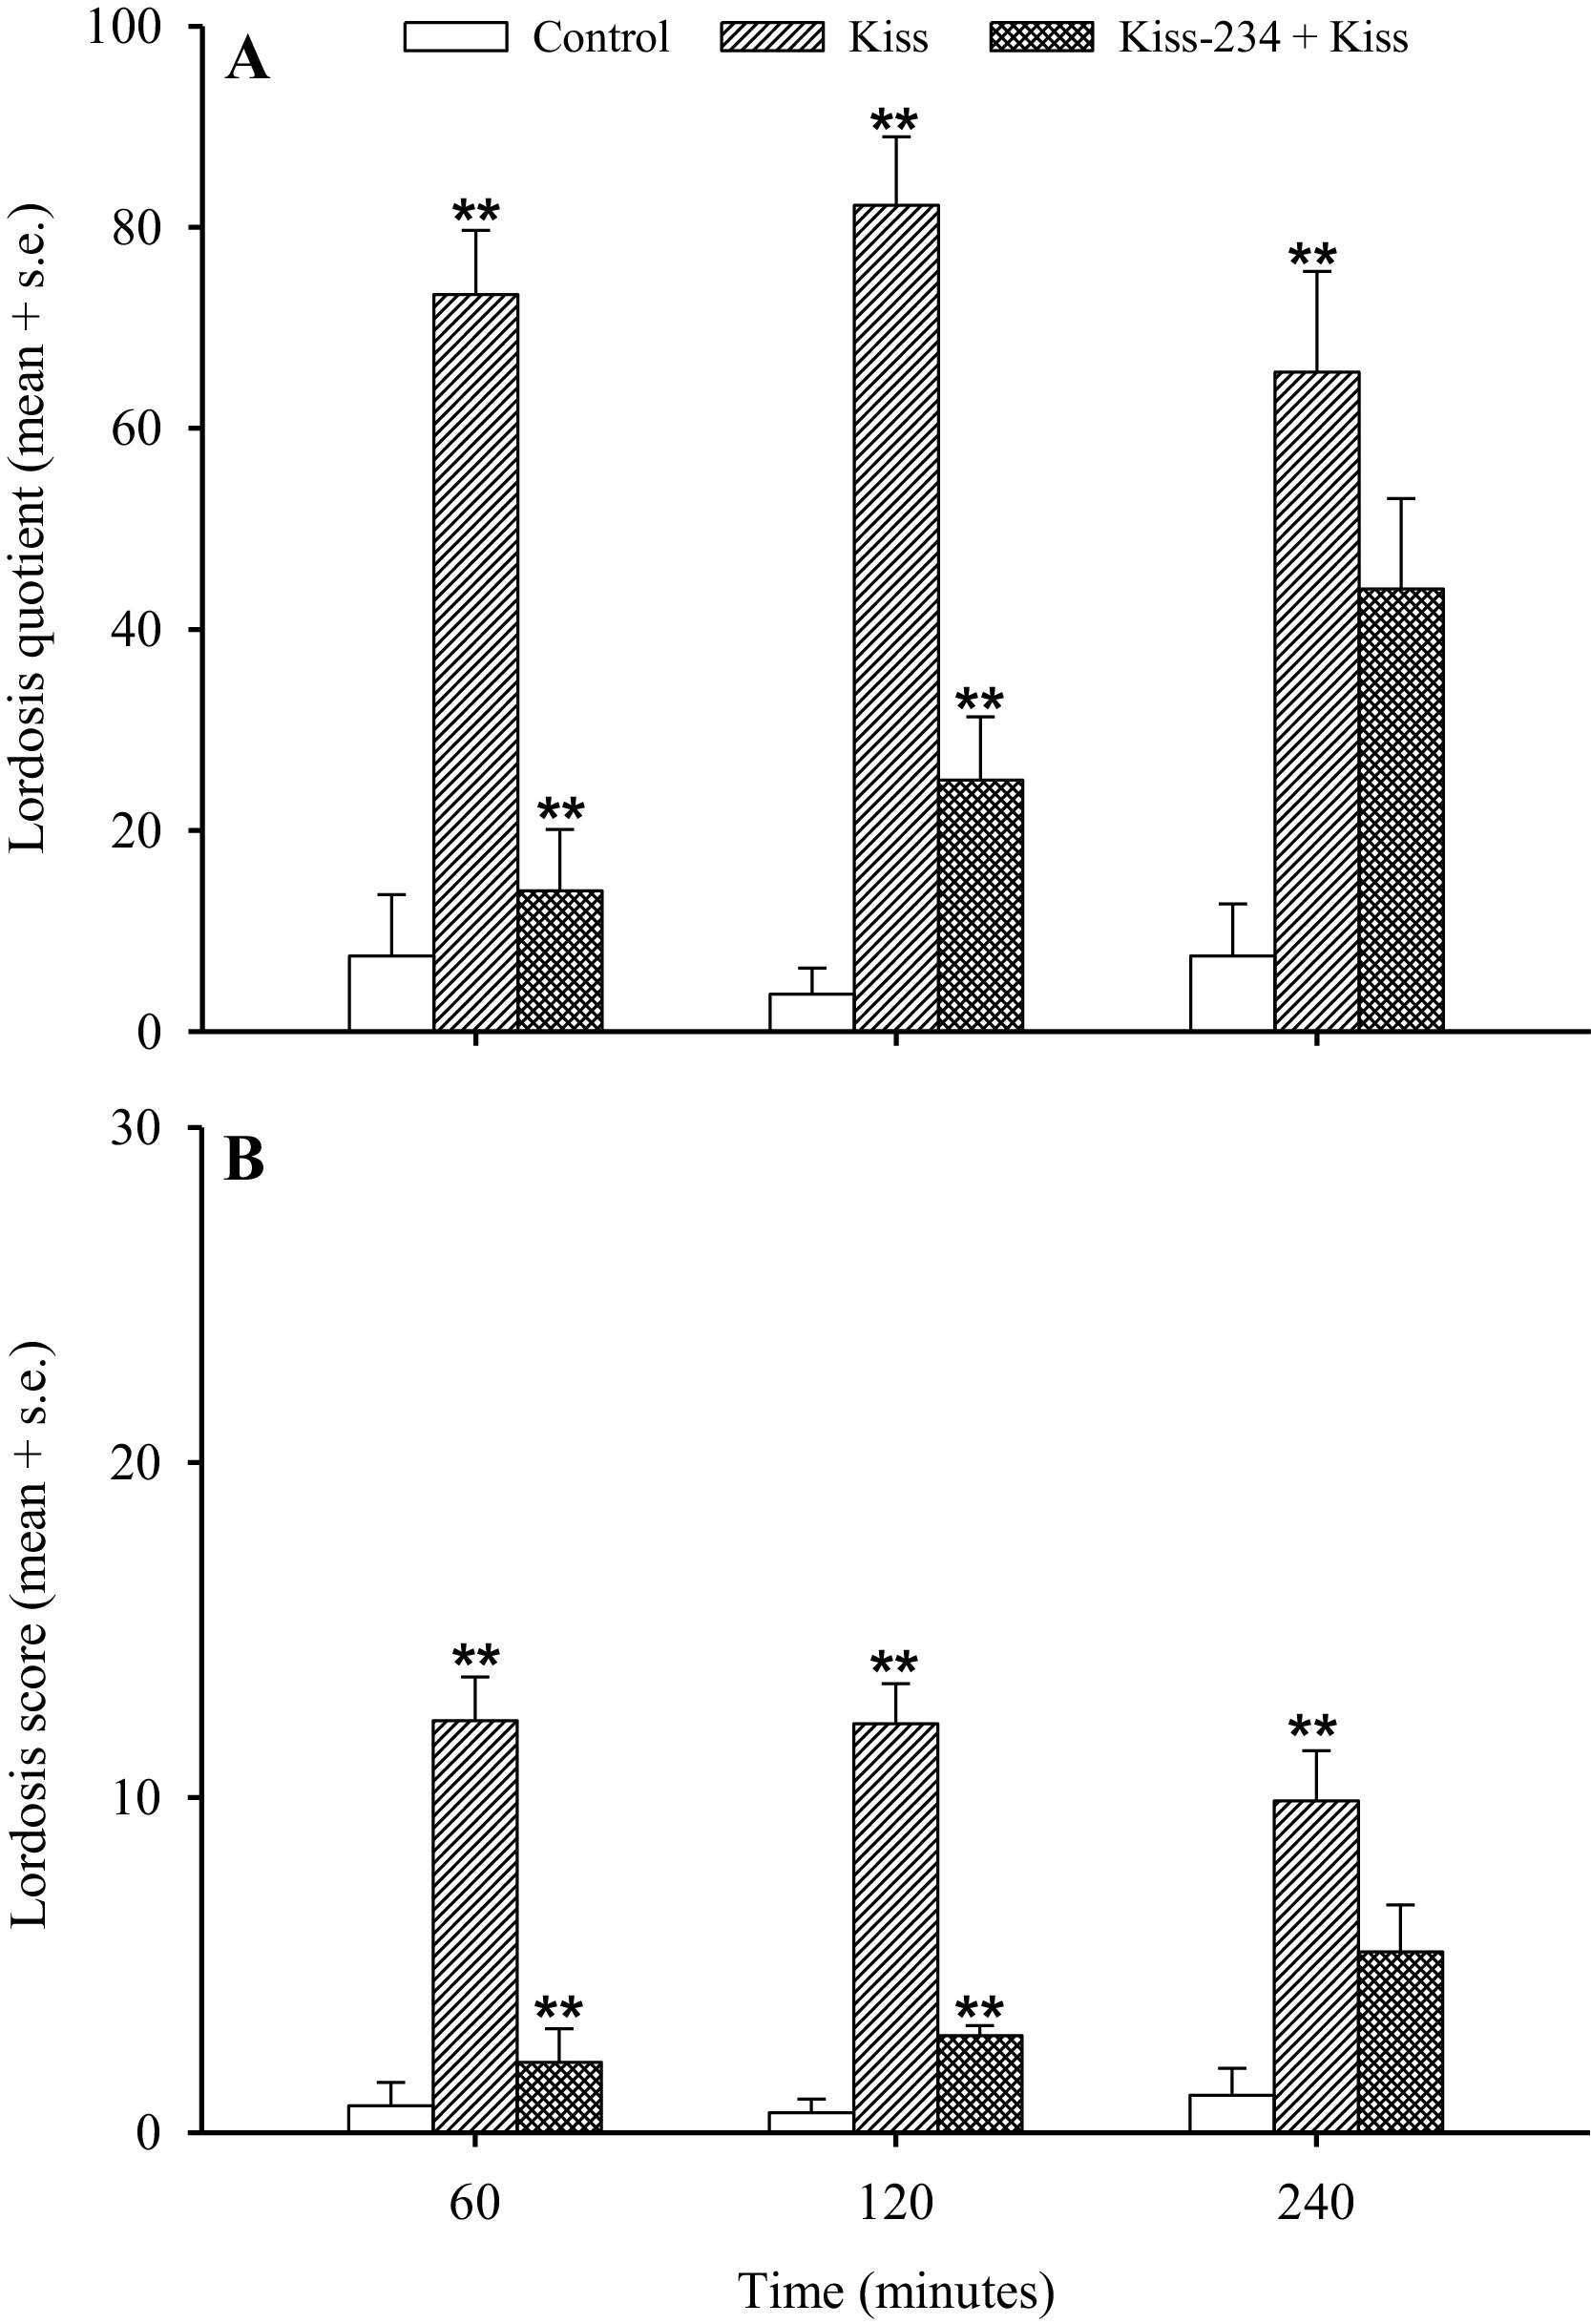
Fig3. Mediciones de lordosis informadas después de la exposición a kisspeptina con o sin el antagonista de KISS1R Kiss-234 en ratas ovariectomizadas.[5]
El estudio fuente comparó kisspeptina y grupos de control y evaluó el efecto del pretratamiento con Kiss-234 sobre el cociente de lordosis y la intensidad del reflejo de lordosis. En la publicación original se informan los tamaños de los grupos, las dosis de los estudios, los momentos temporales y las comparaciones estadísticas.[5]
Suvi T. Ruohonen y sus colegas generaron ratones con deleción selectiva de ovocitos de Gpr54/Kiss1r cruzando una línea Gdf9-Cre con una línea Gpr54 LoxP. Los ratones OoGpr54-/- resultantes se sometieron a análisis fenotípicos, histológicos, hormonales y moleculares en varias edades posnatales. Los autores informaron un inicio normal de la pubertad pero una insuficiencia ovulatoria progresiva con la edad, incluidos cambios histológicos y perfiles alterados de expresión genética ovárica. Debido a que este estudio utilizó la eliminación del receptor en lugar de la administración de un péptido kisspeptina, sus hallazgos se refieren al papel biológico de la señalización del KISS1R ovárico y no son un estudio de exposición directa a KP-10.[6]
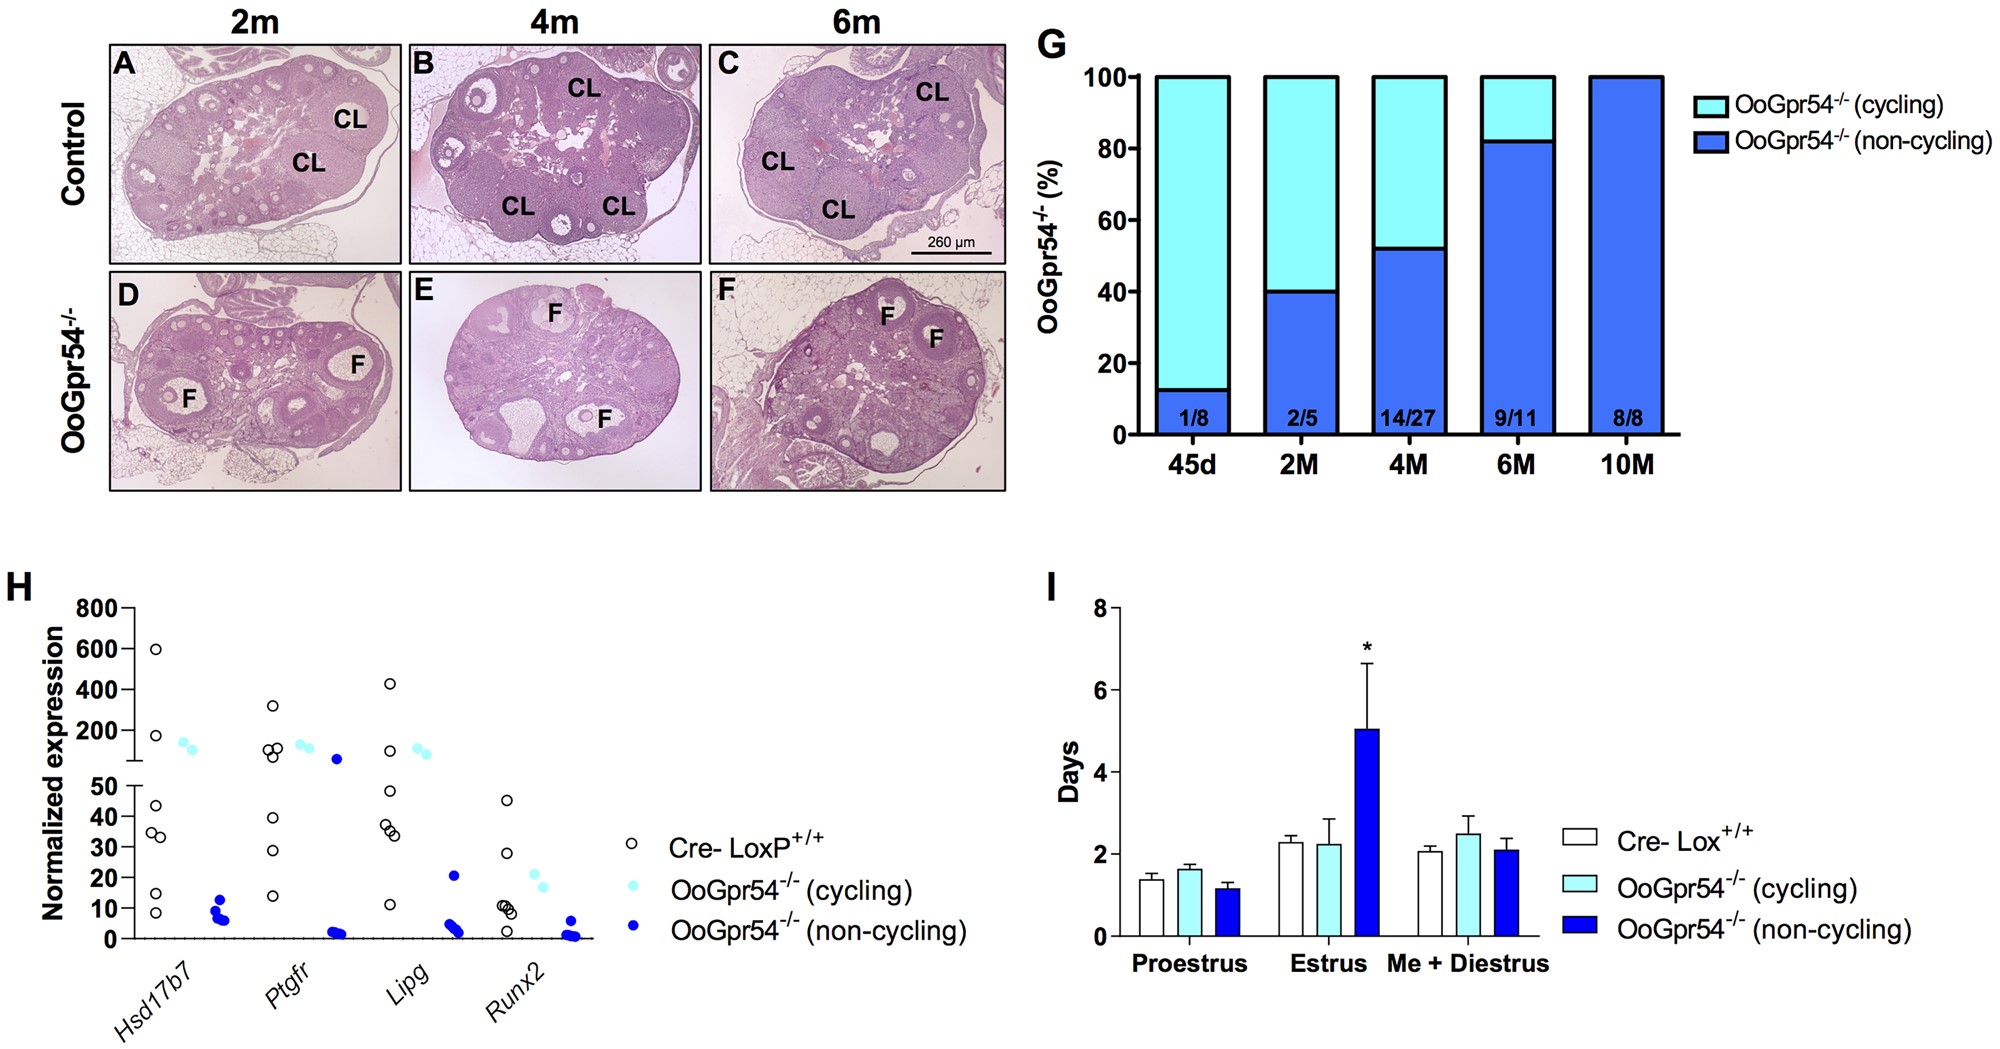
Fig4. Se informaron cambios ovulatorios progresivos en ratones con deleción selectiva de ovocitos de Gpr54/Kiss1r.[6]
Los paneles (AF) muestran una histología ovárica representativa de ratones control y OoGpr54-/- en las edades indicadas. El panel (G) resume la proporción de hembras OoGpr54-/- sin cuerpos lúteos, el panel (H) presenta hallazgos seleccionados de secuenciación de ARN y el panel (I) muestra mediciones del ciclo estral. Los tamaños de los grupos y los métodos estadísticos se informan en la publicación original.[6]
Limitaciones de la investigación
No todos los estudios resumidos anteriormente evalúan la misma forma molecular de kisspeptina. El precursor de KISS1 se puede procesar en varios péptidos bioactivos, incluidos KP54, KP14, KP13 y KP10, que comparten el mismo decapéptido C-terminal pero difieren en longitud y comportamiento farmacocinético. El estudio de Wu utilizó KP54 y TAK448, mientras que otros trabajos citados examinaron la señalización endógena de kisspeptina, modelos de receptor knockout o preparaciones de kisspeptina que no fueron diseñadas como comparaciones directas de un material de investigación comercial de KP-10.[2,3,4,6,7]
KISS1R es un receptor acoplado a proteínas de clase AG y es mejor conocido por la señalización de Gq/11, aunque trabajos estructurales y funcionales recientes también respaldan el acoplamiento a Gi/o en condiciones experimentales específicas.[2] Las diferencias en la isoforma del péptido, la expresión del receptor, la especie, el contexto del tejido, la ruta de exposición y el diseño experimental pueden influir en la respuesta observada. Por lo tanto, los resultados de los modelos de ratón y rata deben permanecer vinculados al péptido exacto, al modelo de receptor y a las condiciones experimentales descritas en cada publicación.[2,7]
COCER Peptides presenta Kisspeptin-10 únicamente para investigación de laboratorio y uso analítico. No está destinado para uso humano o veterinario. La investigación descrita anteriormente resume los hallazgos informados en publicaciones de terceros y no es una declaración de eficacia clínica, seguridad, diagnóstico, tratamiento, prevención ni instrucciones de uso.


