

|
1 készlet (10 fiola)
| Mennyiség: | |
|---|---|
▎ Kisspeptin szerkezete
Forrás: PubChem |
Sorrend:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF Molekulaképlet: C 258H 401N 79O78 Molekulasúly: 5857 g/mol PubChem ügyfél-azonosító: 71306396 Szinonimák: Protein KISS-1;Kisspeptins |
▎ Kisspeptin kutatás
Molekuláris háttér
A Kisspeptin-10 (KP-10) a KISS1-eredetű kisspeptin prekurzor 10 aminosavból álló C-terminális fragmentuma. Aminosavszekvenciája Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2), és a G-fehérjéhez kapcsolt KISS1R receptorhoz kötődik. A PubChem a humán kisspeptin-10-et CID 25240297 számon sorolja fel, molekulaképlete C63H83N17O14 és molekulatömege körülbelül 1302,4 g/mol.[1,8]
A kutatás előrehaladása
Zhangsong Wu és munkatársai meghatározták a TAK448 szintetikus agonistához kötött KISS1R-Gq és KISS1R-Gi komplexek krio-EM szerkezetét, valamint az endogén KP54-hez kötődő KISS1R-Gq komplexet. Ugyanebben a vizsgálatban végzett funkcionális vizsgálatok azt mutatták, hogy a KISS1R a Gi/o útvonalhoz is kapcsolódhat a megállapított Gq/11 útvonalon kívül. A szerzők szerkezeti különbségekről számoltak be a receptor extracelluláris és intracelluláris hurkjaiban, valamint a Gα-alegység interfészében, amelyek hozzájárulhatnak a G-protein kapcsolódási szelektivitásához. Ez a szerkezeti vizsgálat a KP54-et és a TAK448-at használta a KP-10 helyett kötött ligandumként.[2]
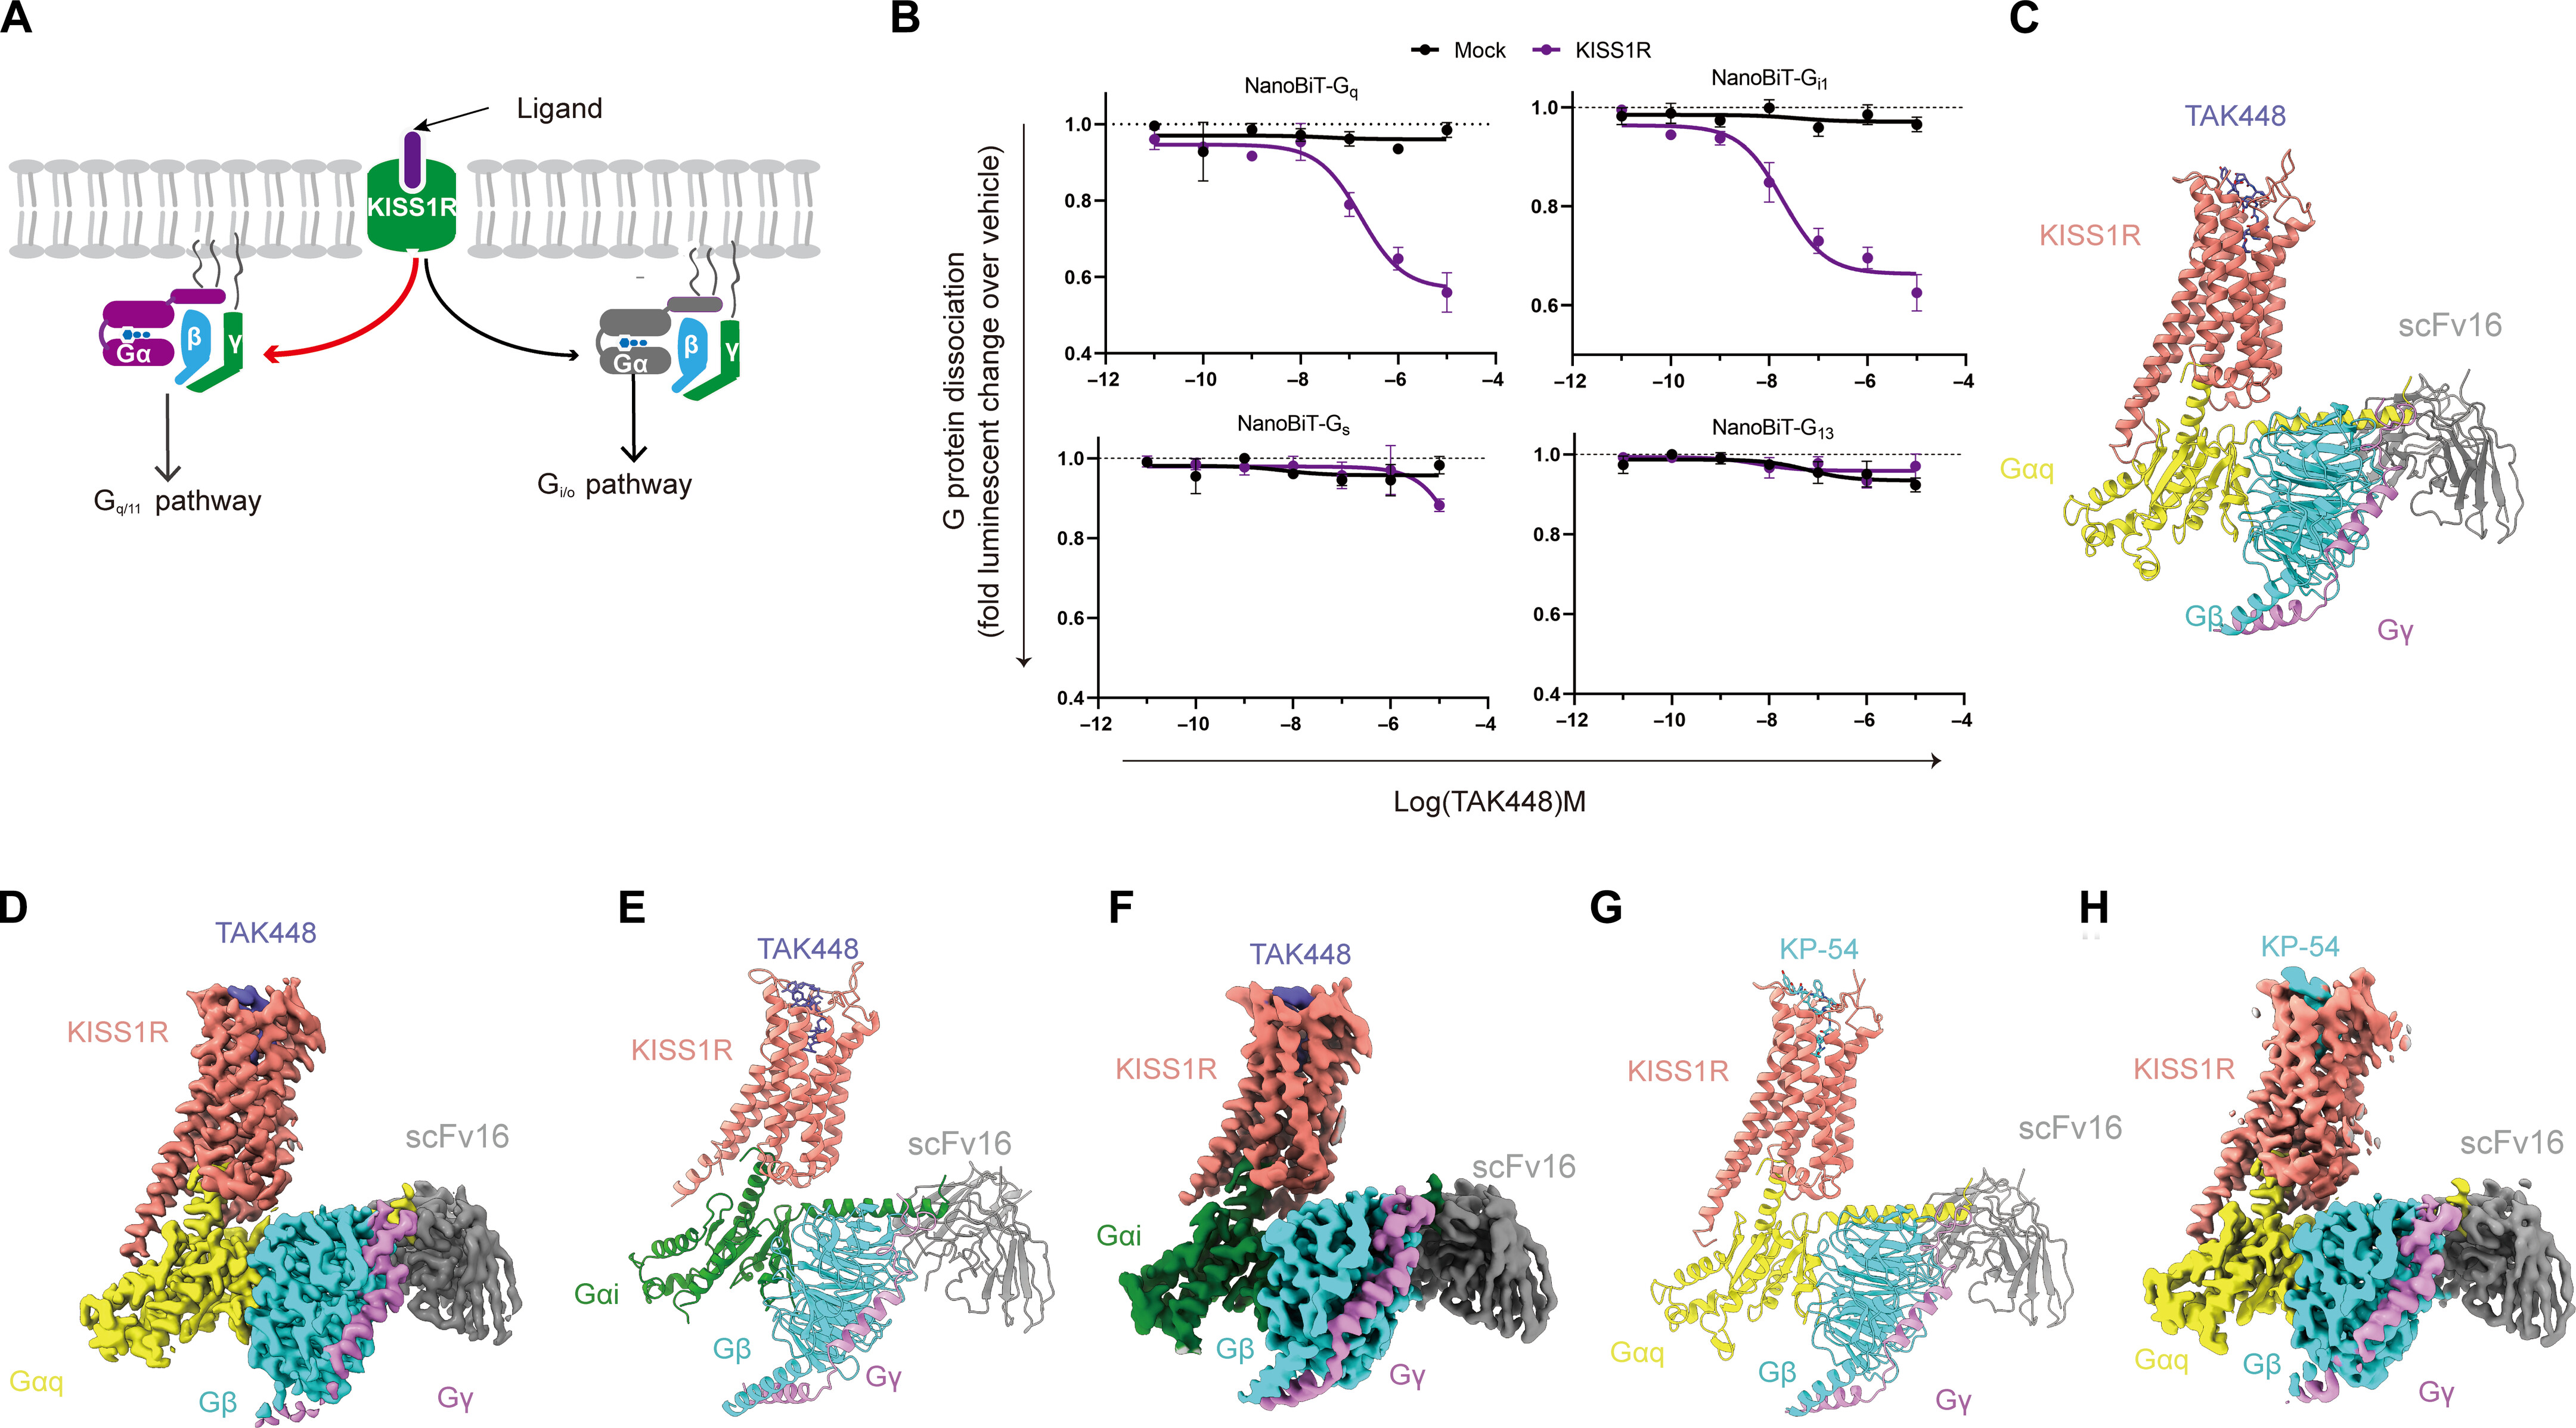
1. ábra. Az idézett tanulmányban a KISS1R-G fehérjekomplexek krio-EM struktúráiról számoltak be TAK448-cal és KP54-gyel.[2]
(A) A forrástanulmányban vizsgált KISS1R G-protein kapcsolódás sematikus ábrázolása. (B) NanoBiT G-protein disszociációs vizsgálatok a jelzett G-protein tagokra a TAK448 expozíciót követően. (CH) TAK448-KISS1R-Gq, TAK448-KISS1R-Gi és KP54-KISS1R-Gq komplexek krio-EM modelljei és térképei. A kísérleti körülményeket és a statisztikai részleteket az eredeti kiadvány tartalmazza.[2]
Jenny Clarkson és Allan Herbison a kisspeptin neuronpopulációk születés utáni fejlődését és a GnRH neuronokra való vetületét vizsgálták egereken. Egy egér kisspeptin-10 ellen termelt antiszérum segítségével kisspeptin-immunreaktív populációkat azonosítottak az anteroventralis periventrikuláris/preoptikus periventrikuláris régióban, a dorsomedialis hipotalamuszban és az arcuatus magban. A szerzők jelentős női domináns különbségről számoltak be az AVPV/PeN kisspeptin neuronok számában, és szoros összefüggést figyeltek meg a kisspeptin rostok és a posztnatális fejlődés során megjelenő GnRH neuron sejttestek között. Ez a munka inkább az endogén neuronális expressziót és fejlődést jellemezte, mintsem egy külsőleg szállított KP-10 anyag hatásait.[3]
Alexander S. Kauffman és munkatársai felnőtt vad típusú (WT) és GPR54/KISS1R knockout (KO) egerekkel vizsgálták a kisspeptin-receptor jelátvitel szerepét a szexuálisan dimorf viselkedésben és az idegi fejlődésben. A hormonpótló GPR54 KO hímek és nőstények megőrizték a nemre jellemző kopulációs viselkedést, míg a szagló partnerpreferencia és számos szexuálisan dimorf idegi tulajdonság tekintetében különbségek voltak megfigyelhetők. A szerzők arra a következtetésre jutottak, hogy a GPR54 jelátvitel nem szükséges a felnőtt párzási viselkedéshez az alkalmazott hormonpótló körülmények között, de részt vesz a kiválasztott szexuális dimorf tulajdonságok kialakulásában.[4]
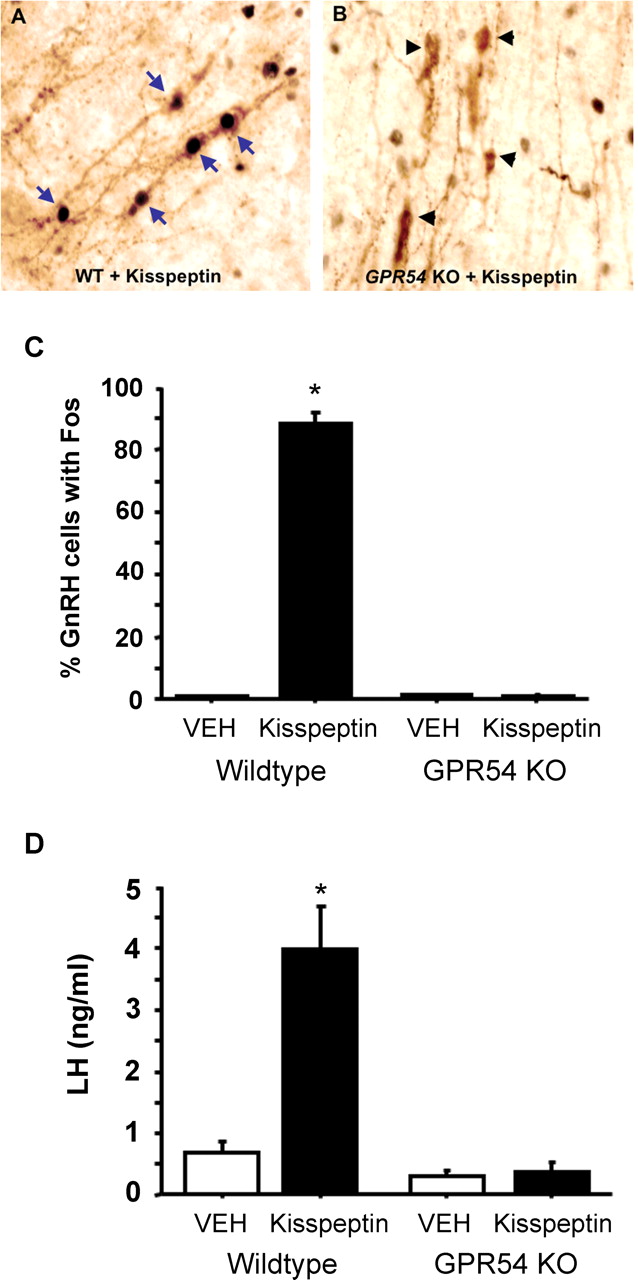
2. ábra. GnRH-neuron Fos immunreaktivitás és plazma LH méréseket jelentettek intracerebroventricularis kisspeptin expozíció után WT és GPR54 KO hím egerekben.[4]
*p < 0,05 a vivőanyaggal kezelt WT-csoporthoz képest, amint azt az eredeti vizsgálatban közölték.[4]
Oscar González-Flores és munkatársai az intracerebroventricularis kisspeptin expozíciót vizsgálták ösztradiol-benzoáttal kezelt petefészek-eltávolított patkányokon. A szerzők megmérték a lordózis hányadosát és a lordózis reflex intenzitását, majd a KISS1R antagonista Kiss-234, a progeszteron receptor antagonista RU486 és a GnRH-1 receptor antagonista antide segítségével vizsgálták a receptor érintettségét. A kisspeptin expozíció magasabb lordózis mérésekkel járt patkánymodellben, míg az antagonista előkezelés csökkentette a választ a kiválasztott időpontokban. Az eredmények alátámasztották a KISS1R, a progeszteron-receptor és a GnRH-receptor jelátvitelt a vizsgálat körülményei között.[5]
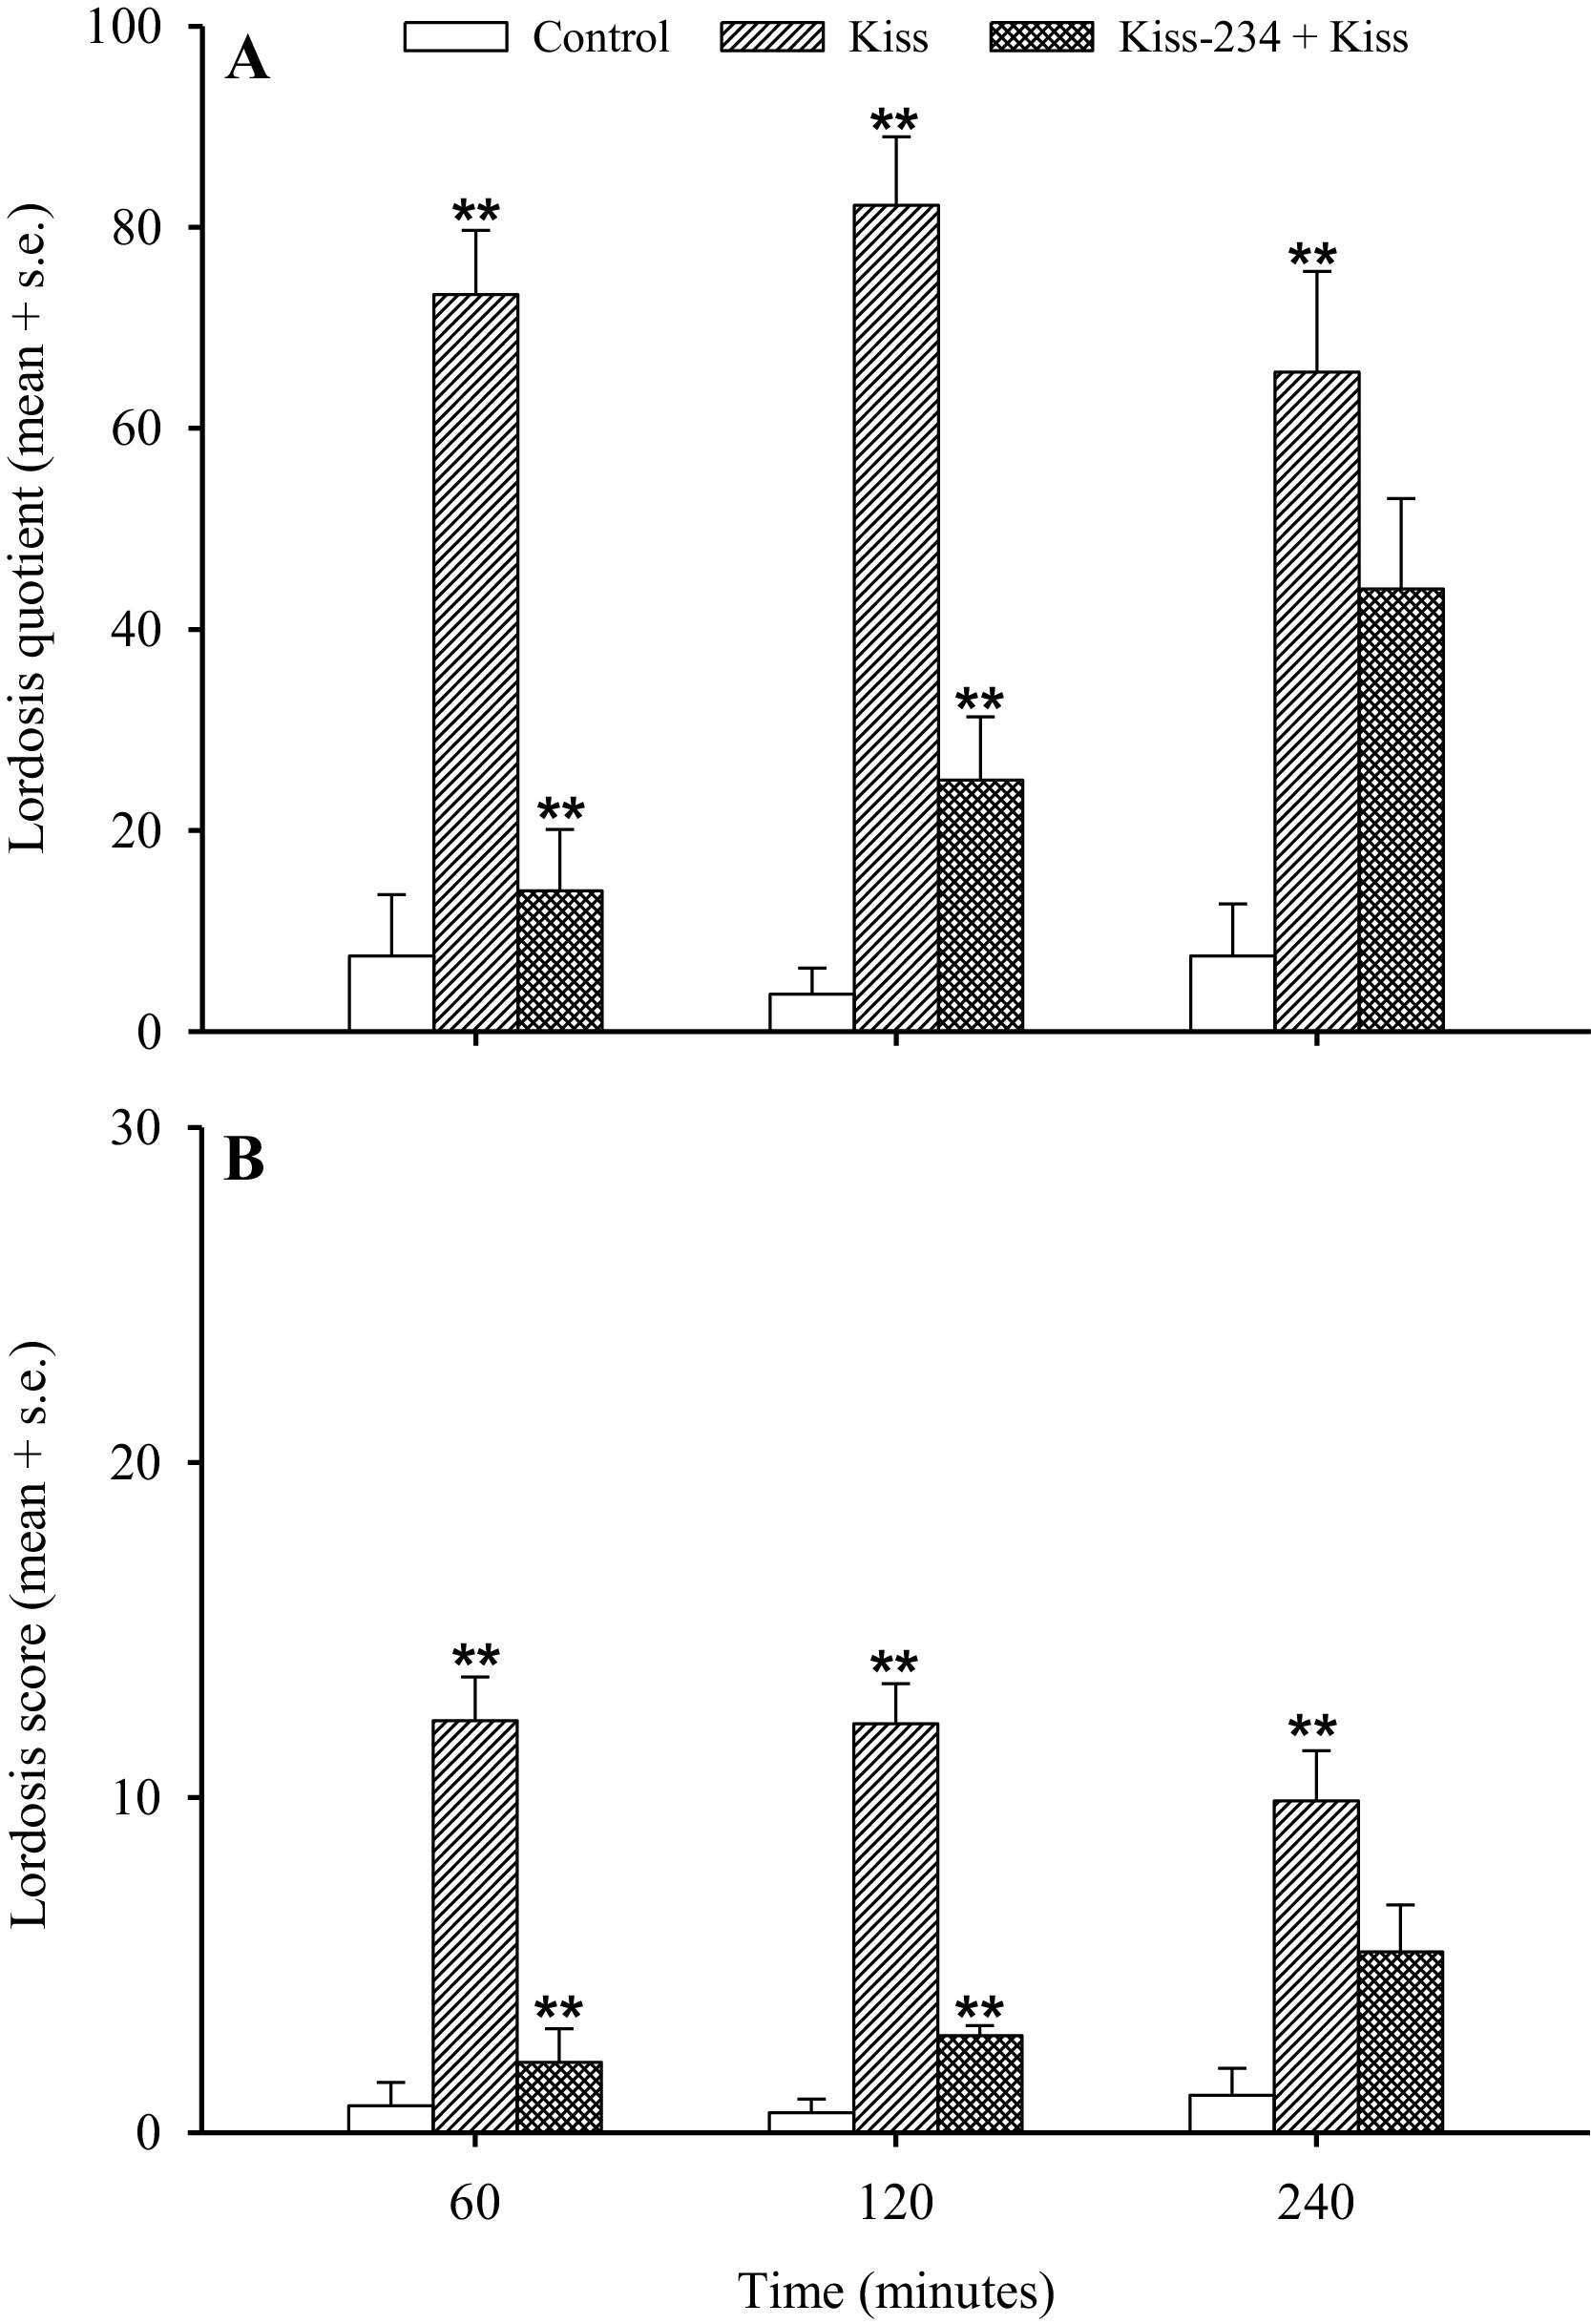
3. ábra. Lordosis méréseket jelentettek kisspeptin expozíció után a KISS1R antagonistával, a Kiss-234-gyel vagy anélkül petefészek-eltávolított patkányokon.[5]
A forrástanulmány a kisspeptint és a kontrollcsoportokat hasonlította össze, és értékelte a Kiss-234 előkezelés hatását a lordosis hányadosra és a lordosis reflex intenzitására. A csoportok méretét, a vizsgálati dózisokat, az időpontokat és a statisztikai összehasonlításokat az eredeti kiadvány tartalmazza.[5]
Suvi T. Ruohonen és munkatársai Gpr54/Kiss1r petesejtek szelektív deléciójával rendelkező egereket hoztak létre a Gdf9-Cre vonal és a Gpr54 LoxP vonal keresztezésével. Az eredményül kapott OoGpr54-/- egereken fenotípusos, szövettani, hormonális és molekuláris elemzéseket végeztek több posztnatális korban. A szerzők a pubertás normális kezdetéről, de az életkorral előrehaladó ovulációs elégtelenségről számoltak be, beleértve a szövettani változásokat és a petefészek génexpressziós profiljának megváltozását. Mivel ez a tanulmány receptor deléciót használt, nem pedig kisszpeptin peptid beadását, megállapításai a petefészek KISS1R jelátvitelének biológiai szerepére vonatkoznak, és nem közvetlen KP-10 expozíciós vizsgálatnak minősülnek.[6]
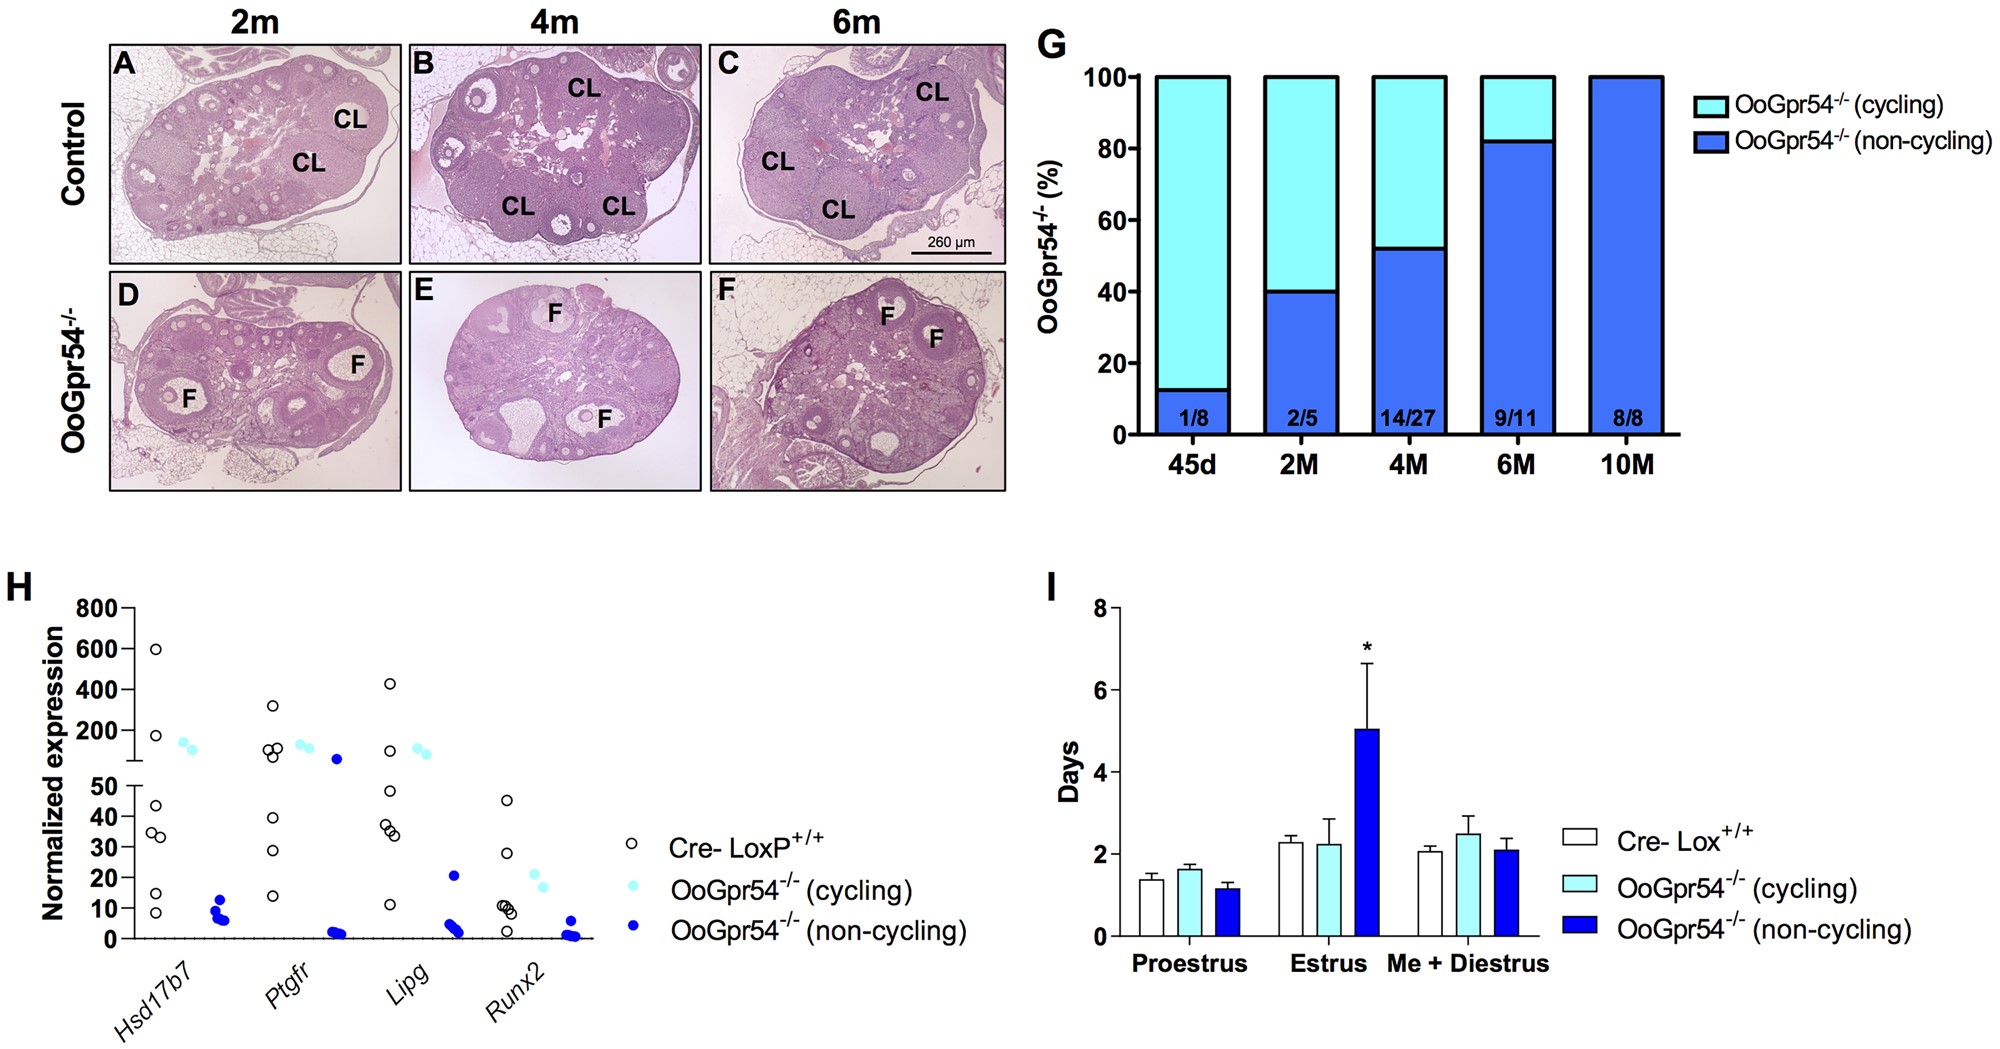
4. ábra. Progresszív ovulációs változásokat jelentettek petesejtek szelektív Gpr54/Kiss1r deléciójával rendelkező egerekben.[6]
A panelek (AF) a kontroll és az OoGpr54-/- egerek petefészek-szövettanát mutatják a jelzett életkorban. A (G) panel a sárgatest nélküli OoGpr54−/− nőstények arányát foglalja össze, a (H) panel a kiválasztott RNS-szekvenálási eredményeket, az (I) panel pedig az ivarzási ciklus méréseit mutatja be. A csoportok méretét és a statisztikai módszereket az eredeti kiadvány tartalmazza.[6]
Kutatási korlátok
A fent összefoglalt tanulmányok nem mindegyike értékeli ugyanazt a kisspeptin molekuláris formáját. A KISS1 prekurzor számos bioaktív peptiddé dolgozható fel, beleértve a KP54-et, KP14-et, KP13-at és KP10-et, amelyek ugyanazt a C-terminális dekapeptidet tartalmazzák, de hosszukban és farmakokinetikai viselkedésükben különböznek. A Wu-tanulmány KP54-et és TAK448-at használt, míg más idézett munkák endogén kisspeptin jelátvitelt, receptor knockout modelleket vagy olyan kisspeptin készítményeket vizsgáltak, amelyeket nem egy kereskedelmi KP-10 kutatási anyag közvetlen összehasonlítására terveztek.[2,3,4,6,7]
A KISS1R egy AG osztályba tartozó fehérjéhez kapcsolt receptor, és leginkább a Gq/11 jelátvitelről ismert, bár a legújabb strukturális és funkcionális kutatások a Gi/o-hoz való kapcsolódást is támogatják bizonyos kísérleti körülmények között.[2] A peptid izoformájában, a receptor expressziójában, a fajban, a szöveti kontextusban, az expozíciós útvonalban és a kísérleti tervezésben mutatkozó különbségek befolyásolhatják a megfigyelt választ. Az egér- és patkánymodellek eredményeit ezért az egyes publikációkban leírt pontos peptidekhez, receptormodellekhez és kísérleti feltételekhez kell kötni.[2,7]
A COCER Peptides a Kisspeptin-10-et kizárólag laboratóriumi kutatási és analitikai célokra kínálja. Nem emberi vagy állatgyógyászati használatra készült. A fent leírt kutatás összefoglalja a harmadik féltől származó publikációkban közölt megállapításokat, és nem a klinikai hatékonyságra, biztonságosságra, diagnózisra, kezelésre, megelőzésre vagy használati utasításra vonatkozik.


