

|
1 kit (10 fiale)
| Quantità: | |
|---|---|
▎ della kisspeptina Struttura
Fonte: PubChem |
Sequenza:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF Formula molecolare: C 258H 401N 79O78 Peso Molecolare: 5857 g/mol PubChem CID:71306396 Sinonimi: Proteina KISS-1;Kisspeptins |
▎ sulla kisspeptina Ricerca
Sfondo molecolare
La kisspeptina-10 (KP-10) è un frammento C-terminale di 10 aminoacidi del precursore della kisspeptina derivato da KISS1. La sua sequenza di aminoacidi è Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2) e lega il recettore accoppiato a proteine G KISS1R. PubChem elenca la Kisspeptin-10 umana con il codice CID 25240297, con la formula molecolare C63H83N17O14 e un peso molecolare di circa 1302,4 g/mol.[1,8]
Progressi della ricerca
Zhangsong Wu e colleghi hanno determinato le strutture crio-EM dei complessi KISS1R-Gq e KISS1R-Gi legati all'agonista sintetico TAK448, insieme a un complesso KISS1R-Gq legato al KP54 endogeno. I test funzionali nello stesso studio hanno indicato che KISS1R può accoppiarsi al percorso Gi/o oltre al percorso Gq/11 stabilito. Gli autori hanno riportato differenze strutturali nei circuiti extracellulari e intracellulari dei recettori e nell'interfaccia della subunità Gα che possono contribuire alla selettività dell'accoppiamento delle proteine G. Questo studio strutturale ha utilizzato KP54 e TAK448 anziché KP-10 come ligandi legati.[2]
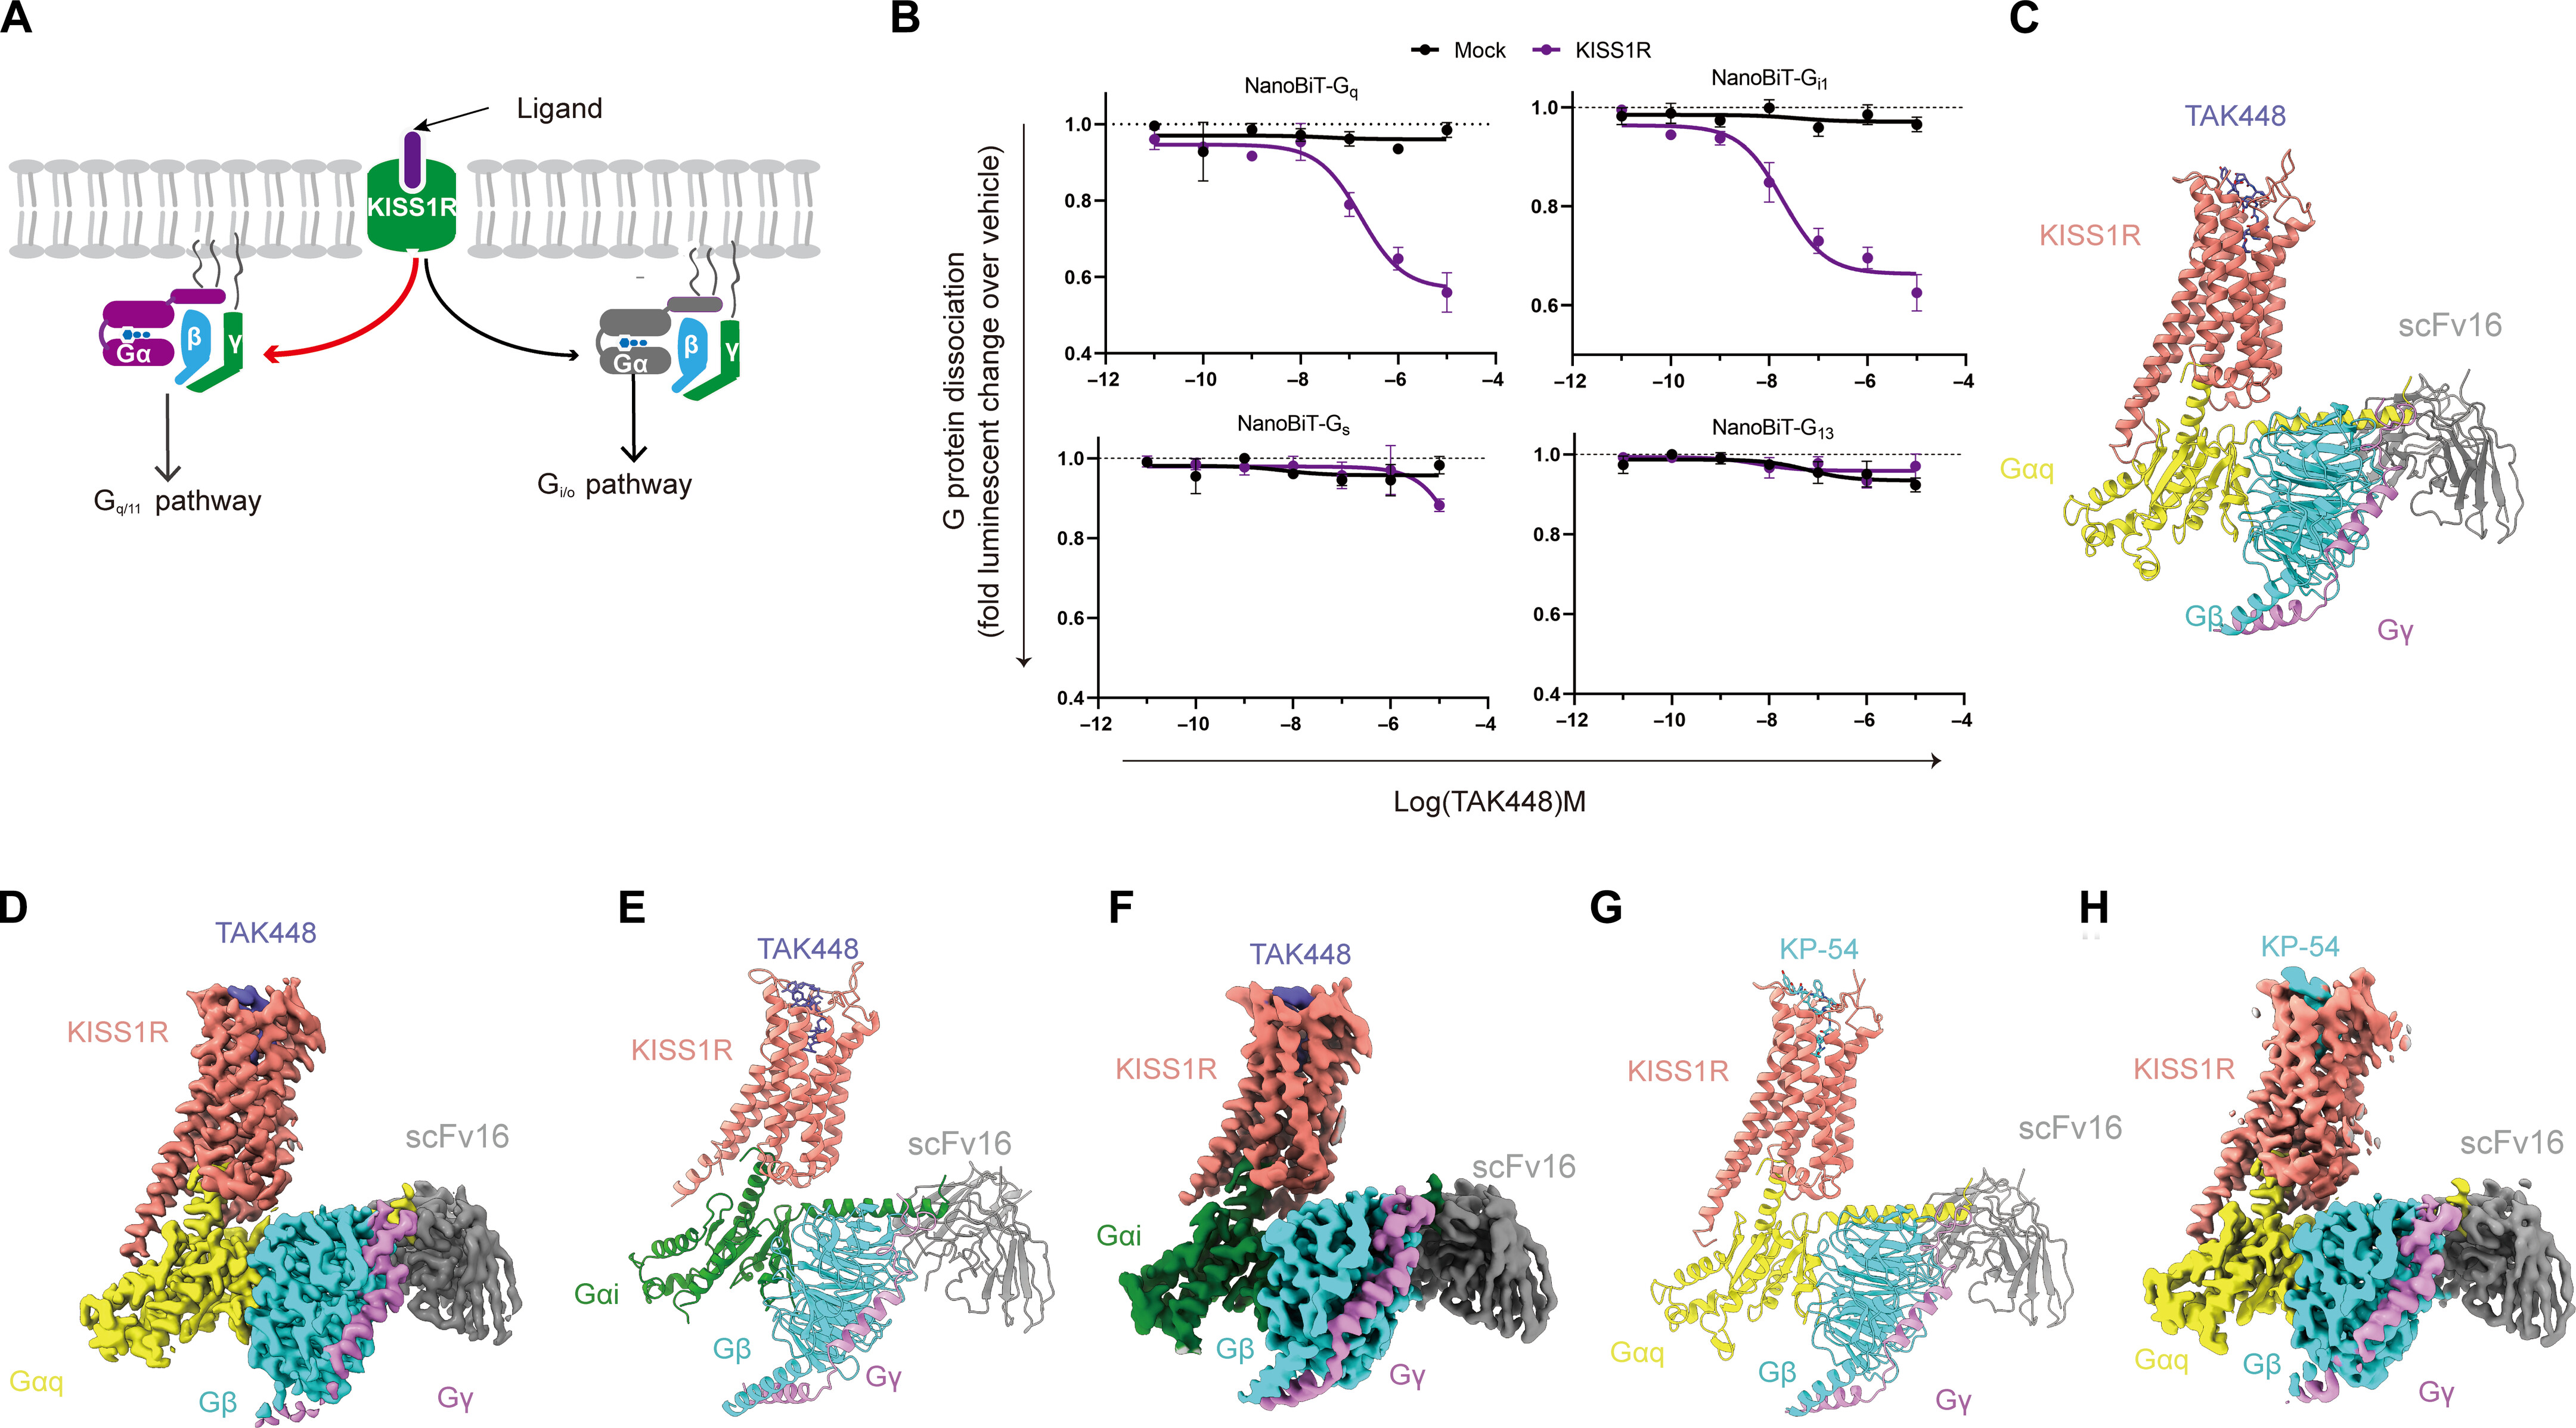
Fig1. Strutture Cryo-EM dei complessi proteici KISS1R-G riportate con TAK448 e KP54 nello studio citato.[2]
(A) Rappresentazione schematica dell'accoppiamento della proteina G KISS1R esaminato nello studio di origine. (B) Saggi di dissociazione della proteina G NanoBiT per i membri della proteina G indicati in seguito all'esposizione a TAK448. (CH) Modelli Cryo-EM e mappe dei complessi TAK448-KISS1R-Gq, TAK448-KISS1R-Gi e KP54-KISS1R-Gq. Le condizioni sperimentali e i dettagli statistici sono riportati nella pubblicazione originale.[2]
Jenny Clarkson e Allan Herbison hanno studiato lo sviluppo postnatale delle popolazioni di neuroni kisspeptina e le loro proiezioni sui neuroni GnRH nei topi. Utilizzando un antisiero generato contro la kisspeptina-10 di topo, hanno identificato popolazioni immunoreattive alla kisspeptina nella regione periventricolare anteroventrale/preottica, nell'ipotalamo dorsomediale e nel nucleo arcuato. Gli autori hanno riportato una marcata differenza tra le donne dominanti nel numero dei neuroni kisspeptina AVPV/PeN e hanno osservato strette apposizioni tra le fibre kisspeptina e i corpi cellulari dei neuroni GnRH che emergevano durante lo sviluppo postnatale. Questo lavoro ha caratterizzato l'espressione e lo sviluppo neuronale endogeno piuttosto che gli effetti di un materiale KP-10 fornito esternamente.[3]
Alexander S. Kauffman e colleghi hanno utilizzato topi adulti wild-type (WT) e knockout (KO) GPR54/KISS1R per esaminare il ruolo della segnalazione del recettore kisspeptina nel comportamento sessualmente dimorfico e nello sviluppo neurale. I maschi e le femmine KO con GPR54 sostituito dall'ormone hanno mantenuto il comportamento copulatorio tipico del sesso, mentre sono state osservate differenze nella preferenza del partner olfattivo e in diversi tratti neurali sessualmente dimorfici. Gli autori hanno concluso che la segnalazione GPR54 non era necessaria per il comportamento copulatorio degli adulti nelle condizioni di sostituzione ormonale utilizzate, ma era coinvolta nello sviluppo di tratti sessualmente dimorfici selezionati.[4]
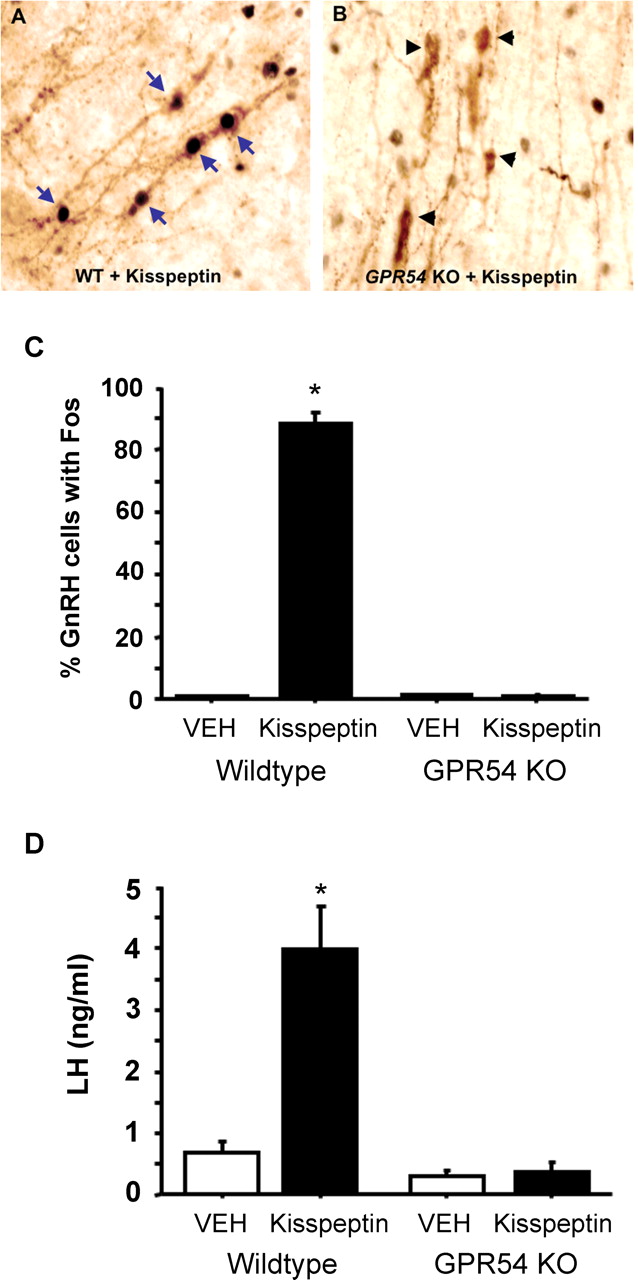
Fig2. Immunoreattività del neurone GnRH Fos e misurazioni dell'LH plasmatico riportate dopo esposizione intracerebroventricolare alla kisspeptina in topi maschi WT e GPR54 KO.[4]
*p < 0,05 rispetto al gruppo WT trattato con veicolo, come riportato nello studio originale.[4]
Oscar González-Flores e colleghi hanno esaminato l'esposizione alla kisspeptina intracerebroventricolare in ratti ovariectomizzati trattati con estradiolo benzoato. Gli autori hanno misurato il quoziente di lordosi e l'intensità del riflesso della lordosi e quindi hanno utilizzato l'antagonista KISS1R Kiss-234, l'antagonista del recettore del progesterone RU486 e l'antide antagonista del recettore del GnRH-1 per esaminare il coinvolgimento dei recettori. L’esposizione alla kisspeptina è stata associata a misurazioni della lordosi più elevate nel modello del ratto, mentre il pretrattamento con l’antagonista ha ridotto la risposta in punti temporali selezionati. I risultati hanno supportato il coinvolgimento della segnalazione del recettore KISS1R, del progesterone e del GnRH nelle condizioni dello studio.[5]
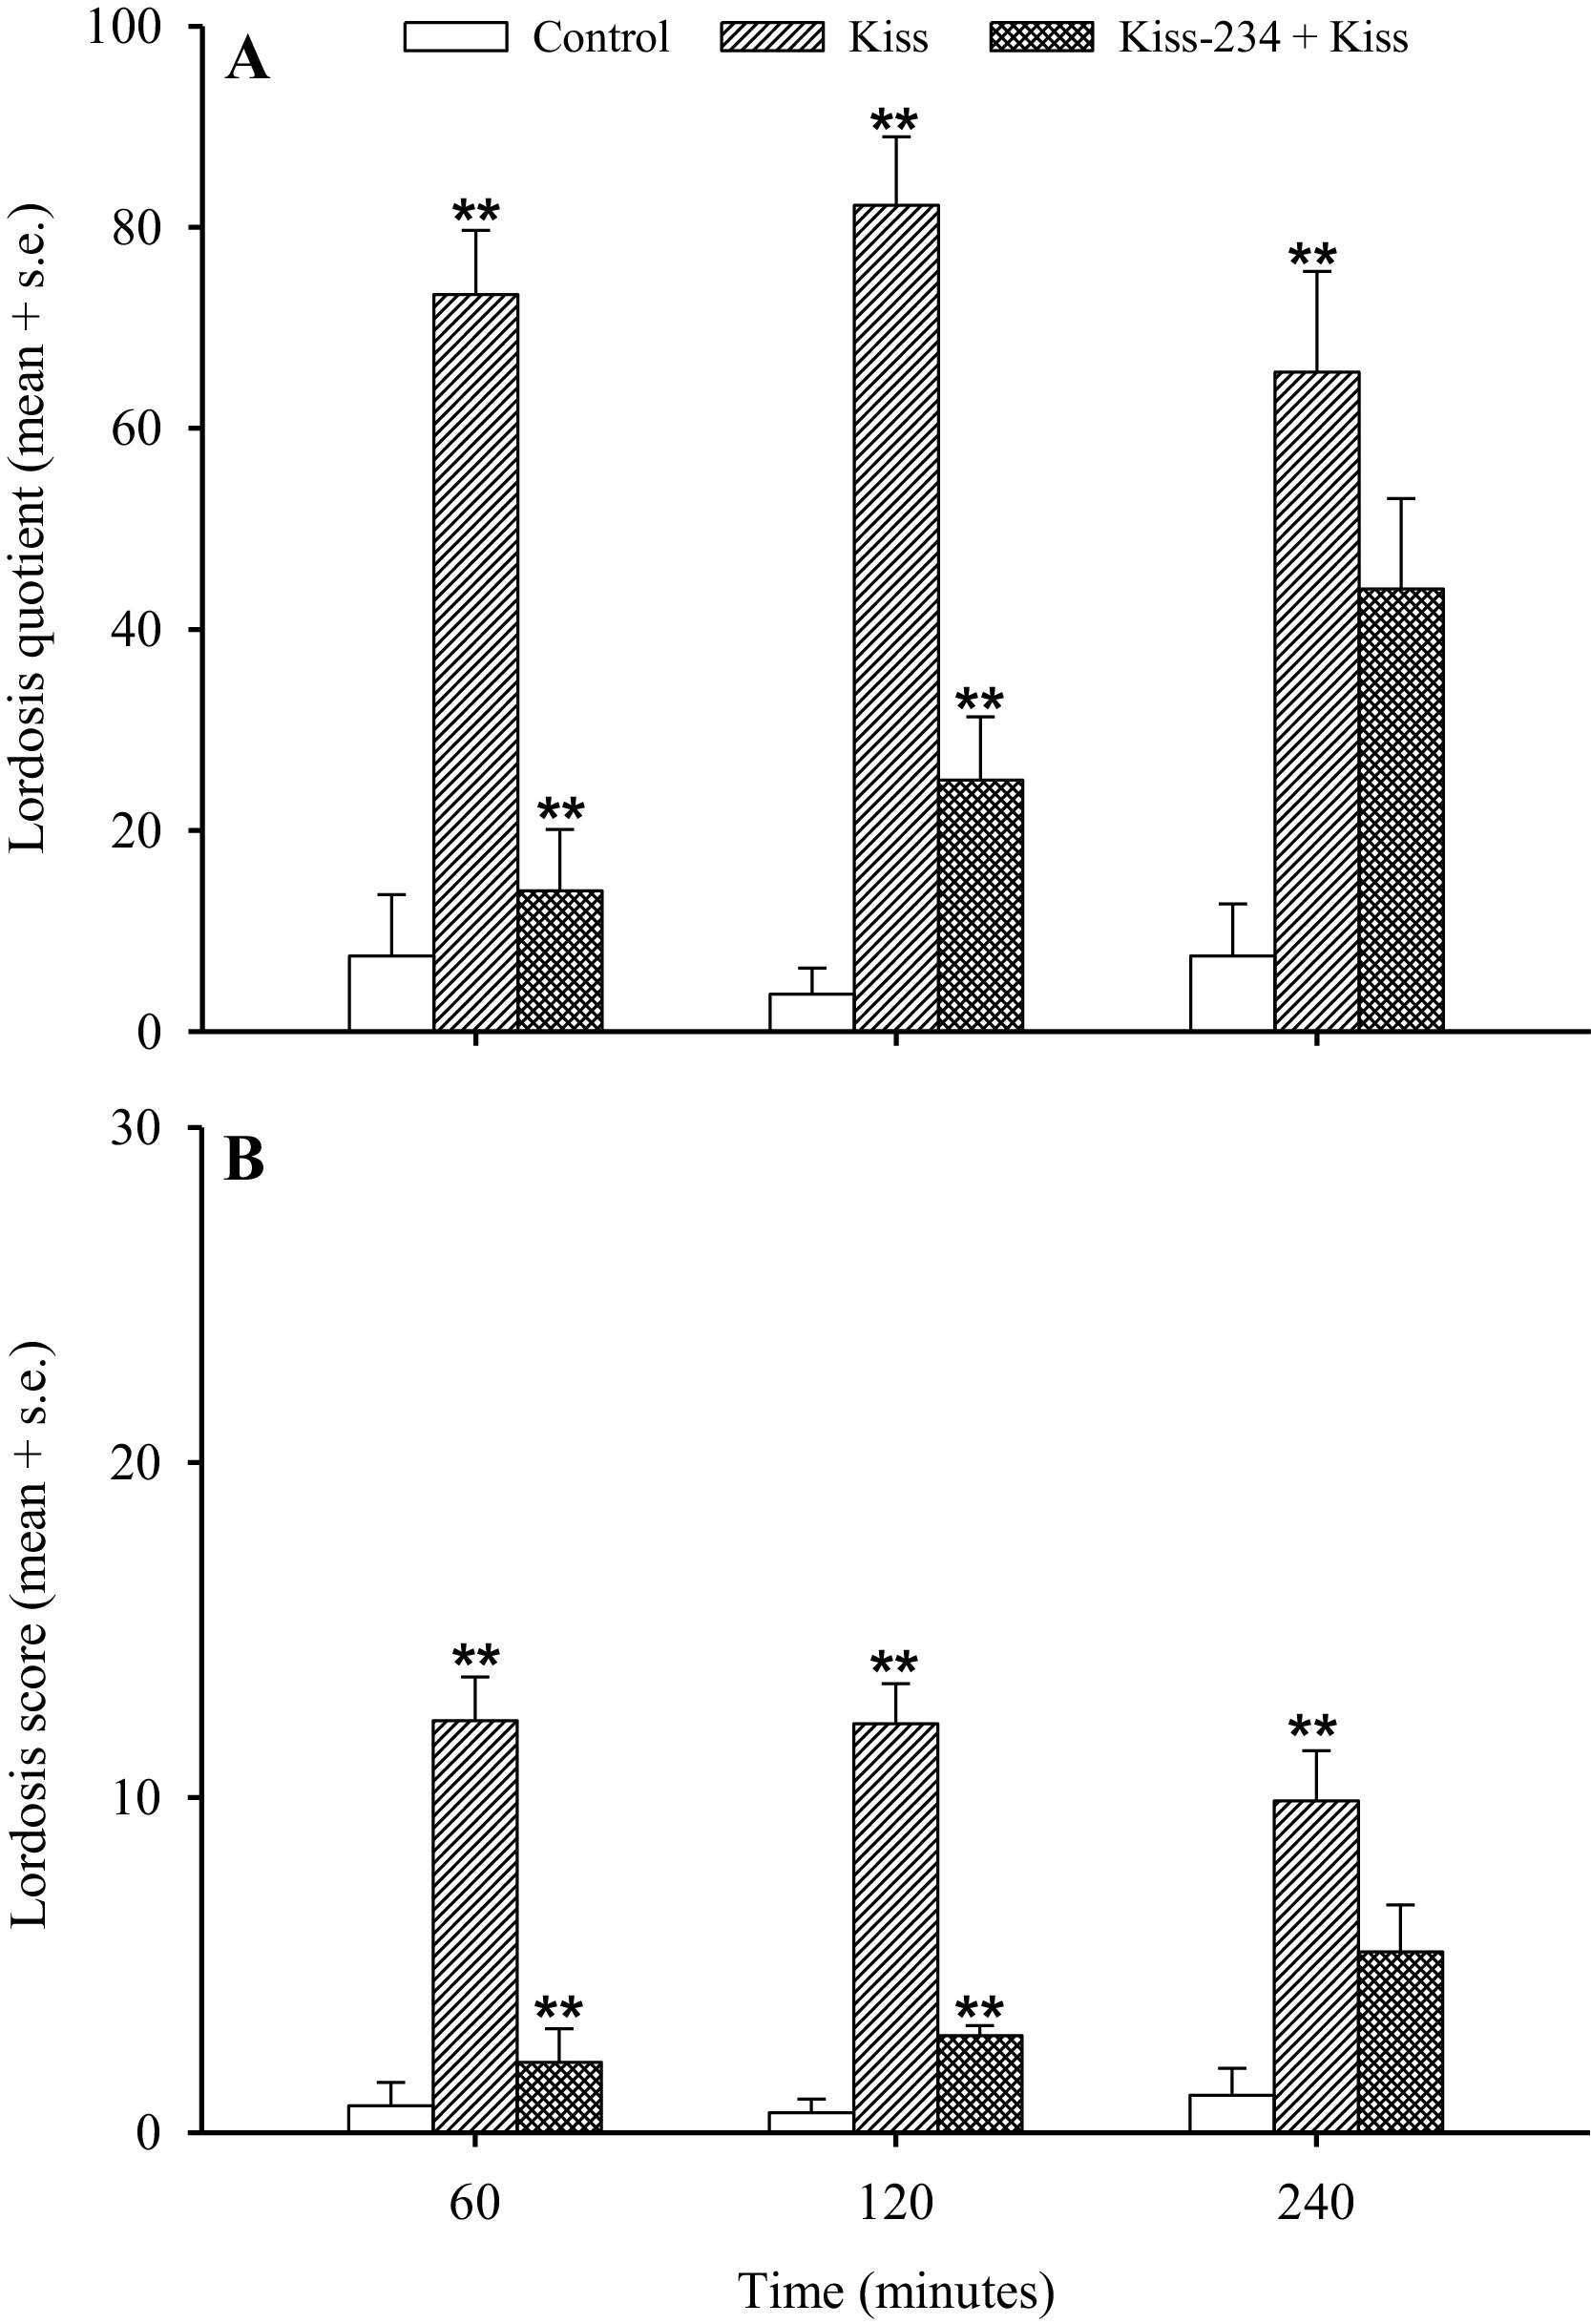
Fig3. Misurazioni della lordosi riportate dopo esposizione alla kisspeptina con o senza l'antagonista KISS1R Kiss-234 in ratti ovariectomizzati.[5]
Lo studio originale ha confrontato la kisspeptina e i gruppi di controllo e ha valutato l’effetto del pretrattamento con Kiss-234 sul quoziente di lordosi e sull’intensità del riflesso della lordosi. Le dimensioni dei gruppi, le dosi di studio, i punti temporali e i confronti statistici sono riportati nella pubblicazione originale.[5]
Suvi T. Ruohonen e colleghi hanno generato topi con delezione selettiva degli ovociti di Gpr54/Kiss1r incrociando una linea Gdf9-Cre con una linea Gpr54 LoxP. I topi OoGpr54−/− risultanti sono stati sottoposti ad analisi fenotipiche, istologiche, ormonali e molecolari in diverse età postnatali. Gli autori hanno riportato un esordio della pubertà normale ma un progressivo fallimento ovulatorio con l'età, inclusi cambiamenti istologici e profili di espressione genica ovarica alterati. Poiché questo studio ha utilizzato la delezione del recettore anziché la somministrazione di un peptide kisspeptina, i suoi risultati riguardano il ruolo biologico della segnalazione KISS1R ovarica e non sono uno studio diretto sull'esposizione a KP-10.[6]
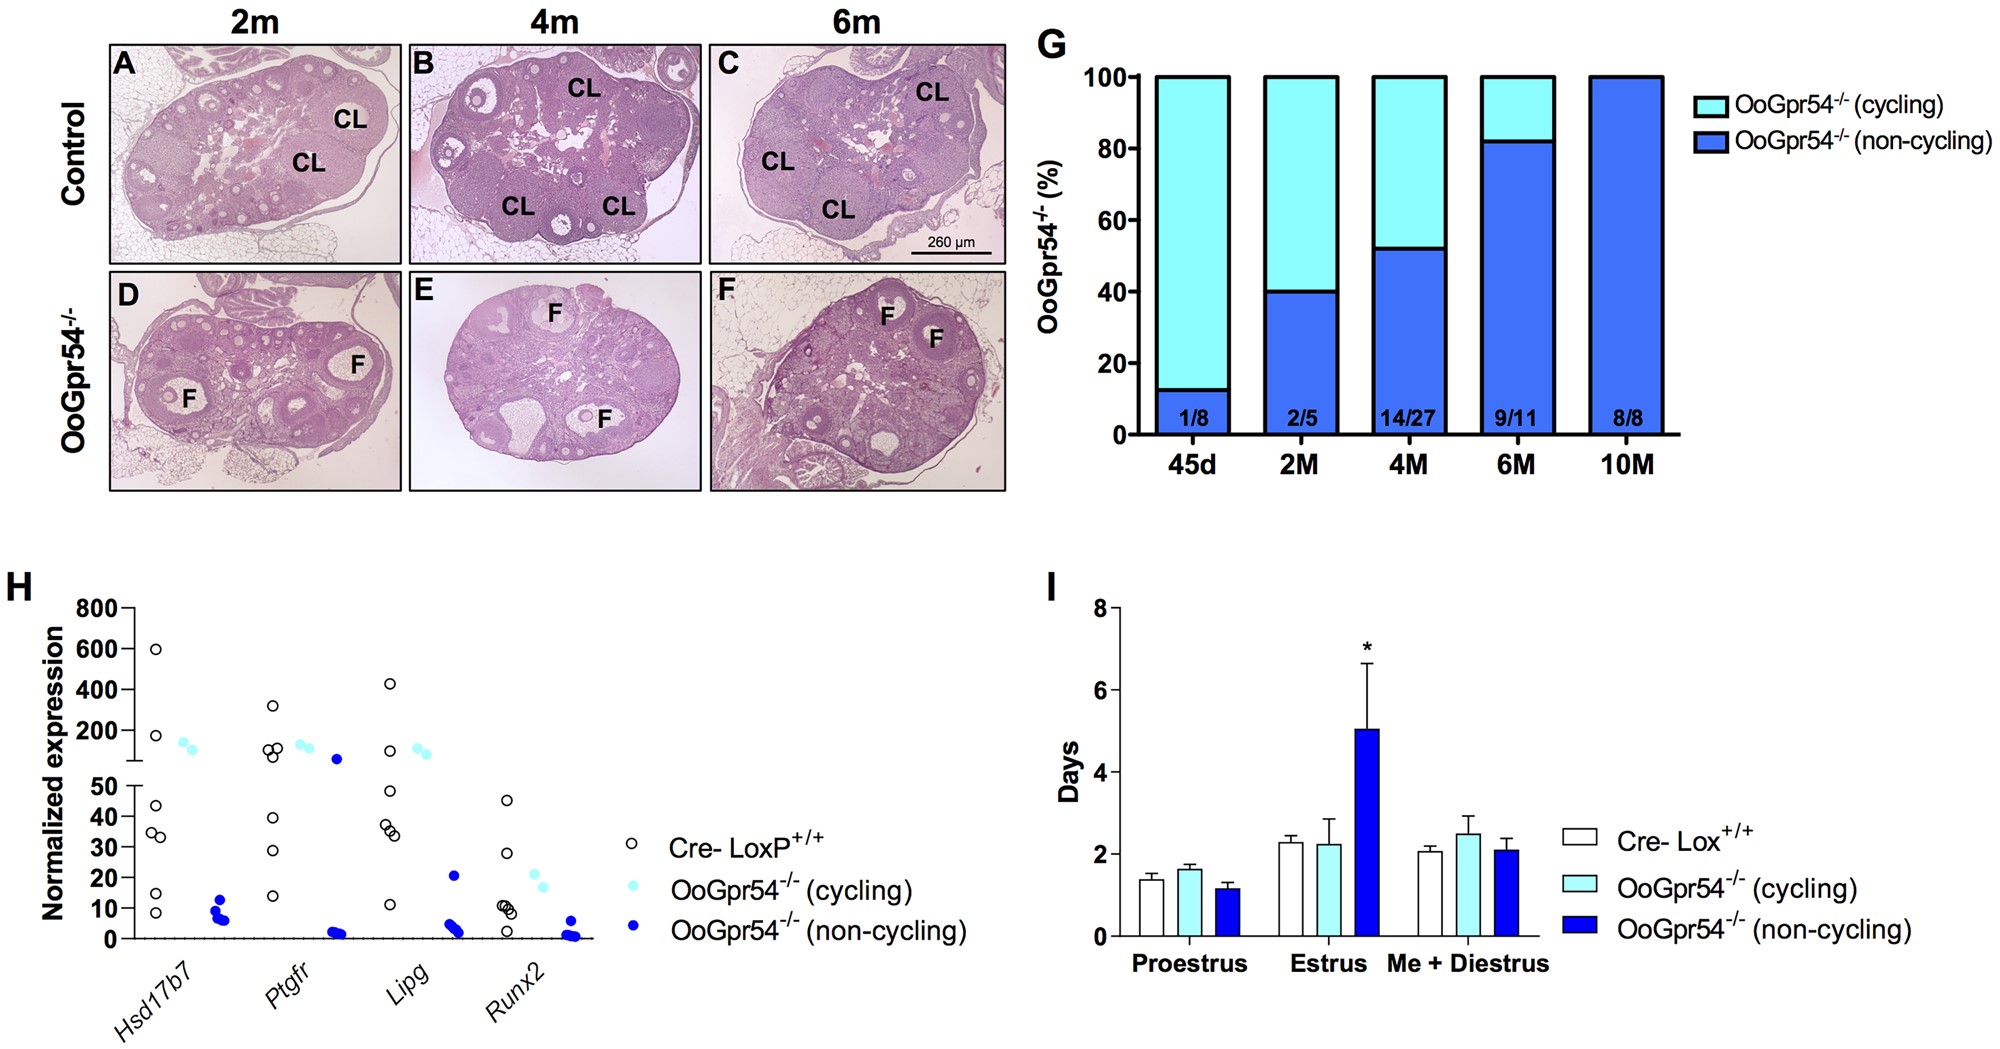
Fig4. Cambiamenti ovulatori progressivi riportati nei topi con delezione Gpr54/Kiss1r ovocita-selettiva.[6]
I pannelli (AF) mostrano un'istologia ovarica rappresentativa dei topi di controllo e OoGpr54−/− alle età indicate. Il pannello (G) riassume la proporzione di femmine OoGpr54−/− senza corpi lutei, il pannello (H) presenta risultati selezionati del sequenziamento dell'RNA e il pannello (I) mostra le misurazioni del ciclo estrale. Le dimensioni dei gruppi e i metodi statistici sono riportati nella pubblicazione originale.[6]
Limitazioni della ricerca
Gli studi sopra riassunti non valutano tutti la stessa forma molecolare della kisspeptina. Il precursore KISS1 può essere trasformato in diversi peptidi bioattivi, tra cui KP54, KP14, KP13 e KP10, che condividono lo stesso decapeptide C-terminale ma differiscono per lunghezza e comportamento farmacocinetico. Lo studio Wu ha utilizzato KP54 e TAK448, mentre altri lavori citati hanno esaminato la segnalazione endogena della kisspeptina, modelli knockout dei recettori o preparazioni di kisspeptina che non erano progettate come confronti diretti con un materiale di ricerca commerciale KP-10.[2,3,4,6,7]
KISS1R è un recettore accoppiato a proteine di classe AG ed è meglio conosciuto per la segnalazione Gq/11, sebbene recenti lavori strutturali e funzionali supportino anche l'accoppiamento a Gi/o in specifiche condizioni sperimentali.[2] Differenze nell’isoforma del peptide, nell’espressione del recettore, nella specie, nel contesto tissutale, nella via di esposizione e nel disegno sperimentale possono influenzare la risposta osservata. I risultati dei modelli di topo e ratto dovrebbero pertanto rimanere legati all'esatto peptide, al modello del recettore e alle condizioni sperimentali descritte in ciascuna pubblicazione.[2,7]
COCER Peptides presenta Kisspeptin-10 esclusivamente per la ricerca di laboratorio e l'uso analitico. Non è destinato all'uso umano o veterinario. La ricerca sopra descritta riassume i risultati riportati in pubblicazioni di terze parti e non costituisce una dichiarazione di efficacia clinica, sicurezza, diagnosi, trattamento, prevenzione o istruzioni per l'uso.


