

|
1 комплет (10 вијали)
| Количина: | |
|---|---|
▎ на киспептин Структура
Извор: PubChem |
Секвенца:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF Молекуларна формула: C 258H 401N 79O78 Молекуларна тежина: 5857 g/mol PubChem CID: 71306396 Синоними: протеин KISS-1; Киспептини |
▎ Киспептин истражување
Молекуларна позадина
Киспептин-10 (КП-10) е 10-амино-киселински Ц-терминален фрагмент на прекурсорот на киспептин добиен од KISS1. Нејзината аминокиселинска секвенца е Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2) и го врзува рецепторот KISS1R, поврзан со G протеин. PubChem го наведува човечкиот Киспептин-10 под CID 25240297, со молекуларна формула C63H83N17O14 и молекуларна тежина од приближно 1302,4 g/mol.[1,8]
Напредокот на истражувањето
Џангсонг Ву и неговите колеги утврдија крио-ЕМ структури на комплексите KISS1R-Gq и KISS1R-Gi врзани за синтетичкиот агонист TAK448, заедно со комплексот KISS1R-Gq врзан за ендогениот KP54. Функционалните анализи во истата студија покажаа дека KISS1R може да се спои со патеката Gi/o како додаток на воспоставената патека Gq/11. Авторите пријавија структурни разлики во екстрацелуларните и интрацелуларните јамки на рецепторите и во интерфејсот на Gα-судединицата што може да придонесе за селективноста на спојувањето на Г-протеинот. Оваа структурна студија користеше KP54 и TAK448 наместо KP-10 како врзани лиганди.[2]
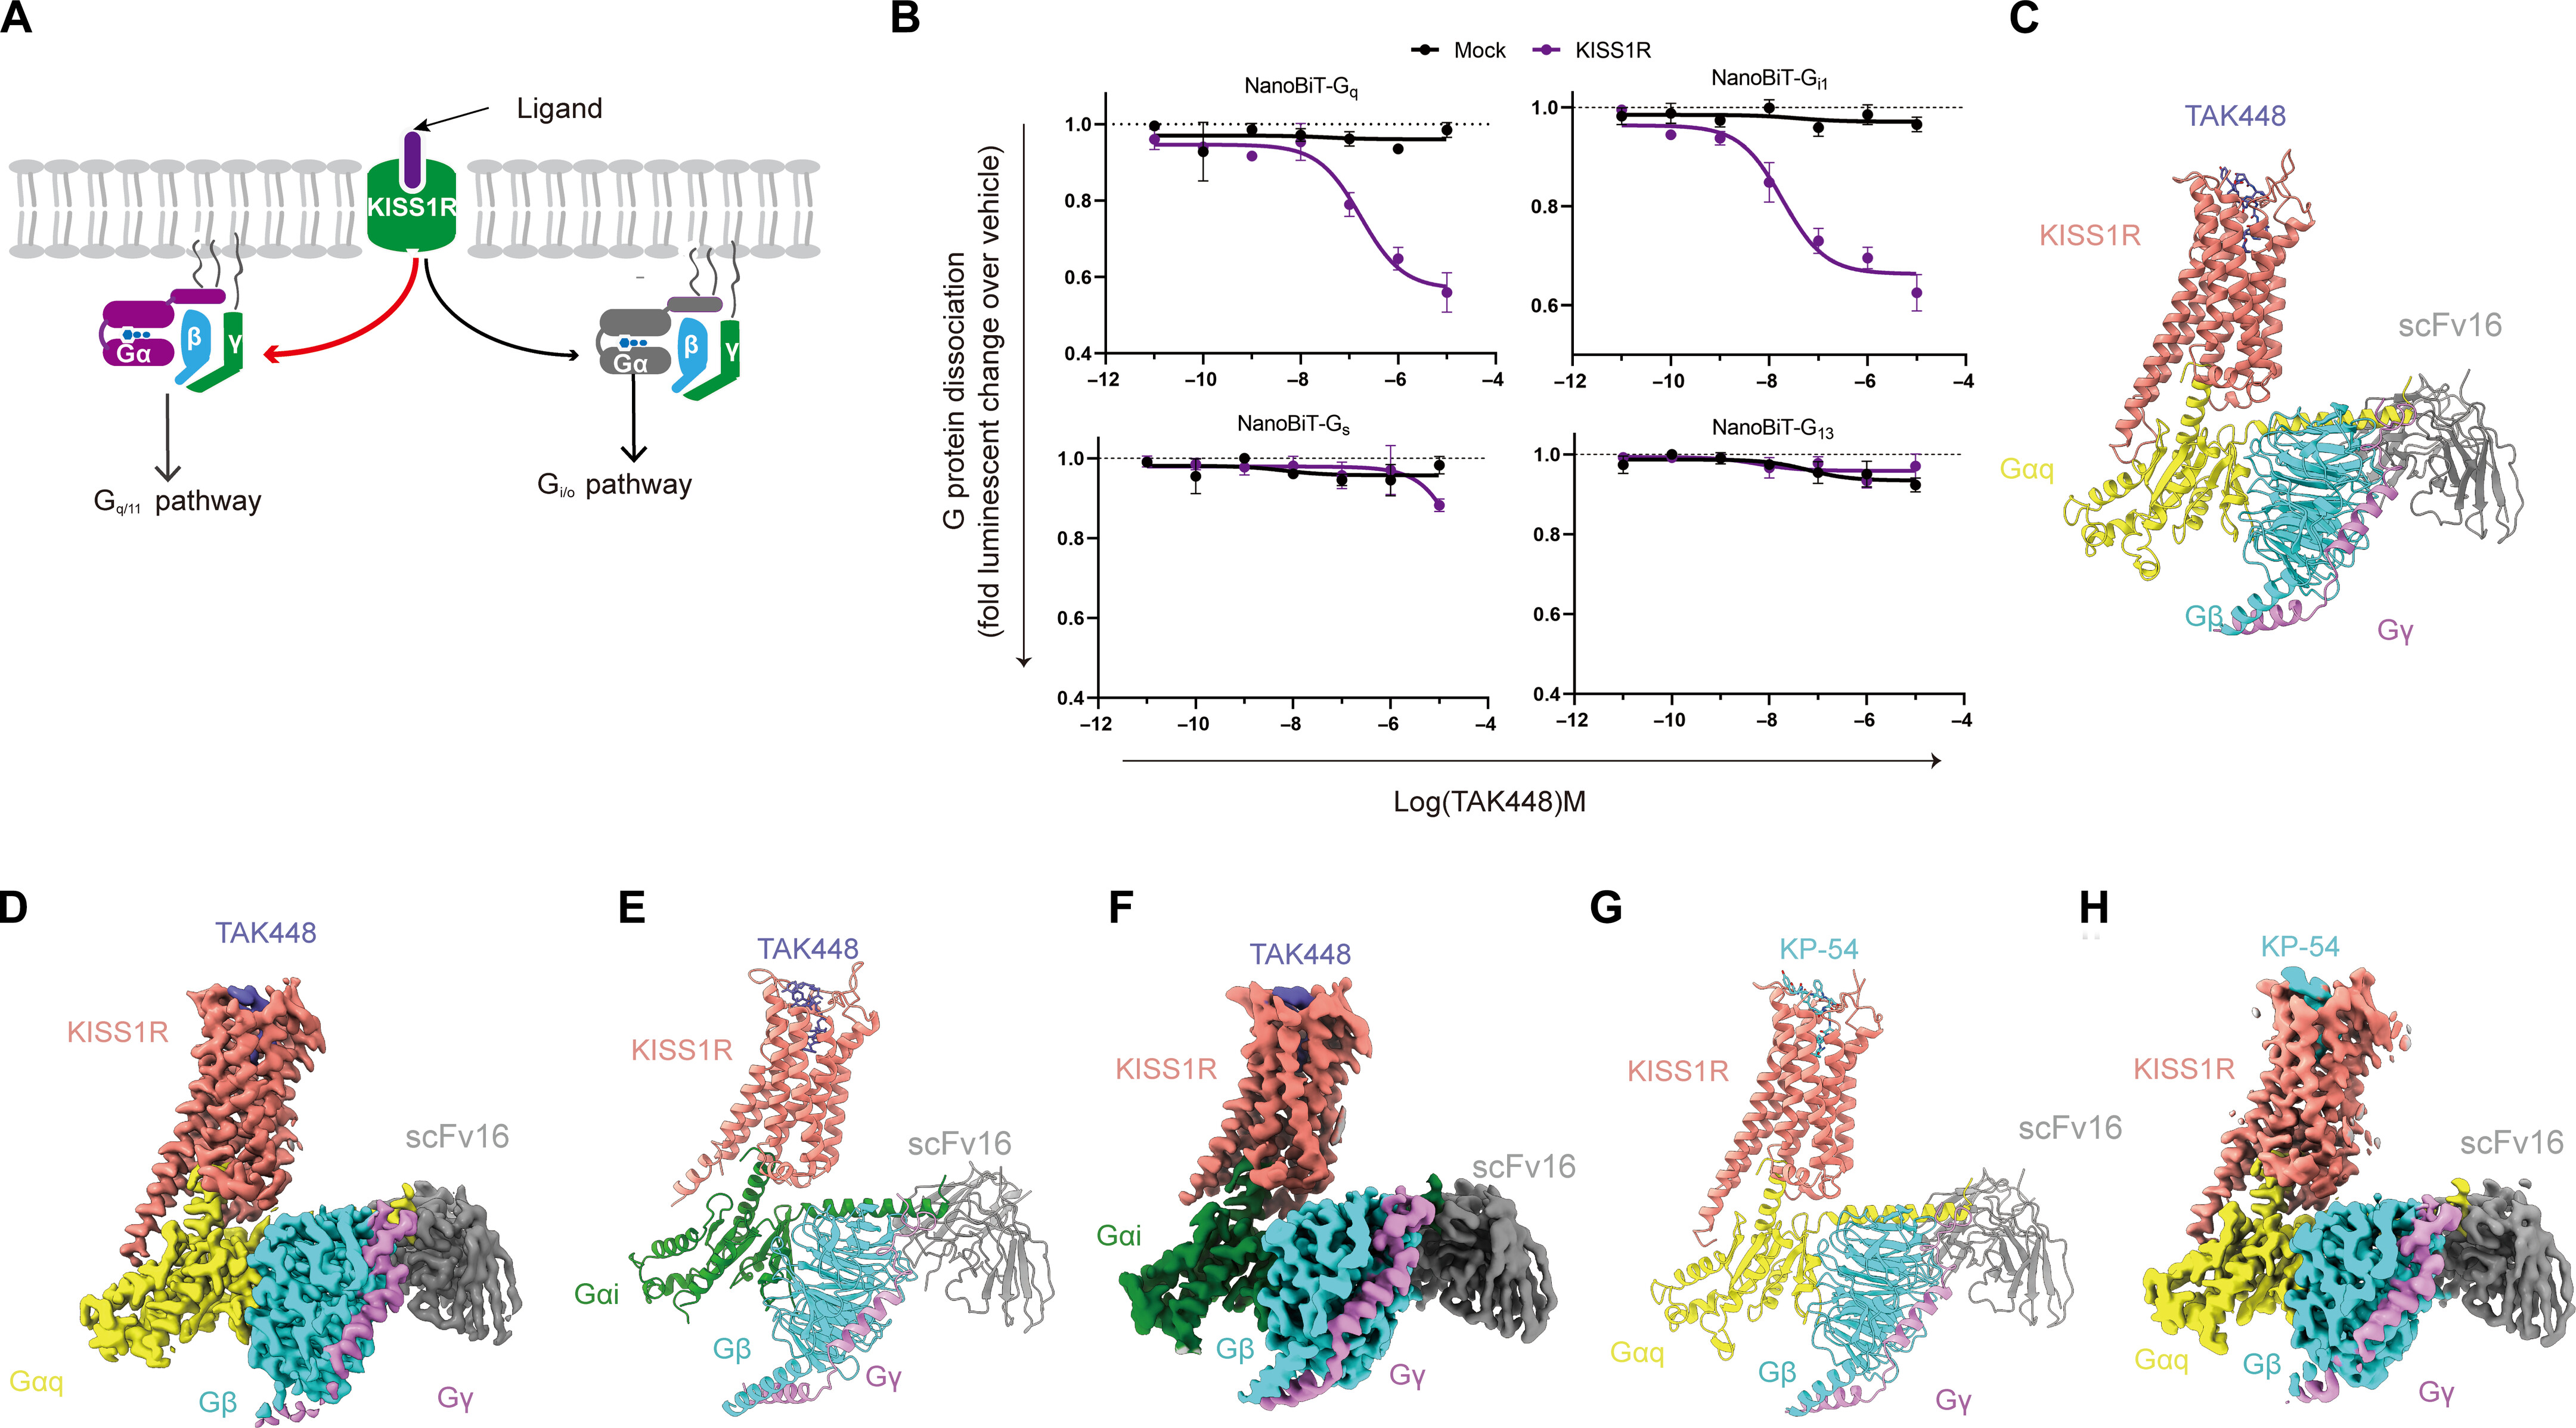
Сл1. Крио-ЕМ структури на протеинските комплекси KISS1R-G пријавени со TAK448 и KP54 во цитираната студија.[2]
(А) Шематски приказ на KISS1R Г-протеинската спојка испитувана во изворната студија. (Б) НаноБиТ анализи на дисоцијација на Г-протеинот за наведените членови на Г-протеин по изложување на ТАК448. (CH) Cryo-EM модели и мапи на комплексите TAK448-KISS1R-Gq, TAK448-KISS1R-Gi и KP54-KISS1R-Gq. Експерименталните услови и статистичките детали се пријавени во оригиналната публикација.[2]
Џени Кларксон и Алан Хербисон го проучувале постнаталниот развој на популациите на киспептин невроните и нивните проекции на невроните на GnRH кај глувците. Користејќи антисерум подигнат против киспептин-10 на глушец, тие идентификуваа киспептин-имунореактивни популации во антеровентралниот перивентрикуларен/преоптички перивентрикуларен регион, дорзомедијалниот хипоталамус и лачното јадро. Авторите пријавија забележлива доминантна разлика кај жените во бројот на невроните на киспептин AVPV/PeN и забележаа блиски апозиции помеѓу киспептинските влакна и телата на невроните на GnRH кои се појавуваат за време на постнаталниот развој. Оваа работа го карактеризира ендогениот невронски израз и развој наместо ефектите на надворешно обезбедениот материјал KP-10.[3]
Александар С. Кауфман и колегите користеле возрасни глувци од див тип (WT) и GPR54/KISS1R нокаут (KO) за да ја испитаат улогата на сигнализирањето на киспептин-рецепторот во сексуално диморфното однесување и нервниот развој. Хормонски заменетиот GPR54 KO мажјаците и женките го задржаа типичното полово копулаторно однесување, додека разликите беа забележани во склоноста на олфакторниот партнер и во неколку сексуално диморфни нервни особини. Авторите заклучија дека сигнализацијата GPR54 не е потребна за копулаторно однесување на возрасните под условите за замена на хормони кои се користат, туку е вклучена во развојот на избрани сексуално диморфни особини.[4]
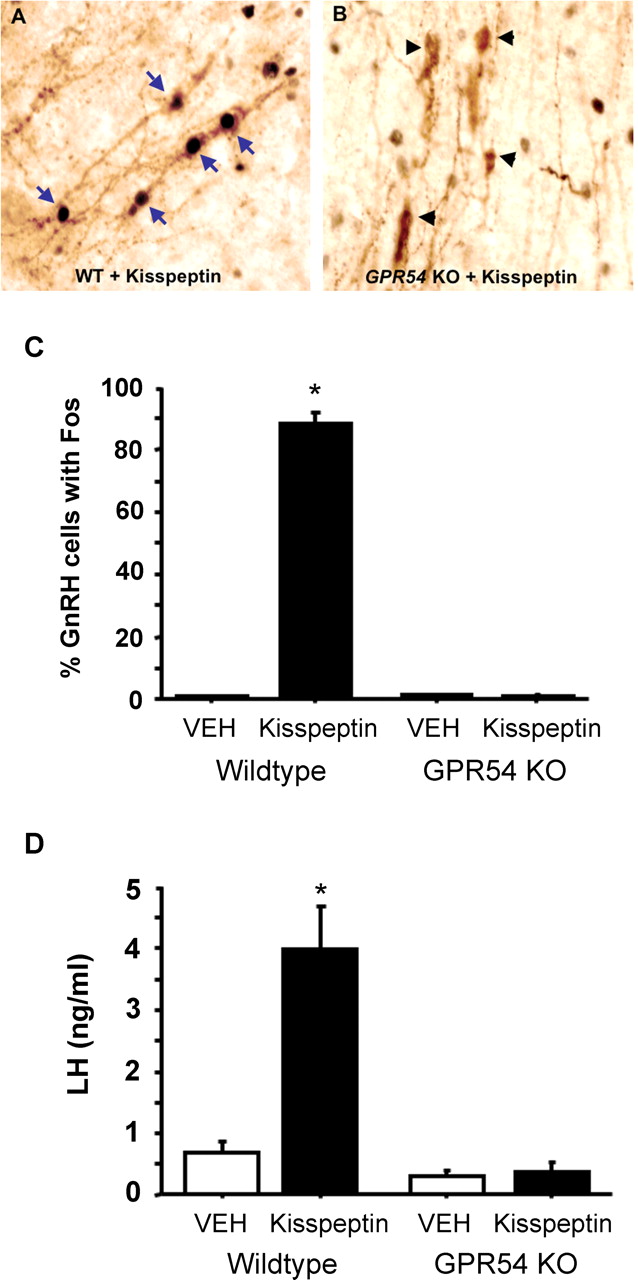
Сл.2. Имунореактивноста на GnRH-неврон Fos и мерењата на LH во плазмата пријавени по интрацеребровентрикуларна изложеност на киспептин кај машки глувци WT и GPR54 KO.[4]
*p <0,05 наспроти WT групата третирана со возило, како што е објавено во оригиналната студија.[4]
Оскар Гонзалес-Флорес и неговите колеги ја испитувале изложеноста на интрацеребровентрикуларниот киспептин кај стаорци со овариектомија, примени со естрадиол бензоат. Авторите го измериле коефициентот на лордоза и интензитетот на рефлексот на лордоза, а потоа го користеле антагонистот Kiss-234 на KISS1R, антагонистот на рецепторот на прогестерон RU486 и антидот на антагонист на рецепторот GnRH-1 за да ја испитаат вклученоста на рецепторот. Изложеноста на киспептин беше поврзана со повисоки мерења на лордоза кај моделот на стаорци, додека предтретманот со антагонисти го намали одговорот во одредени временски точки. Наодите го поддржаа вклучувањето на KISS1R, прогестеронскиот рецептор и сигнализацијата на GnRH-рецепторот под условите на студијата.[5]
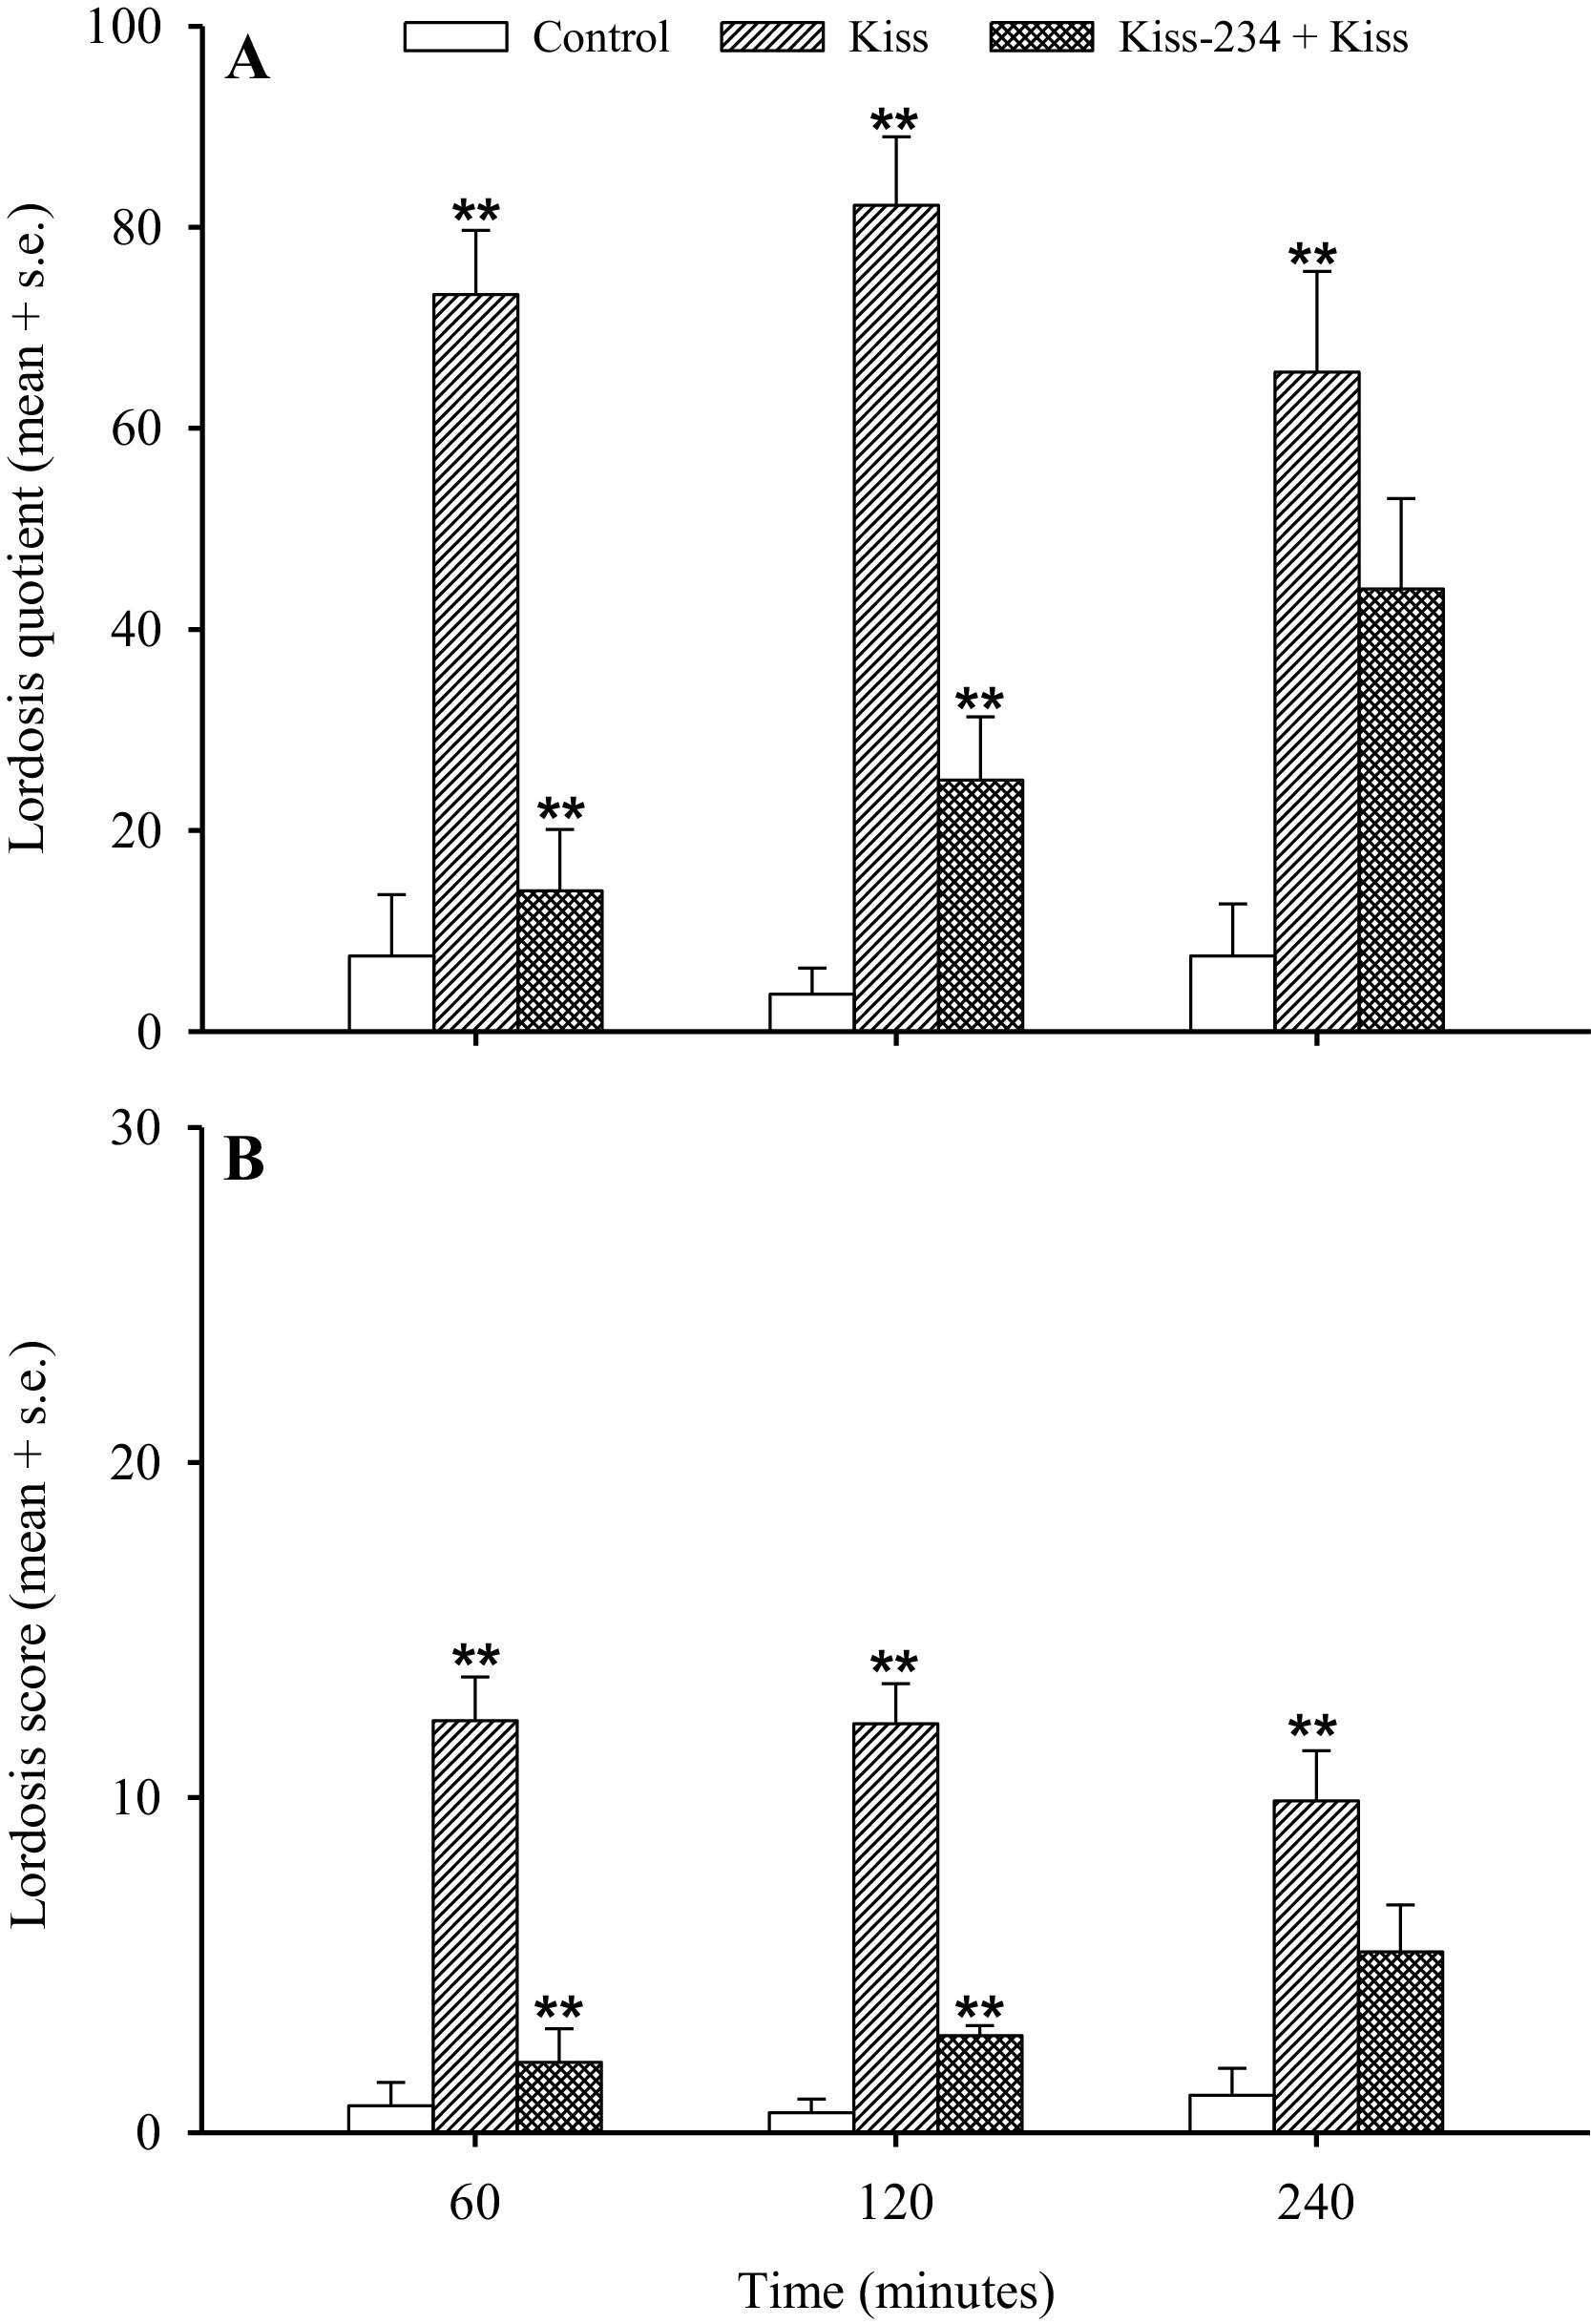
Сл.3. Мерења на лордоза пријавени по изложување на киспептин со или без KISS1R антагонист Kiss-234 кај овариектомизирани стаорци.[5]
Изворната студија ги спореди киспептин и контролните групи и го процени ефектот на предтретманот Kiss-234 врз количникот на лордоза и интензитетот на рефлексот на лордоза. Големините на групите, дозите на студијата, временските точки и статистичките споредби се пријавени во оригиналната публикација.[5]
Суви Т. Рухонен и колегите создадоа глувци со ооцитно селективно бришење на Gpr54/Kiss1r со вкрстување на линијата Gdf9-Cre со линијата Gpr54 LoxP. Добиените OoGpr54-/- глувци биле подложени на фенотипски, хистолошки, хормонални и молекуларни анализи низ неколку постнатални возрасти. Авторите пријавиле нормален почеток на пубертетот, но прогресивна овулаторна инсуфициенција со возраста, вклучувајќи хистолошки промени и променети профили на генска експресија на јајниците. Бидејќи оваа студија користеше бришење на рецепторот наместо давање на киспептински пептид, нејзините наоди се однесуваат на биолошката улога на сигнализацијата KISS1R на јајниците и не се директна студија за изложување на KP-10.[6]
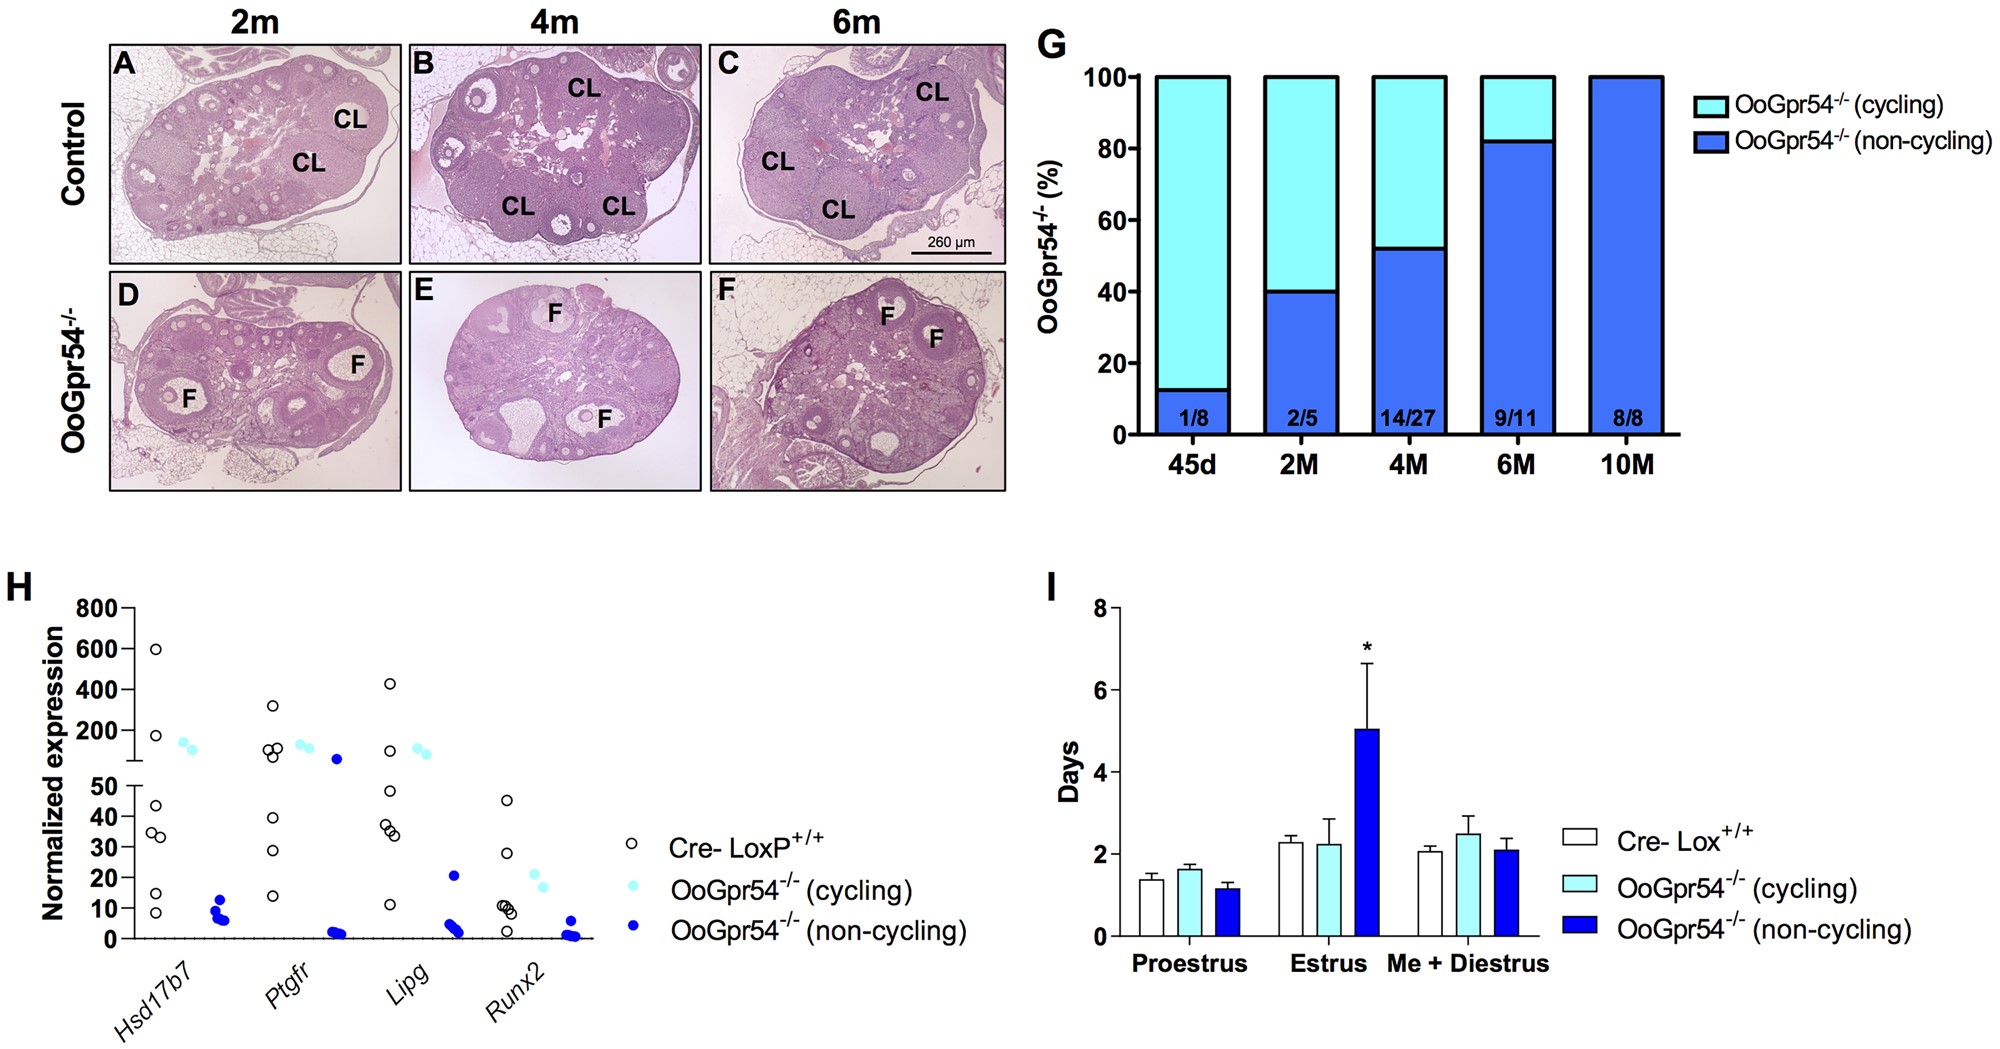
Сл.4. Прогресивни овулаторни промени пријавени кај глувци со ооцитно-селективно бришење Gpr54/Kiss1r.[6]
Панелите (AF) покажуваат репрезентативна хистологија на јајниците од контролната и OoGpr54-/- глувци на наведените возрасти. Панелот (G) го сумира делот на OoGpr54−/− женките без жолти тела, панелот (H) ги прикажува избраните наоди за секвенционирање на РНК, а панелот (I) покажува мерења на еструсен циклус. Големините на групите и статистичките методи се пријавени во оригиналната публикација.[6]
Истражувачки ограничувања
Студиите сумирани погоре не ја оценуваат истата молекуларна форма на киспептин. KISS1 прекурсорот може да се обработи во неколку биоактивни пептиди, вклучувајќи ги KP54, KP14, KP13 и KP10, кои го делат истиот Ц-терминален декапептид, но се разликуваат по должина и фармакокинетско однесување. Студијата на Ву користеше KP54 и TAK448, додека друга цитирана работа испитуваше ендогени киспептински сигнали, модели на нокаут на рецептори или препарати на киспептин кои не беа дизајнирани како директни споредби на комерцијален истражувачки материјал КП-10.[2,3,4,6,7]
KISS1R е рецептор поврзан со протеин од класа AG и е најпознат по сигнализацијата Gq/11, иако неодамнешната структурна и функционална работа исто така поддржува спојување со Gi/o под специфични експериментални услови.[2] Разликите во пептидната изоформа, изразот на рецепторот, видот, ткивниот контекст, патот на изложување и експерименталниот дизајн може да влијаат на набљудуваниот одговор. Според тоа, резултатите од моделите на глувци и стаорци треба да останат поврзани со точниот пептид, модел на рецептор и експериментални услови опишани во секоја публикација.[2,7]
COCER Peptides го претставува Киспептин-10 исклучиво за лабораториско истражување и аналитичка употреба. Не е наменет за човечка или ветеринарна употреба. Истражувањето опишано погоре ги сумира наодите пријавени во публикации од трети страни и не е изјава за клиничка ефикасност, безбедност, дијагноза, третман, превенција или упатство за употреба.


