

|
1 sett (10 hetteglass)
| Mengde: | |
|---|---|
▎ Cagrilintide-struktur
Kilde: PubChem |
Sekvens: Pyr-KCNTATCATQRLAEFLRHSSNNFGPILPPTNVGSNTP CAS: 1415456-99-3 Formel: C 174H 269N 45O 52S2 MW 4409 g/mol |
▎ Cagrilintide Research
Molekylær bakgrunn
Cagrilintide er en syntetisk, langtidsvirkende acylert amylinanalog som består av 37 aminosyrer med en C20-fettdisyremodifikasjon. Den fungerer som en ikke-selektiv agonist ved amylinreseptorer (AMY1R, AMY2R og AMY3R) og kalsitoninreseptoren (CTR). PubChem lister Cagrilintide under CID 171397054, med molekylformelen C194H312N54O59S2 og en molekylvekt på omtrent 4409 g/mol.[7]
Forskningsfremgang
Ved å bruke enkeltkjerne-RNA-sekvensering (snRNA-seq), Ludwig et al. konstruerte et transkriptomisk atlas som omfatter mer enn 530 000 celler fra den kaudale hjernestammen til rotter, mus og makaker og kombinerte dette med romlig transkriptomikk. Etterforskerne brukte cagrilintideksponering for å undersøke nevronpopulasjoner i det dorsale vagale komplekset (DVC). De rapporterte akutte transkripsjonelle responser i Calcr/Ramp3-nevroner i området postrema og, etter lengre eksponering hos rotter, økt Prlh-ekspresjon i NTS Calcr/Prlh-neuroner. Oppfølgingseksperimenter støttet en rolle for disse nevronpopulasjonene i de langsiktige matinntaks- og kroppsvektresponsene observert i rottemodellen. Funnene beskriver nevrale kretsløp og transkriptomiske responser på tvers av arter under de eksperimentelle forholdene som ble brukt.[2]
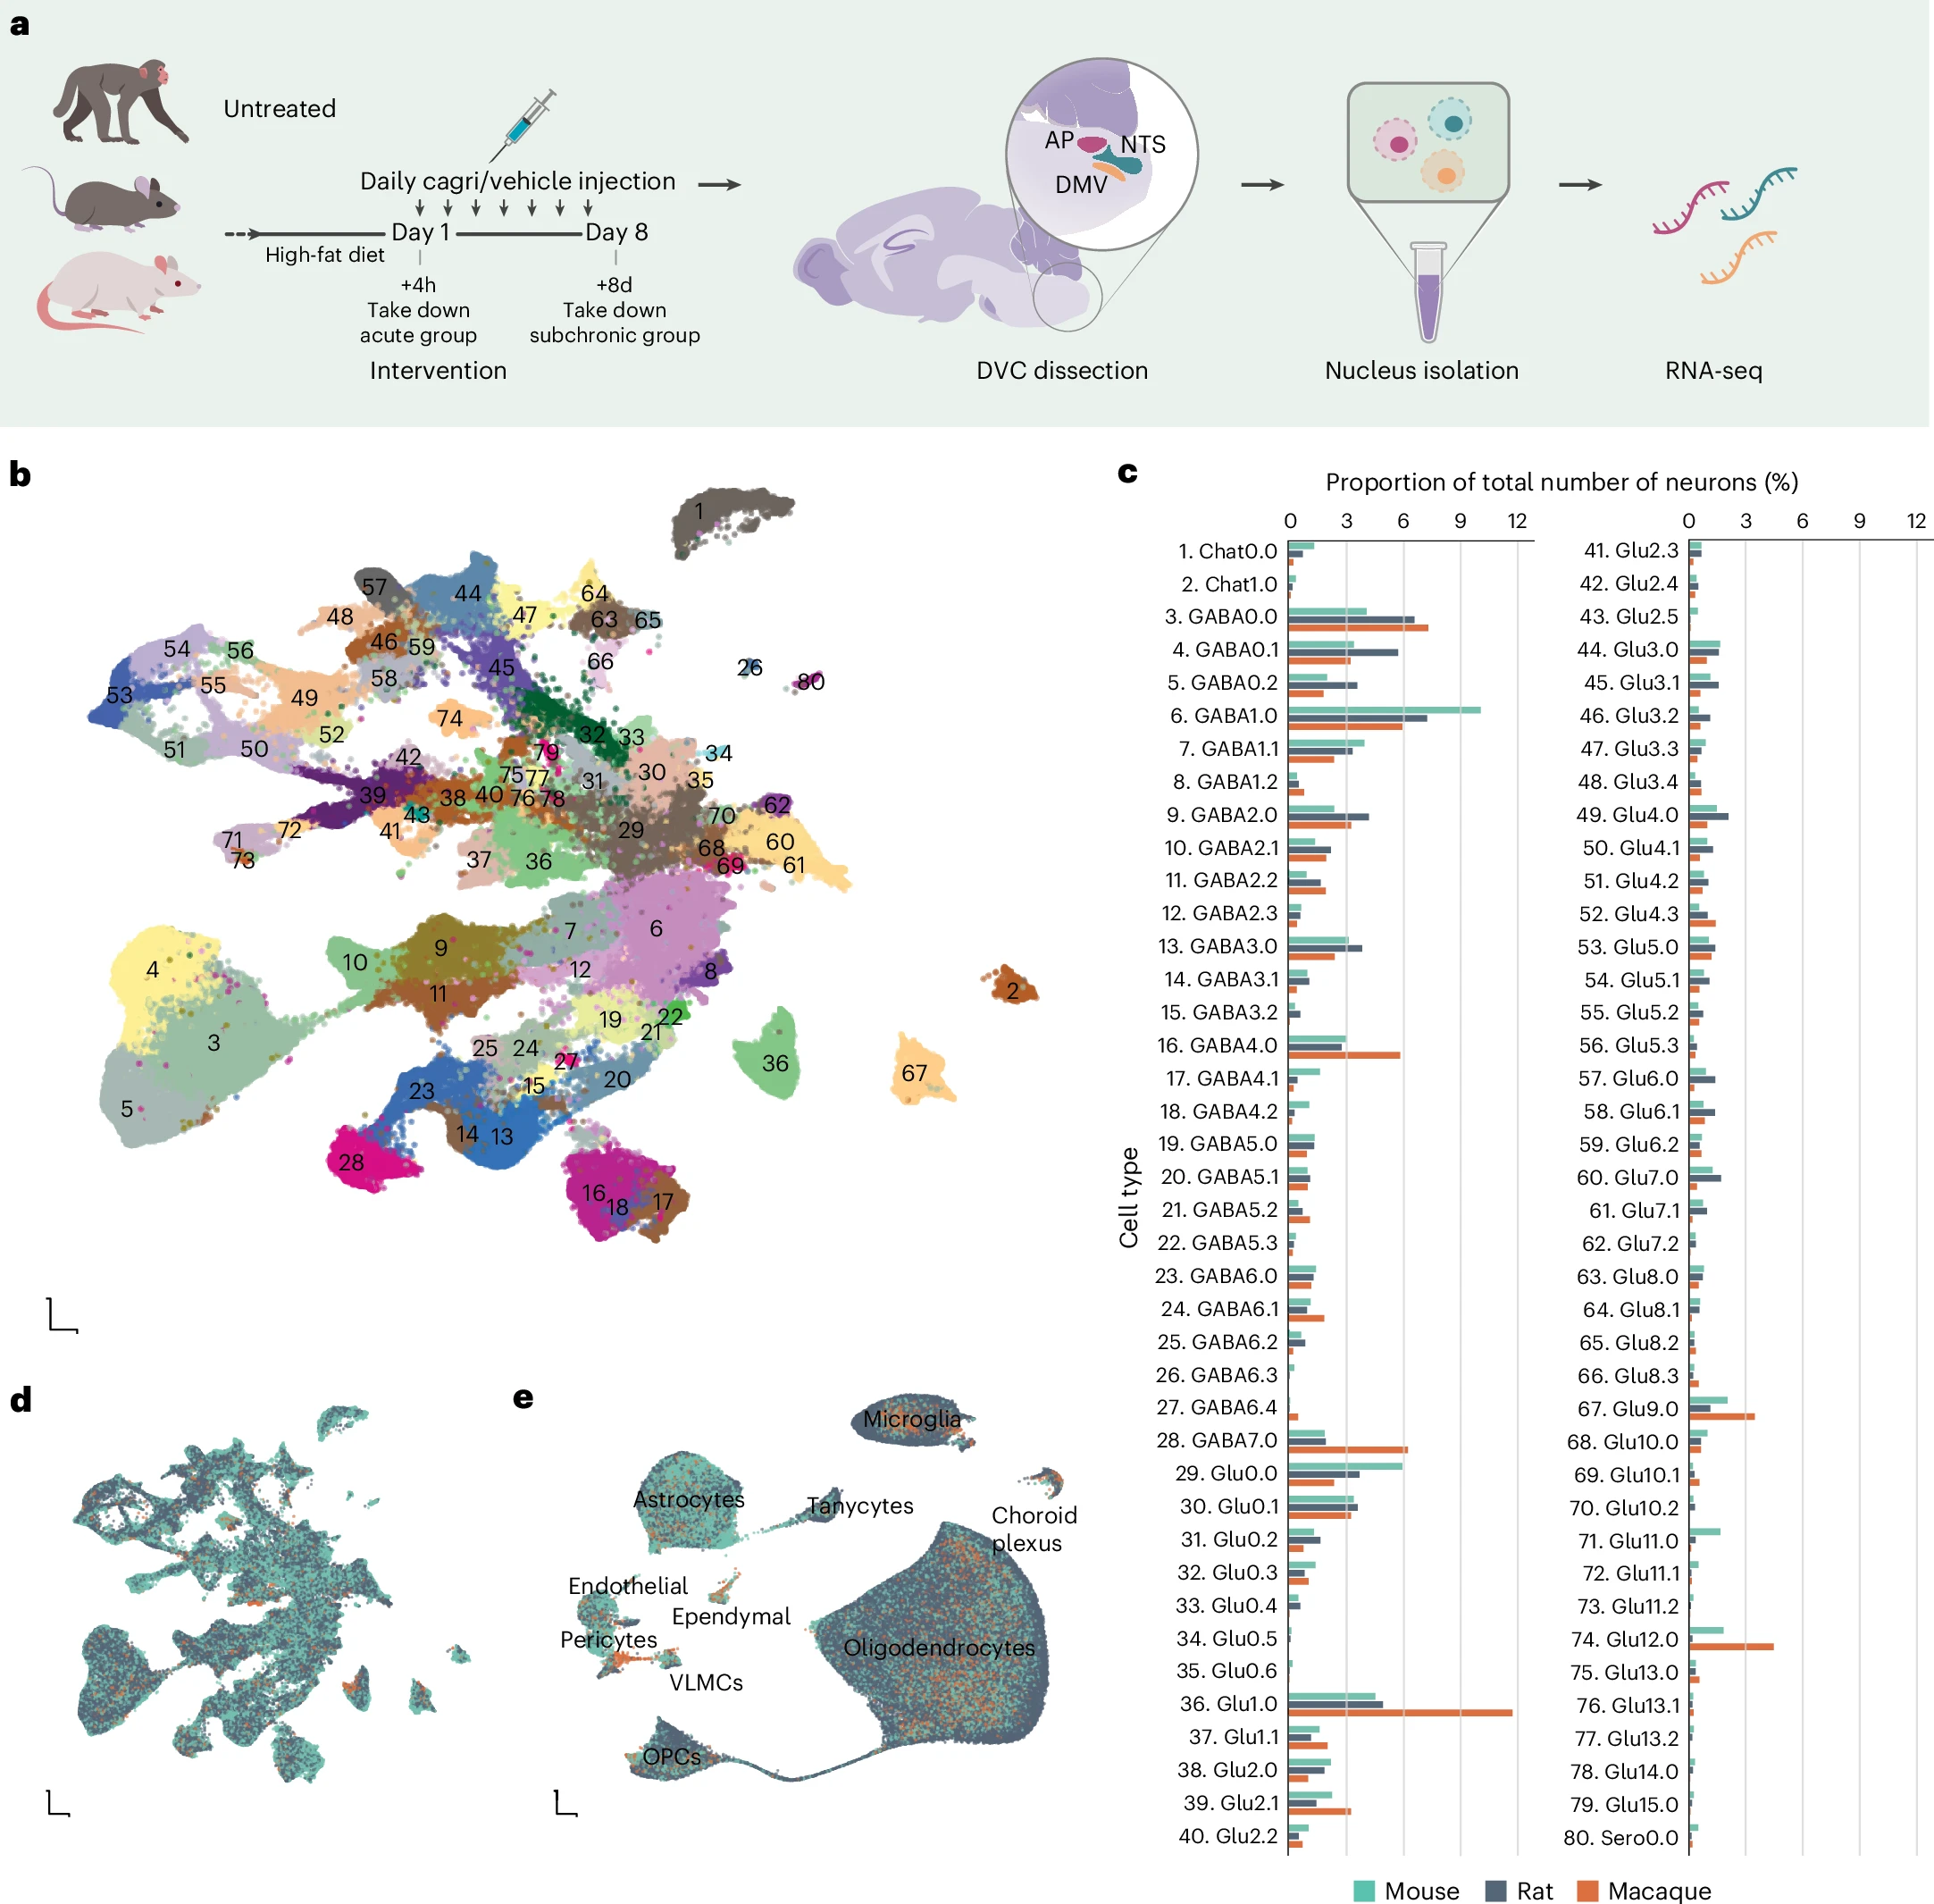
Fig. 1: Transkriptomisk atlas på tvers av arter av enkeltkjerne av det dorsale vagale komplekset i den siterte studien.[2]
Kildefiguren oppsummerer in vivo-studiedesignet i diett-induserte overvektige rotter og mus, ubehandlede makaker, UMAP-definerte nevronale og gliale populasjoner, og bidraget til hver populasjon på tvers av arter. Fullstendige gruppedefinisjoner, celletall og analytiske metoder er rapportert i den originale publikasjonen.[2]
Carvas et al. undersøkte bidraget til amylinreseptorsubtyper til cagrilintidresponser ved bruk av villtype hannmus og RAMP1/3 knockout-mus som ble holdt på en fettrik diett. I løpet av den 3-ukers studien fikk dyrene vehikel, laksekalsitonin eller cagrilintid. Forfatterne rapporterte forskjeller i målinger av kroppsvekt og matinntak mellom villtype- og RAMP1/3 knockout-mus, sammen med endringer i cFos-signalering i det dorsale vagale komplekset og den laterale parabrachiale kjernen. Bulk RNA-sekvensering ble også brukt til å undersøke genuttrykksmønstre i utvalgte hjerneregioner. Resultatene støttet involvering av AMY1R og AMY3R i responsene på cagrilintid observert i denne musemodellen.[3]
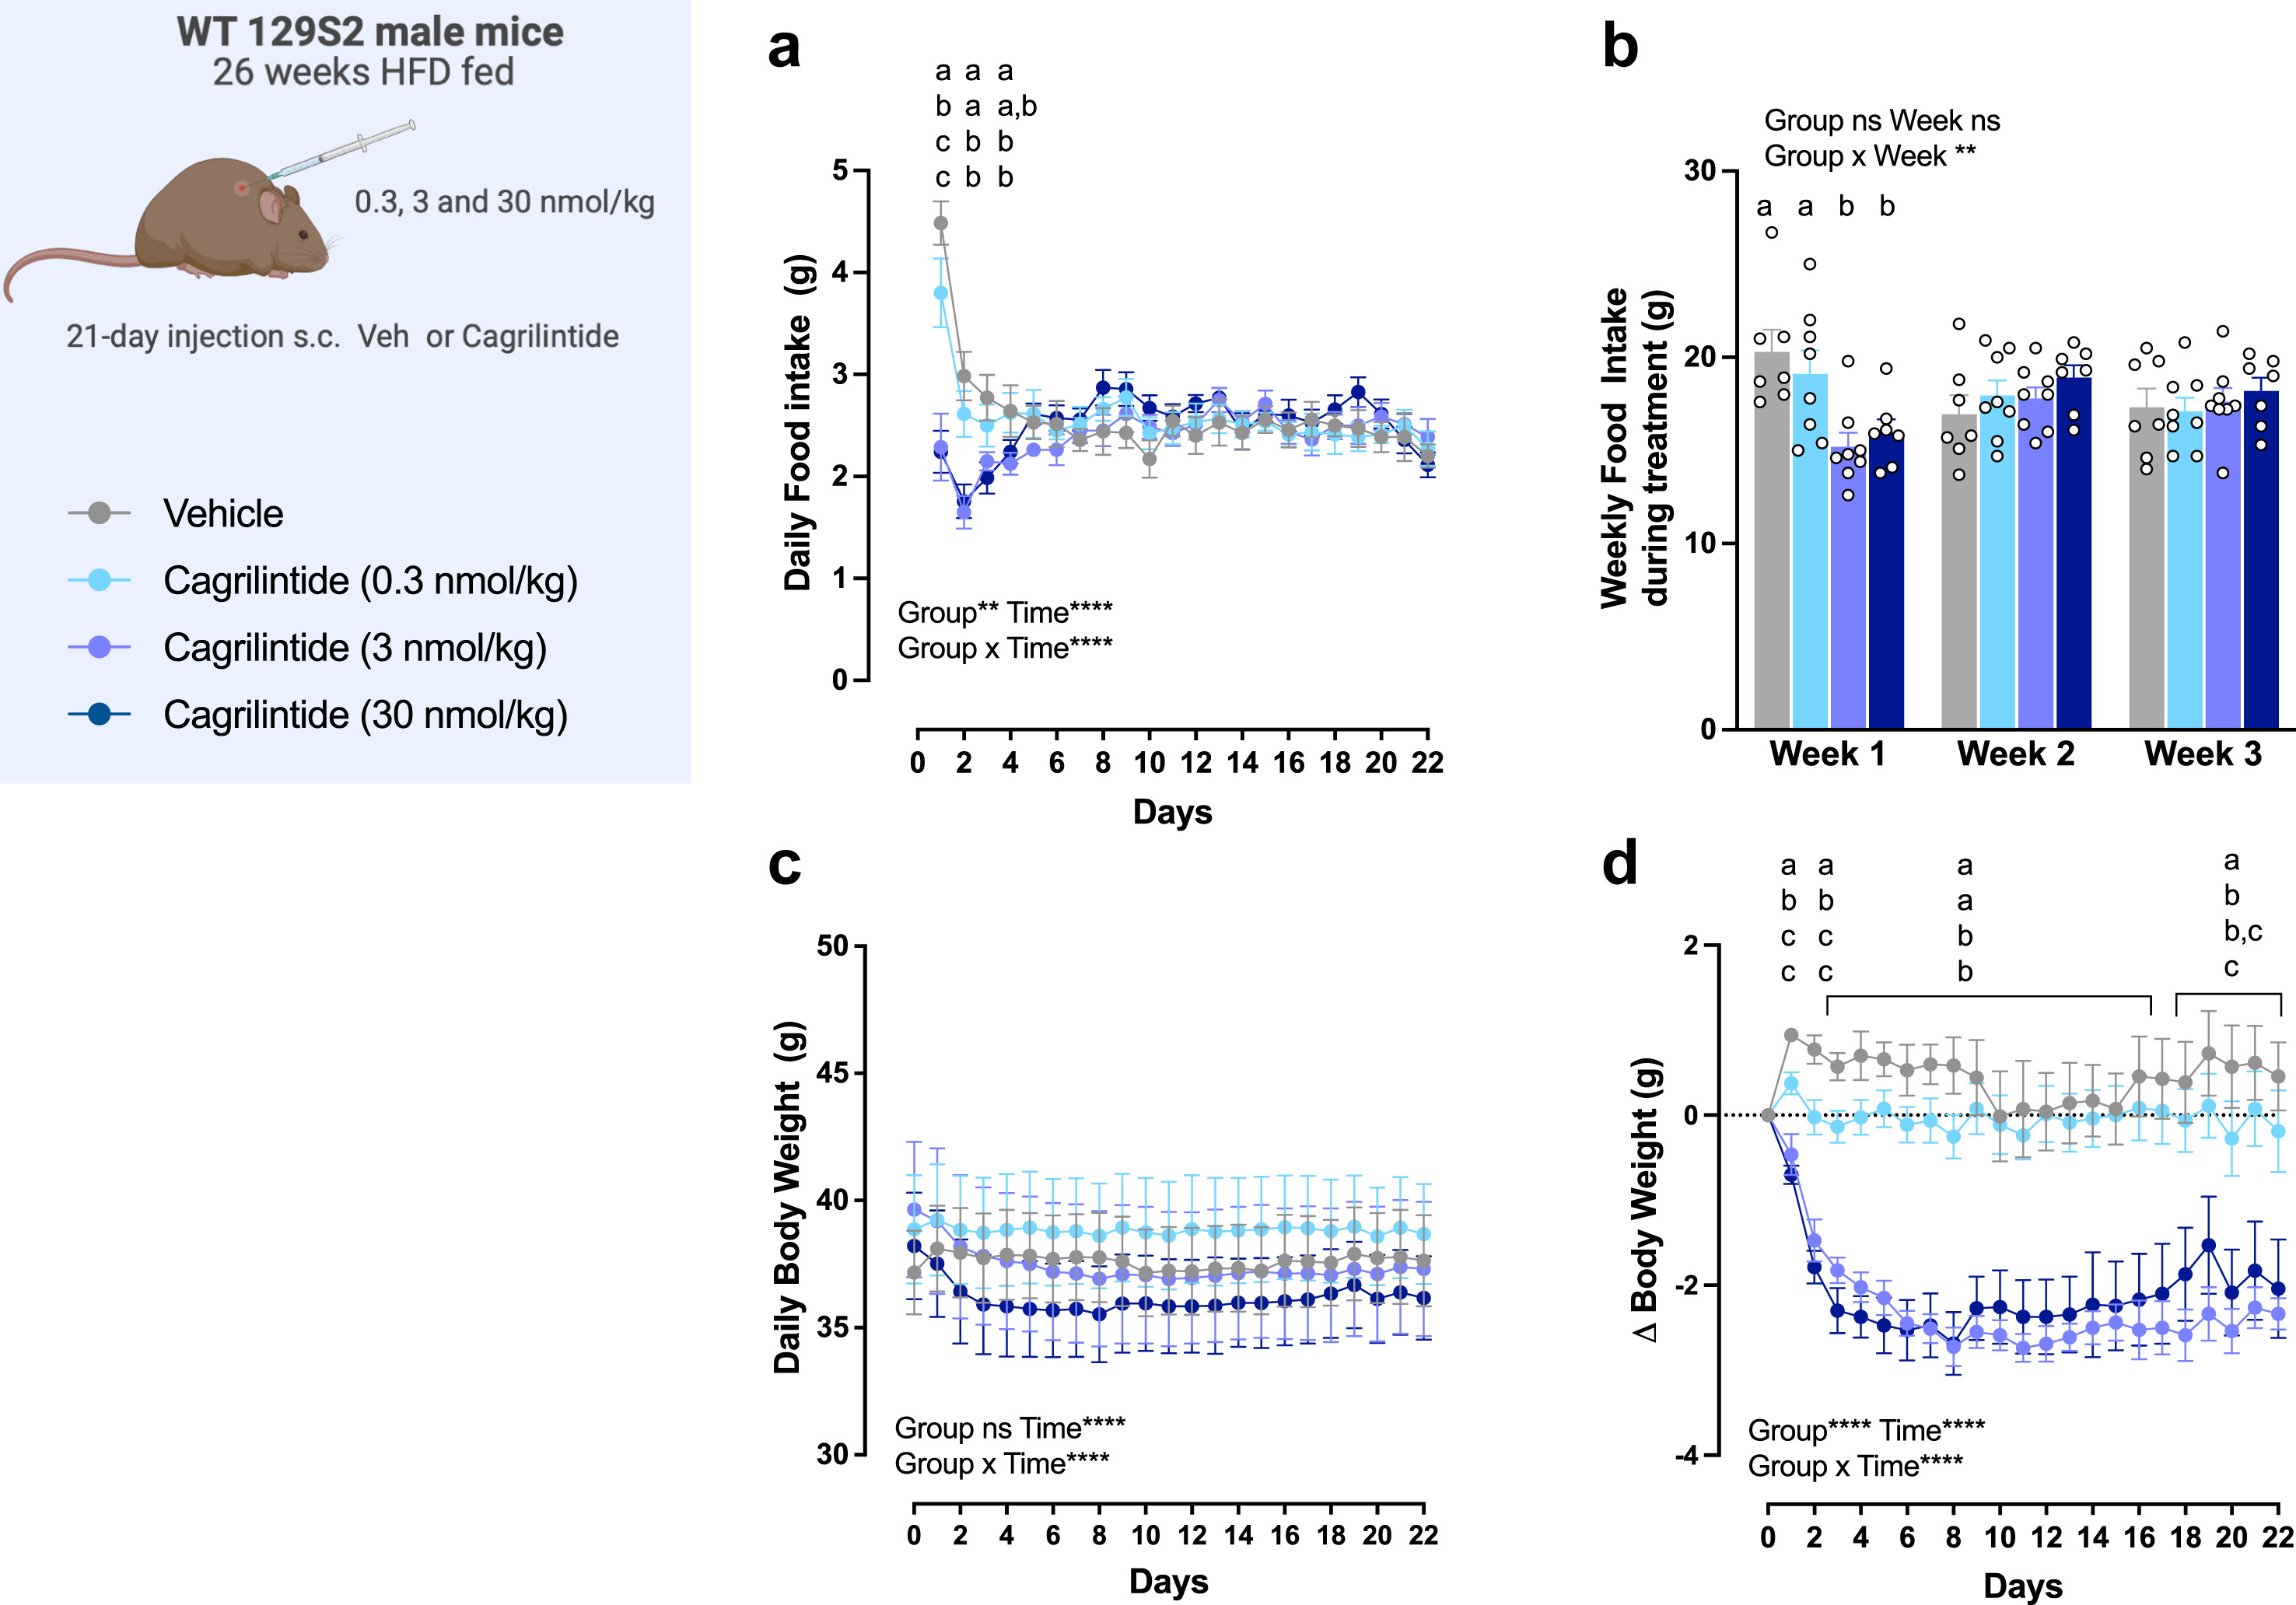
Fig. 2. Målinger av matinntak og kroppsvekt ble brukt til å velge en cagrilintiddose hos villtype mus med høyt fettinnhold i den siterte studien.[3]
Kildetallet sammenligner daglig og ukentlig matinntak, daglig kroppsvekt og kumulativ kroppsvektsendring på tvers av kjøretøy- og cagrilintid-studiegrupper. Gruppestørrelser, doser, statistiske metoder og komplette eksperimentelle prosedyrer er rapportert i den originale publikasjonen.[3]
Petersen et al. brukte en diettindusert fedmemodell hos hannrotter for å sammenligne cagrilintide og GLP-3 alene og i kombinasjon, sammen med kombinasjoner av matchede doser som inneholder semaglutid eller GLP-2. Etterforskerne målte kroppsvekt, matinntak, fettvevsmasse, sirkulerende metabolske markører, plasmaproteomikk og hjernetransskriptomiske responser. De rapporterte større endringer i kroppsvekt og matinntak med cagrilintide-GLP-3-kombinasjonen enn med de ekvimolare monoterapiene under studiebetingelsene, sammen med forskjeller i kolesterol, triglyserider, insulin, plasmaproteiner og sentrale nevronale genprogrammer. Fordi dette var en kombinasjonsstudie, bør de rapporterte funnene ikke tilskrives cagrilintid alene.[4]
Vera Wulfmeyer og kolleger brukte en ex vivo nyre-tubuli-modell fra 20 mannlige Zucker Diabetic Fatty (ZDF) rotter, inkludert magre kontroller og overvektige diabetiske dyr, for å utforske nyresignalering assosiert med cagrilintid. Kortikale og medullære tubulifraksjoner ble eksponert for bærer, cagrilintid eller laksekalsitonin etter fosfodiesterasehemming, og intracellulær cAMP ble målt. Forfatterne rapporterte fosforyleringsendringer som involverte ionetransportører som NKCC2 og NCC i friske rotterubuli og en signifikant cAMP-økning i kortikale tubuli fra diabetiske ZDF-rotter etter cagrilintideksponering, mens friske rotter ikke viste samme cAMP-respons. Publikasjonen er et konferanseabstrakt som beskriver foreløpige ex vivo-funn, med fosfoproteomiske analyser rapportert som pågående på publiseringstidspunktet.[5]
Cao et al. brukte kryo-elektronmikroskopi og molekylær-dynamiske tilnærminger for å karakterisere cagrilintid bundet til aktive AMY1R-, AMY2R-, AMY3R- og CTR-komplekser. Forfatterne rapporterte en amylinlignende bindingsmodus sammen med reseptorspesifikk konformasjonsdynamikk på tvers av kalsitoninfamiliereseptorene. [6] Gu et al. uavhengig bestemte cryo-EM-strukturer av cagrilintid bundet til AMY1R og CTR og beskrev molekylære kontakter assosiert med ikke-selektiv Gs-koblet reseptoraktivering. Disse strukturelle studiene definerer peptid-reseptor-interaksjoner under eksperimentelle forhold og etablerer ikke i seg selv klinisk effekt eller sikkerhet.[1]
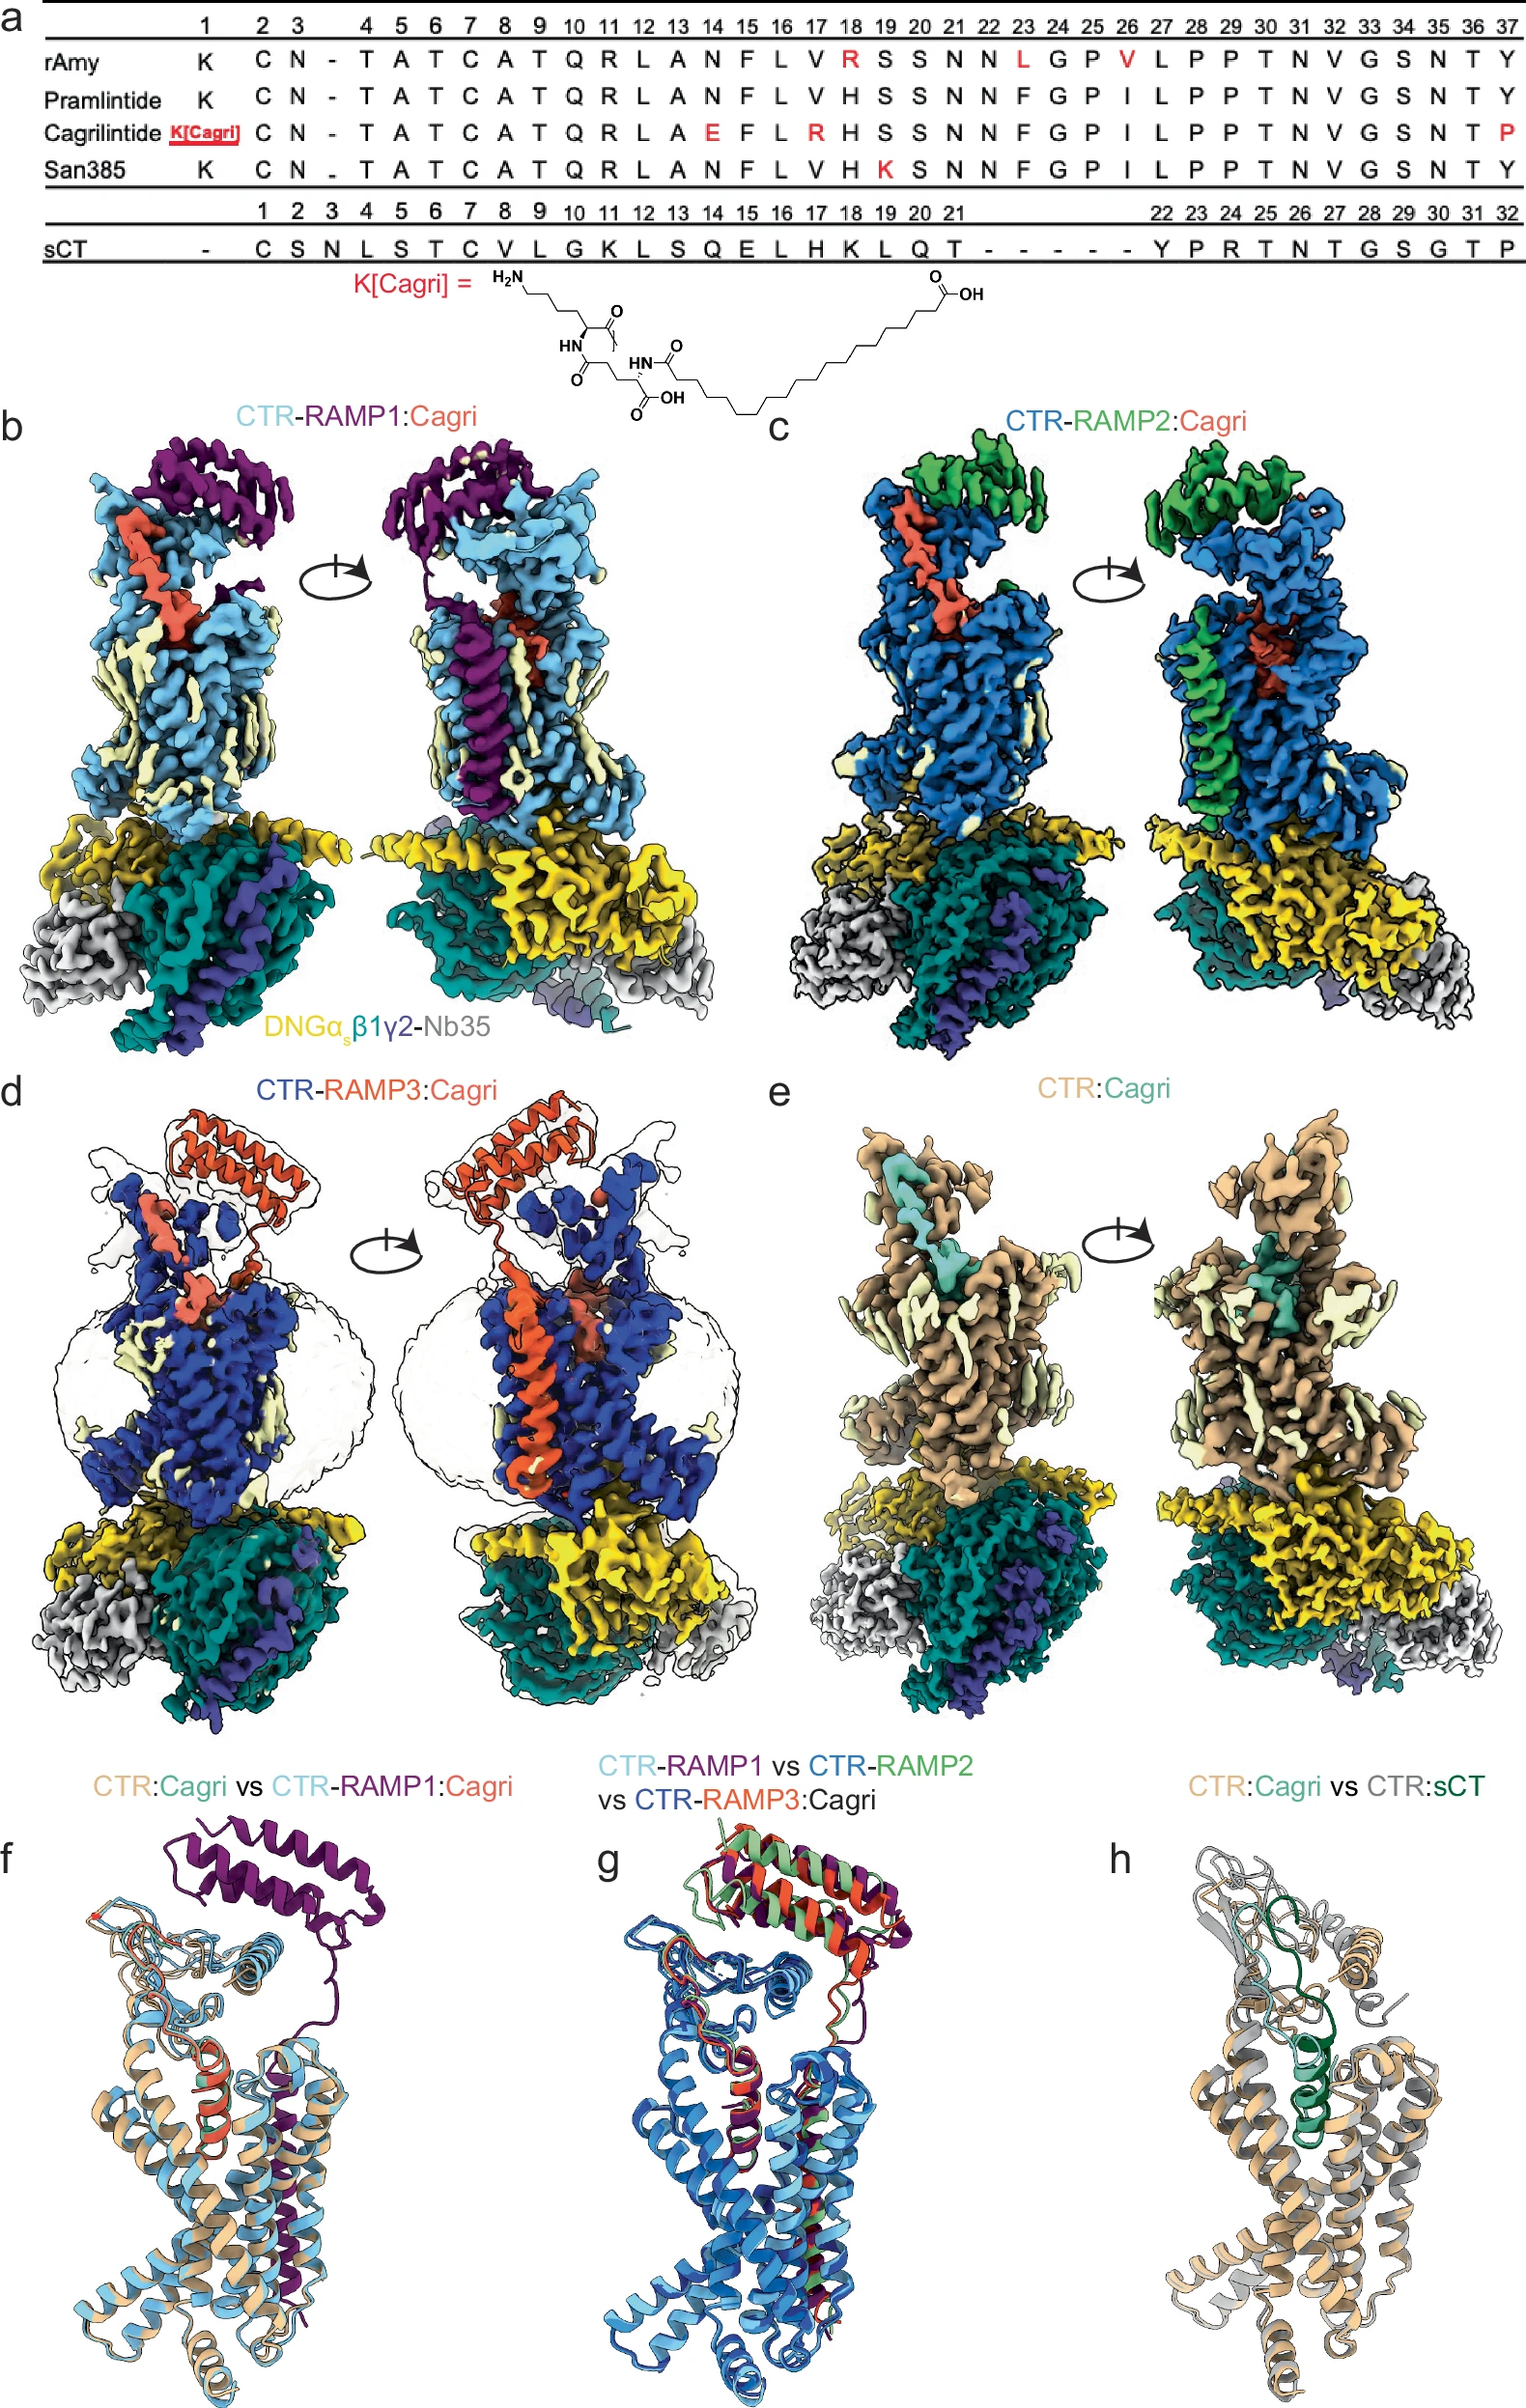
Fig3. Aminosyresekvensjustering og kryo-EM-strukturer av cagrilintid bundet til amylinreseptorer og kalsitoninreseptoren i den siterte strukturelle studien.[6]
Kildefiguren viser cagrilintidsekvensen og lipidmodifikasjonen sammen med aktive, Gs-koblede AMY1R-, AMY2R-, AMY3R- og CTR-komplekser. Strukturell justering og reseptorkomponenter er presentert som rapportert av studieforfatterne.[6]
Forskningsbegrensninger
Studiene oppsummert ovenfor bruker forskjellige prekliniske og analytiske systemer, inkludert gnagermodeller, ex vivo nyretubuli, transkriptomisk profilering og rensede reseptorkomplekser. Resultater fra disse systemene er ikke direkte utskiftbare. Cagrilintide-GLP-3-studien evaluerte en kombinasjon og kan derfor ikke bestemme det uavhengige bidraget til cagrilintide til hvert rapportert resultat.[4] Nyrestudien ble publisert som et konferanseabstrakt med foreløpige ex vivo-funn og evaluerte ikke langsiktig nyreakkumulering, klinisk sikkerhet eller humane nyreutfall.[5]
Cagrilintide er en modifisert amylinanalog, mens naturlig amylin er kjent for sin tilbøyelighet til å aggregere under noen biologiske forhold. Strukturell modifikasjon av cagrilintid ble delvis designet for å redusere fibrillering, men studiene som er sitert her, fastslår ikke langsiktig sikkerhet, farmakokinetikk eller klinisk ytelse til uavhengig levert forskningsmateriale. Tolkning bør forbli knyttet til den eksakte molekylformen, eksperimentelle modellen og studieforholdene rapportert i hver publikasjon.[1,5,6]
COCER Peptides presenterer Cagrilintide utelukkende for laboratorieforskning og analytisk bruk. Den er ikke beregnet på human eller veterinær bruk. Dette COCER Peptides-materialet er ikke et FDA-godkjent medikamentprodukt. Forskningen beskrevet ovenfor oppsummerer funn rapportert i tredjepartspublikasjoner og er ikke en erklæring om klinisk effekt, sikkerhet, diagnose, behandling, forebygging eller en bruksanvisning.


