
|
1 sett (10 hetteglass)
| Mengde: | |
|---|---|
▎ TB-500-struktur
Kilde: PubChem |
Sekvens: LKKTETQ Molekylformel: C 38H 68N 10O14 Molekylvekt: 889,0 g/mol CAS-nummer: 885340-08-9 PubChem CID: 62707662 Synonymer: QHK6Z47GTG |
▎ TB-500 Forskning
Molekylær bakgrunn
TB-500 er et N-terminalt acetylert heptapeptid med sekvensen Ac-LKKTETQ, tilsvarende rester 17–23 av thymosin beta-4 (Tβ4). TB-500 er forskjellig fra Tβ4 i full lengde, som er et 43-aminosyrepeptid. PubChem lister TB-500 under CID 62707662, med molekylformelen C38H68N10O14 og en molekylvekt på omtrent 889,0 g/mol.[1,8]
Forskningsfremgang
Forskere ledet av Khandoker Asiqur Rahaman brukte ultrahøyytelses væskekromatografi kombinert med Q-Exactive Orbitrap massespektrometri for å utvikle en metode for samtidig analyse av TB-500 og dets metabolitter. Etterforskerne undersøkte TB-500-metabolismen i humant serum, in vitro-enzymsystemer og urin samlet fra rotter eksponert for TB-500. Ac-LK ble rapportert som den viktigste tidlige metabolitten, mens Ac-LKK forble påviselig i en lengre periode. I fibroblast-skrapeanalyser viste ikke den overordnede TB-500 en signifikant sårlukkingsrespons sammenlignet med kontroll, mens metabolitten Ac-LKKTE viste en signifikant forskjell under analysebetingelsene.[1]
De følgende studiene undersøkte full-lengde eller rekombinant thymosin beta-4 (Tβ4), i stedet for TB-500 i seg selv. De er inkludert som relatert Tβ4-forskning og skal ikke tolkes som direkte bevis for det N-acetylerte TB-500 heptapeptidet.[7]
Wandi Lis team isolerte fettavledede stamceller (ADSCs) fra pasienter som hadde gjennomgått fettsuging og utsatt cellene for full-lengde Tβ4 in vitro. Etterforskerne vurderte proliferasjons-, apoptose-, migrasjons- og genekspresjonsendepunkter ved bruk av CCK-8-analyser, flowcytometri, scratch-analyser og RT-qPCR. De rapporterte høyere ADSC-spredning ved utvalgte Tβ4-konsentrasjoner og endringer i proliferasjons- og apoptose-relaterte målinger under studieforholdene.[2] Xiaoyu Zhang og kolleger studerte deretter Tβ4 i full lengde i et ADSC/fett-graft eksperimentelt system og rapporterte økt tunneldannelse av nanorør gjennom Rac/F-aktin-banen, sammen med endringer i mitokondriell overføring, oksidativ-stress-markører, apoptose og vaskulariseringsrelatert endepunkt.[3]
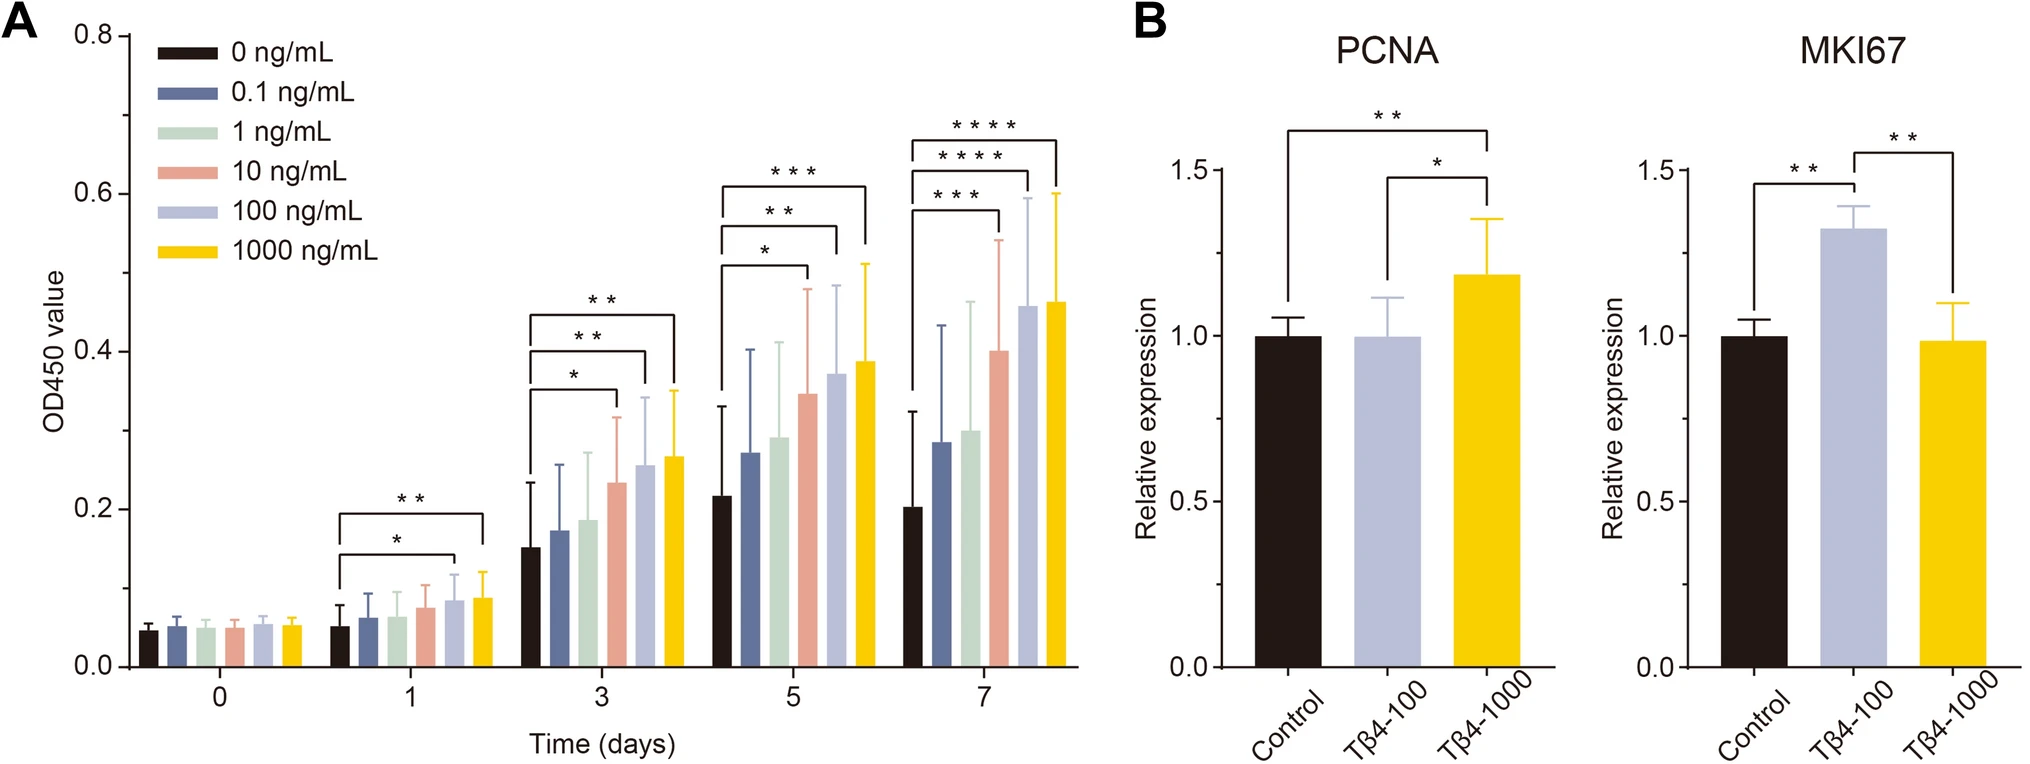
Fig1. Spredningsrelaterte målinger rapportert i fettavledede stamceller eksponert for full-lengde Tβ4 i den siterte studien.[2]
En CCK-8-analyse ble brukt for å sammenligne ADSC-proliferasjon på tvers av Tβ4-konsentrasjoner og tidspunkter. B RT-qPCR ble brukt til å evaluere proliferasjonsrelatert genuttrykk, inkludert PCNA og MKI67. Statistiske sammenligninger og fullstendige eksperimentelle forhold er rapportert i den originale publikasjonen.[2]
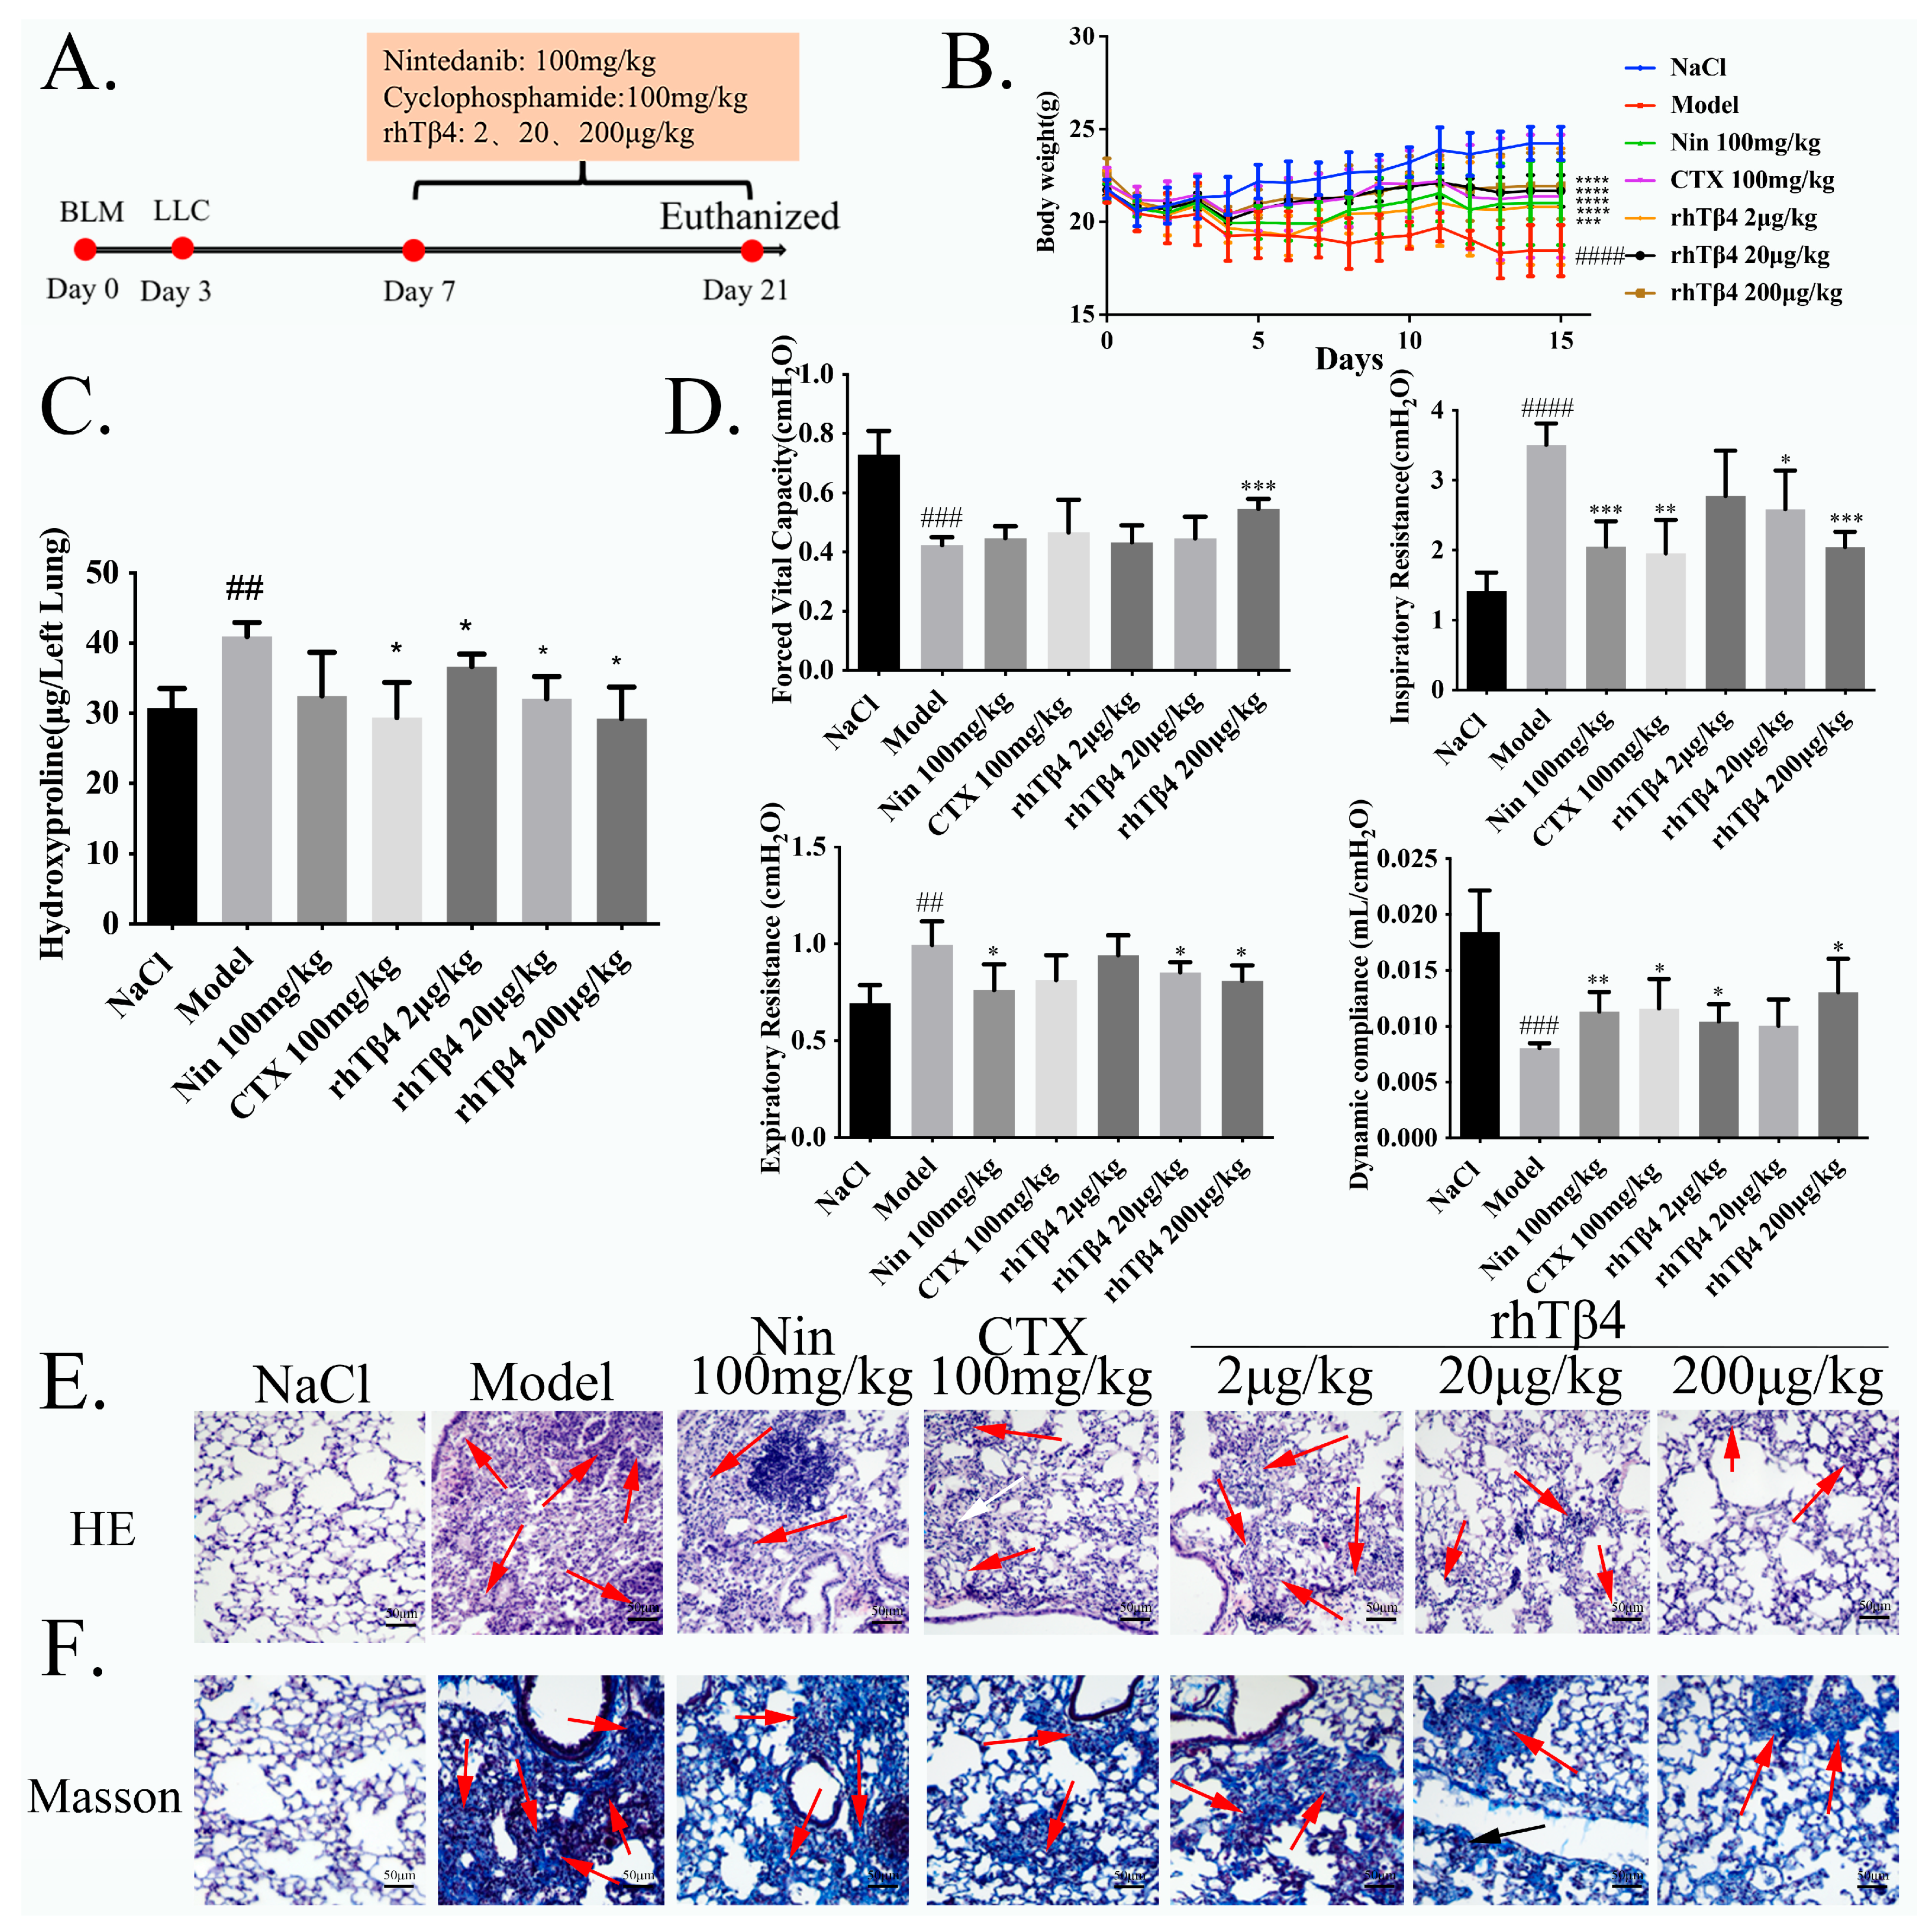
Fig2. Lungefunksjons-, histologiske og fibroserelaterte målinger rapportert etter rekombinant human Tβ4-eksponering i den bleomycin-baserte musemodellen. [4]
Kildefiguren viser eksperimentell tidsplan, kroppsvektmålinger, lungehydroksyprolininnhold, lungefunksjonsparametere og histologisk farging i de rapporterte musegruppene. Gruppedefinisjoner, studiedoser, statistiske metoder og komplette eksperimentelle prosedyrer er gitt i den originale publikasjonen.[4]
Yuze Zhang og kolleger studerte rekombinant humant thymosin beta-4 (rhTβ4) i musemodeller av hjerteiskemi-reperfusjon og permanent koronar ligering. Forfatterne rapporterte forskjeller i hjertefunksjon, fibrose, NT-proBNP og infarktrelaterte målinger i rhTβ4-studiegrupper. RNA-sekvensering og cellebaserte hypoksi/reoksygeneringseksperimenter ble også brukt for å undersøke ErbB-assosiert signalering, inkludert ErbB2/Raf1 og apoptose-relaterte endepunkter. Dette arbeidet gjaldt rekombinant full-lengde Tβ4 og bør ikke behandles som direkte TB-500 bevis.[5]
Xiankui Li og kolleger evaluerte rekombinant humant thymosin beta-4 ved bruk av miltcelleproliferasjonsanalyser og en kutan sårmodell i full tykkelse i BALB/c-mus. Forfatterne rapporterte endringer i lymfocyttproliferasjon og -differensiering og i sårlukkingsmålinger under forholdene i musestudien. Materialet som ble studert var rekombinant full-lengde Tβ4, ikke TB-500.[6]
Forskningsbegrensninger
Direkte publiserte bevis på selve TB-500 er fortsatt begrenset. Rahaman et al. karakteriserte metabolismen til det N-acetylerte heptapeptidet og rapporterte flere kortere metabolitter, inkludert Ac-LK og Ac-LKK. I fibroblast-skrapeanalysen som ble brukt i den studien, viste ikke den overordnede TB-500 signifikant sårlukkende aktivitet sammenlignet med kontroll, mens Ac-LKKTE gjorde.[1] Disse funnene fastslår ikke den biologiske aktiviteten til TB-500 i andre eksperimentelle systemer.
En ytterligere begrensning er den hyppige bruken av navnene TB-500 og thymosin beta-4 som om de beskriver den samme molekylære enheten. Det gjør de ikke. En scoping-gjennomgang fra 2026 fant at det meste av den publiserte reparasjonsrelaterte litteraturen gjelder Tβ4 i full lengde, mens direkte TB-500-bevis var begrenset til en enkelt inkludert studie.[7] Resultater oppnådd med syntetisk eller rekombinant Tβ4 i full lengde bør derfor ikke automatisk ekstrapoleres til TB-500-fragmentet med syv aminosyrer.
COCER Peptides presenterer TB-500 utelukkende for laboratorieforskning og analytisk bruk. Den er ikke beregnet på human eller veterinær bruk. Forskningen beskrevet ovenfor oppsummerer funn rapportert i tredjepartspublikasjoner og skiller direkte TB-500-studier fra relaterte Tβ4-studier i full lengde; det er ikke en erklæring om klinisk effekt, sikkerhet, diagnose, behandling, forebygging eller en bruksanvisning.


