

|
1 kit(10 flaskor)
| Kvantitet: | |
|---|---|
▎ Kisspeptinstruktur
Källa: PubChem |
Sekvens:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF Molekylformel: C 258H 401N 79O78 Molekylvikt: 5857 g/mol PubChem CID:71306396 Synonymer: Protein KISS-1;Kisspeptiner |
▎ Kisspeptin Research
Molekylär bakgrund
Kisspeptin-10 (KP-10) är ett 10-aminosyror C-terminalt fragment av den KISS1-härledda kisspeptinprekursorn. Dess aminosyrasekvens är Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2), och den binder till den G-proteinkopplade receptorn KISS1R. PubChem listar humant Kisspeptin-10 under CID 25240297, med molekylformeln C63H83N17O14 och en molekylvikt på cirka 1302,4 g/mol.[1,8]
Forskningsframsteg
Zhangsong Wu och kollegor bestämde kryo-EM-strukturer av KISS1R-Gq- och KISS1R-Gi-komplex bundna till den syntetiska agonisten TAK448, tillsammans med ett KISS1R-Gq-komplex bundet till endogent KP54. Funktionella analyser i samma studie indikerade att KISS1R kan kopplas till Gi/o-vägen förutom den etablerade Gq/11-vägen. Författarna rapporterade strukturella skillnader i receptorns extracellulära och intracellulära loopar och i Gα-subenhetsgränssnittet som kan bidra till G-proteinkopplingsselektivitet. Denna strukturella studie använde KP54 och TAK448 snarare än KP-10 som bundna ligander.[2]
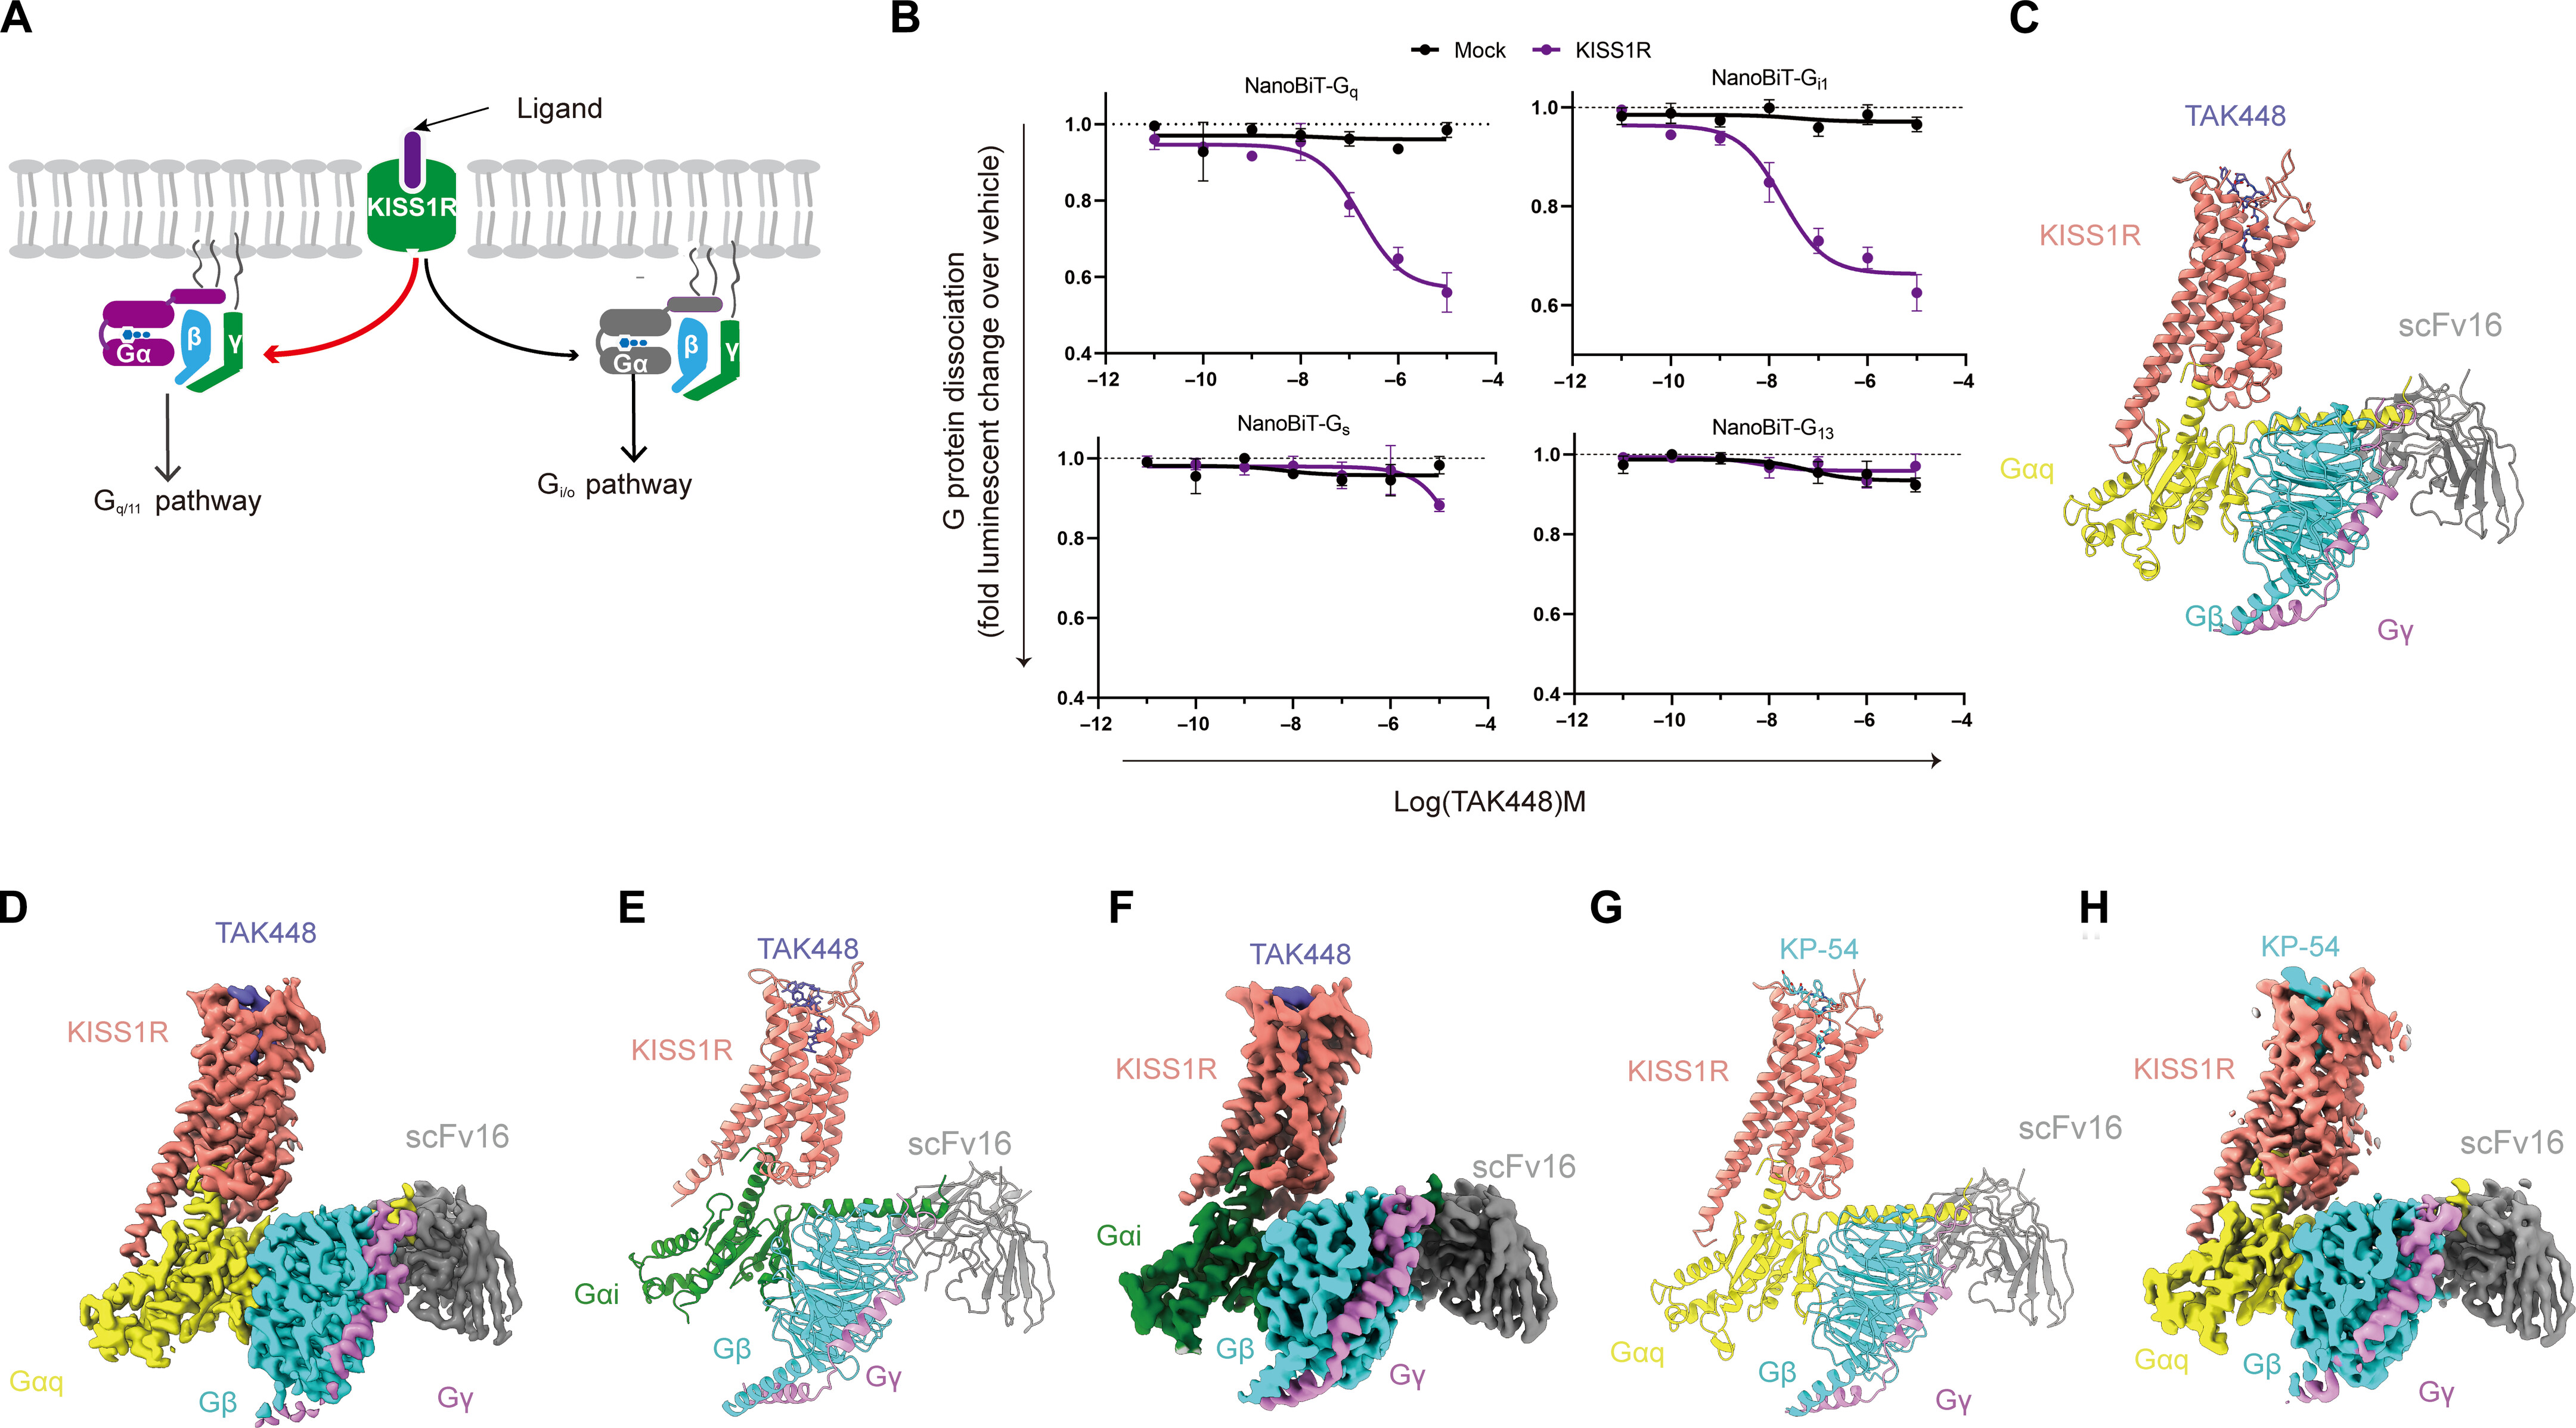
Fig1. Cryo-EM-strukturer av KISS1R-G-proteinkomplex rapporterade med TAK448 och KP54 i den citerade studien.[2]
(A) Schematisk representation av KISS1R G-proteinkoppling undersökt i källstudien. (B) NanoBiT G-proteindissociationsanalyser för de angivna G-proteinmedlemmarna efter exponering för TAK448. (CH) Cryo-EM-modeller och kartor över TAK448-KISS1R-Gq, TAK448-KISS1R-Gi och KP54-KISS1R-Gq komplex. Experimentella förhållanden och statistiska detaljer rapporteras i den ursprungliga publikationen.[2]
Jenny Clarkson och Allan Herbison studerade den postnatala utvecklingen av kisspeptin-neuronpopulationer och deras projektioner till GnRH-neuroner hos möss. Med hjälp av ett antiserum framtaget mot mus-kisspeptin-10 identifierade de kisspeptin-immunoreaktiva populationer i den anteroventrala periventrikulära/preoptiska periventrikulära regionen, dorsomedial hypotalamus och bågformade kärna. Författarna rapporterade en markant kvinnodominant skillnad i AVPV/PeN-kisspeptin-neuronantal och observerade nära appositioner mellan kisspeptinfibrer och GnRH-neuroncellkroppar som dyker upp under postnatal utveckling. Detta arbete karakteriserade endogent neuronalt uttryck och utveckling snarare än effekterna av ett externt tillfört KP-10-material.[3]
Alexander S. Kauffman och kollegor använde vuxna vildtyp (WT) och GPR54/KISS1R knockout (KO) möss för att undersöka rollen av kisspeptin-receptorsignalering i sexuellt dimorft beteende och neural utveckling. Hormonersatta GPR54 KO män och kvinnor behöll könstypiskt parningsbeteende, medan skillnader observerades i luktpartners preferens och i flera sexuellt dimorfa neurala egenskaper. Författarna drog slutsatsen att GPR54-signalering inte krävdes för vuxen kopulatoriskt beteende under de hormonersättningsförhållanden som användes, utan var involverad i utvecklingen av utvalda sexuellt dimorfa egenskaper.[4]
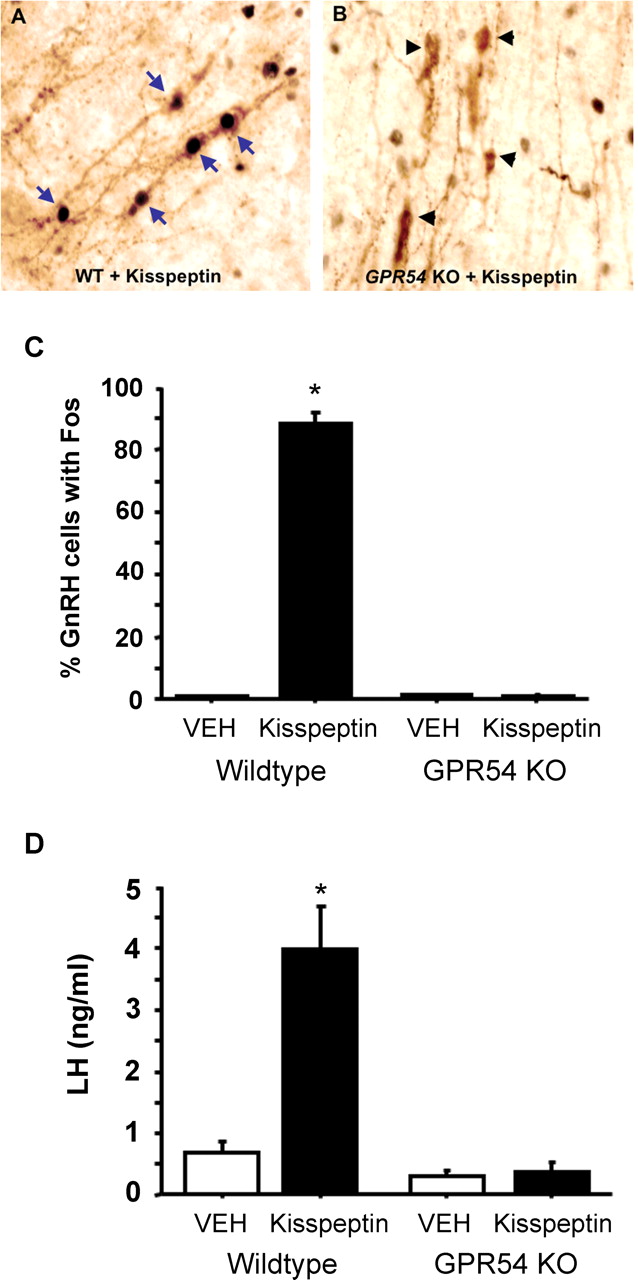
Fig2. GnRH-neuron Fos-immunreaktivitet och plasma-LH-mätningar rapporterade efter intracerebroventrikulär kisspeptinexponering i WT- och GPR54 KO-hanmöss.[4]
*p < 0,05 jämfört med den vehikelbehandlade WT-gruppen, som rapporterades i den ursprungliga studien.[4]
Oscar González-Flores och kollegor undersökte intracerebroventrikulär kisspeptinexponering hos ovarieektomiserade råttor som försetts med östradiolbensoat. Författarna mätte lordoskvoten och lordosreflexintensiteten och använde sedan KISS1R-antagonisten Kiss-234, progesteronreceptorantagonisten RU486 och GnRH-1-receptorantagonistantiden för att undersöka receptorinblandning. Kisspeptinexponering var associerad med högre lordosmätningar i råttmodellen, medan antagonistförbehandling minskade svaret vid utvalda tidpunkter. Fynden stödde inblandning av KISS1R-, progesteronreceptor- och GnRH-receptorsignalering under studiens förhållanden.[5]
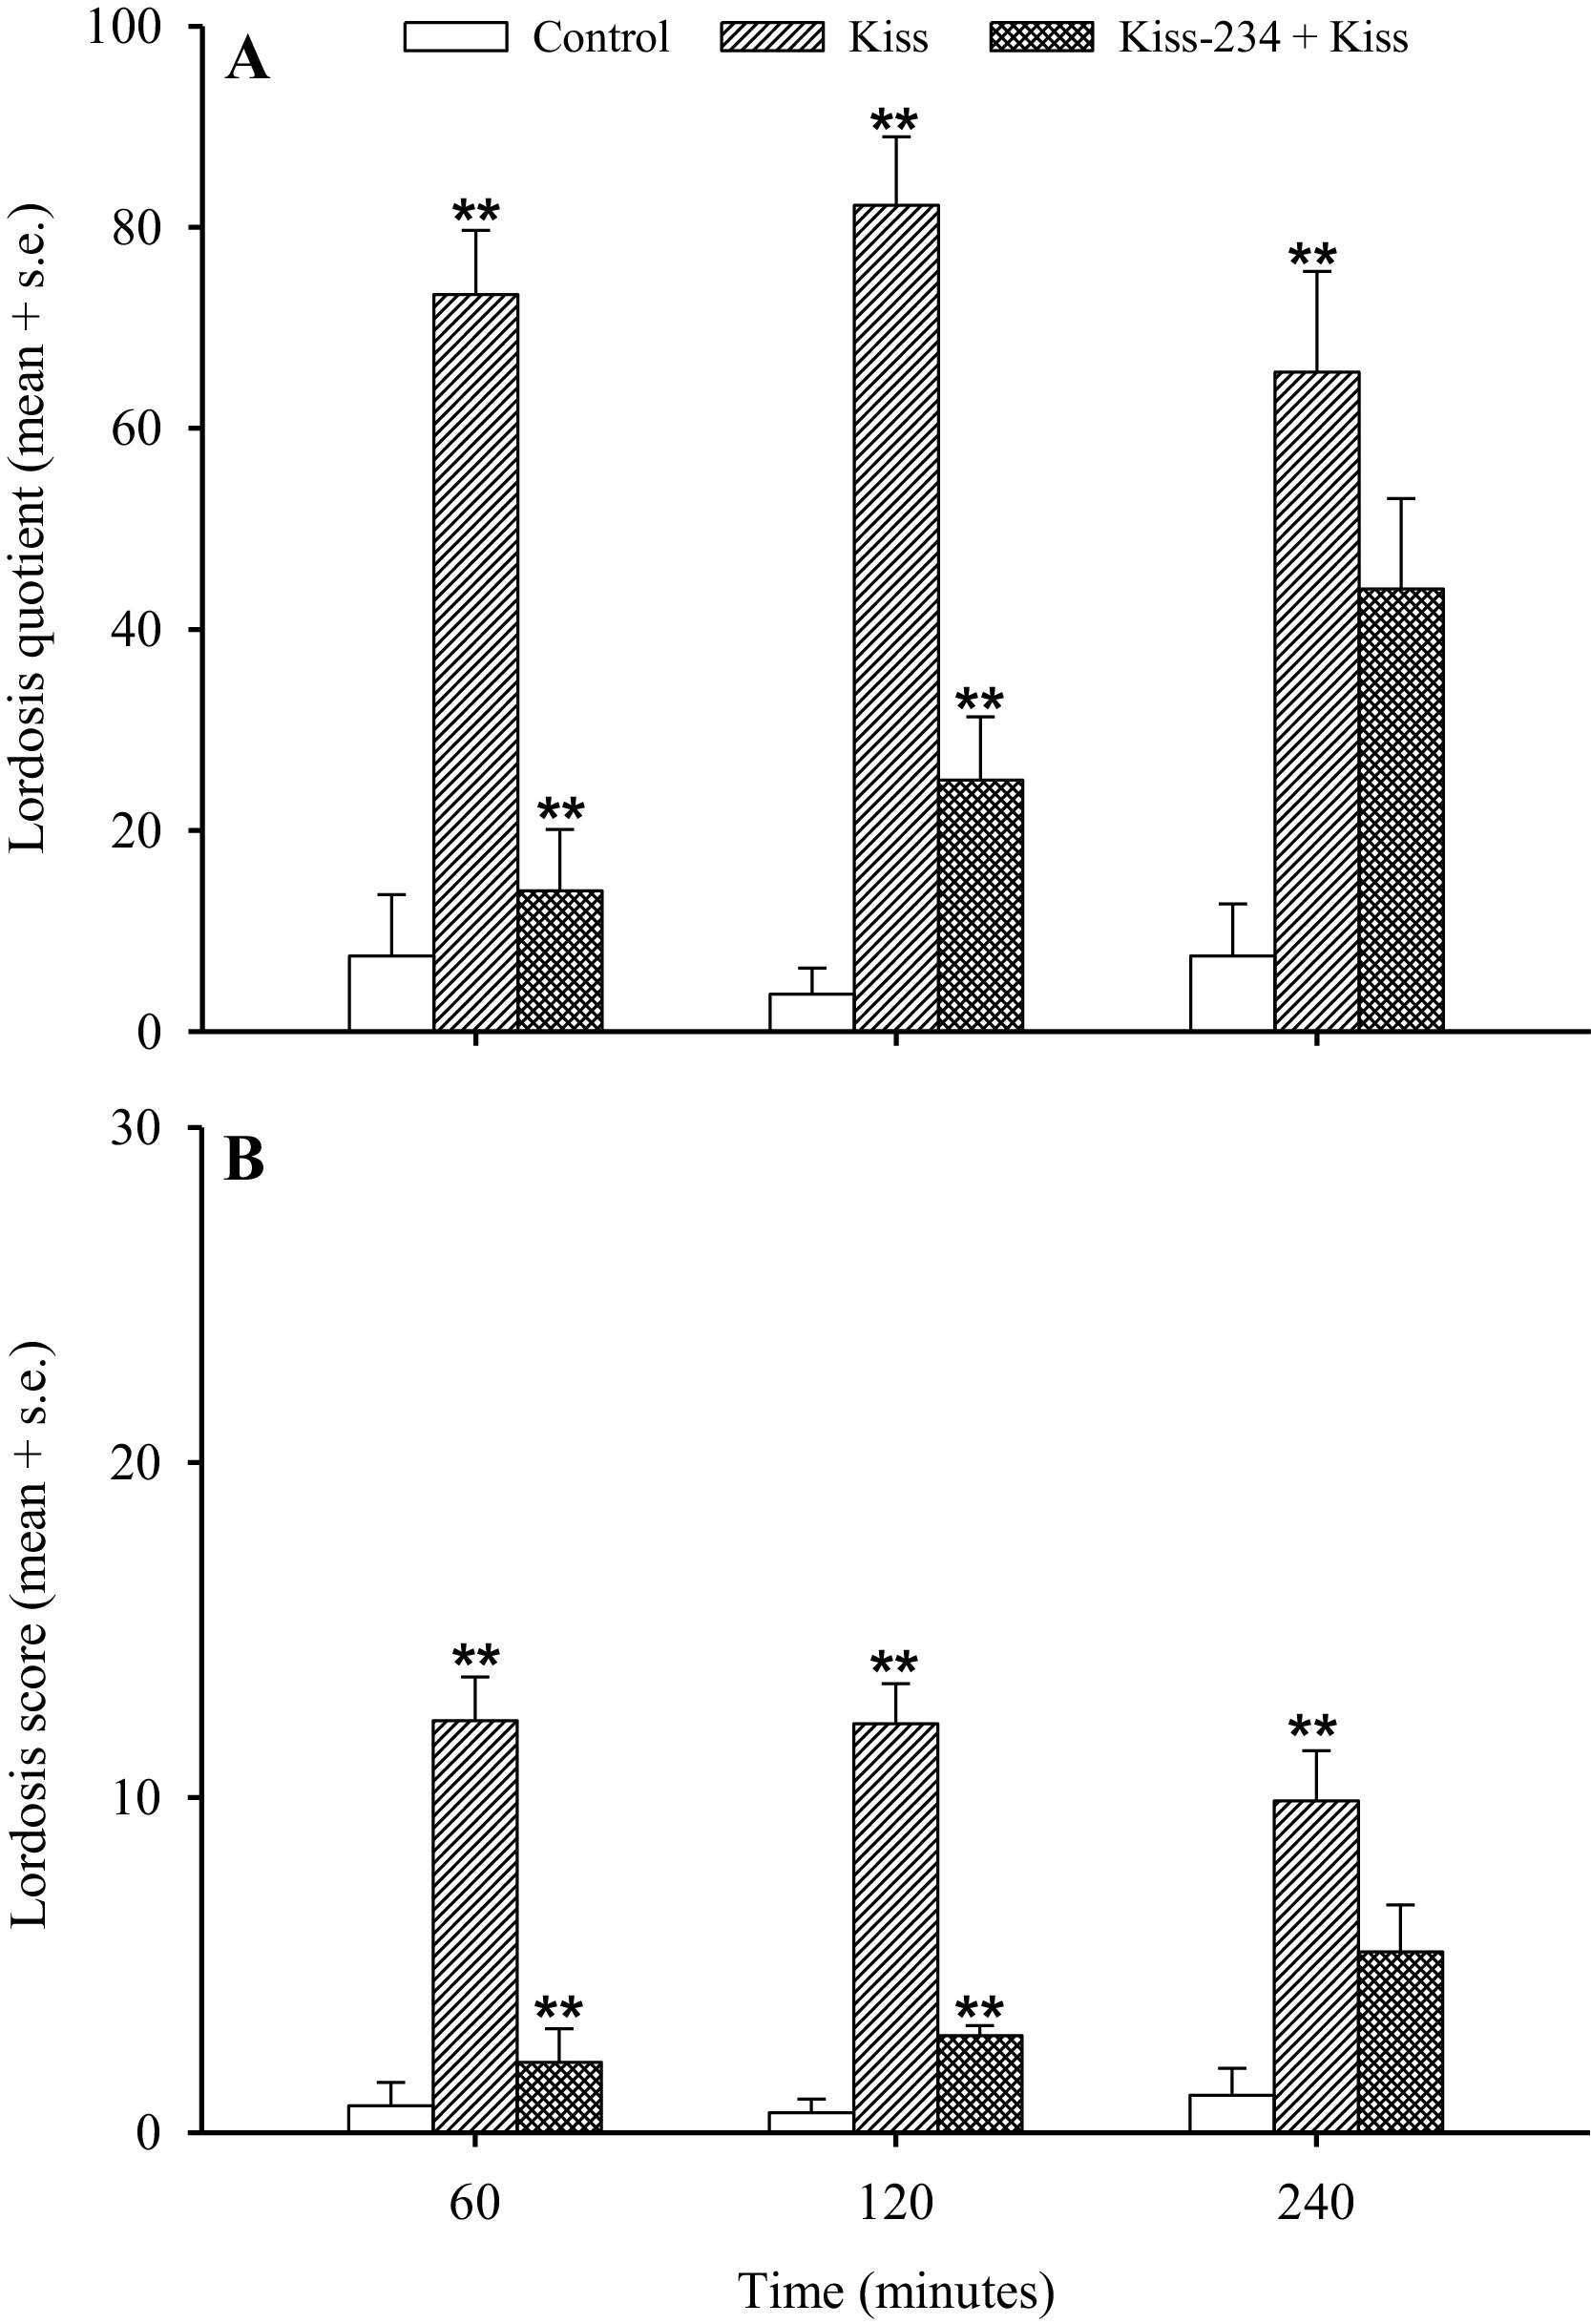
Fig 3. Lordosmätningar rapporterade efter kisspeptinexponering med eller utan KISS1R-antagonisten Kiss-234 hos ovariektomierade råttor.[5]
Källstudien jämförde kisspeptin och kontrollgrupper och utvärderade effekten av Kiss-234-förbehandling på lordoskvot och lordosreflexintensitet. Gruppstorlekar, studiedoser, tidpunkter och statistiska jämförelser rapporteras i den ursprungliga publikationen.[5]
Suvi T. Ruohonen och kollegor genererade möss med oocyt-selektiv deletion av Gpr54/Kiss1r genom att korsa en Gdf9-Cre-linje med en Gpr54 LoxP-linje. De resulterande OoGpr54−/− mössen genomgick fenotypiska, histologiska, hormonella och molekylära analyser över flera postnatala åldrar. Författarna rapporterade normal pubertetsstart men progressiv ägglossningssvikt med åldern, inklusive histologiska förändringar och förändrade äggstocksgenexpressionsprofiler. Eftersom denna studie använde receptordeletion snarare än administrering av en kisspeptinpeptid, rör dess resultat den biologiska rollen av ovarie KISS1R-signalering och är inte en direkt exponeringsstudie för KP-10.[6]
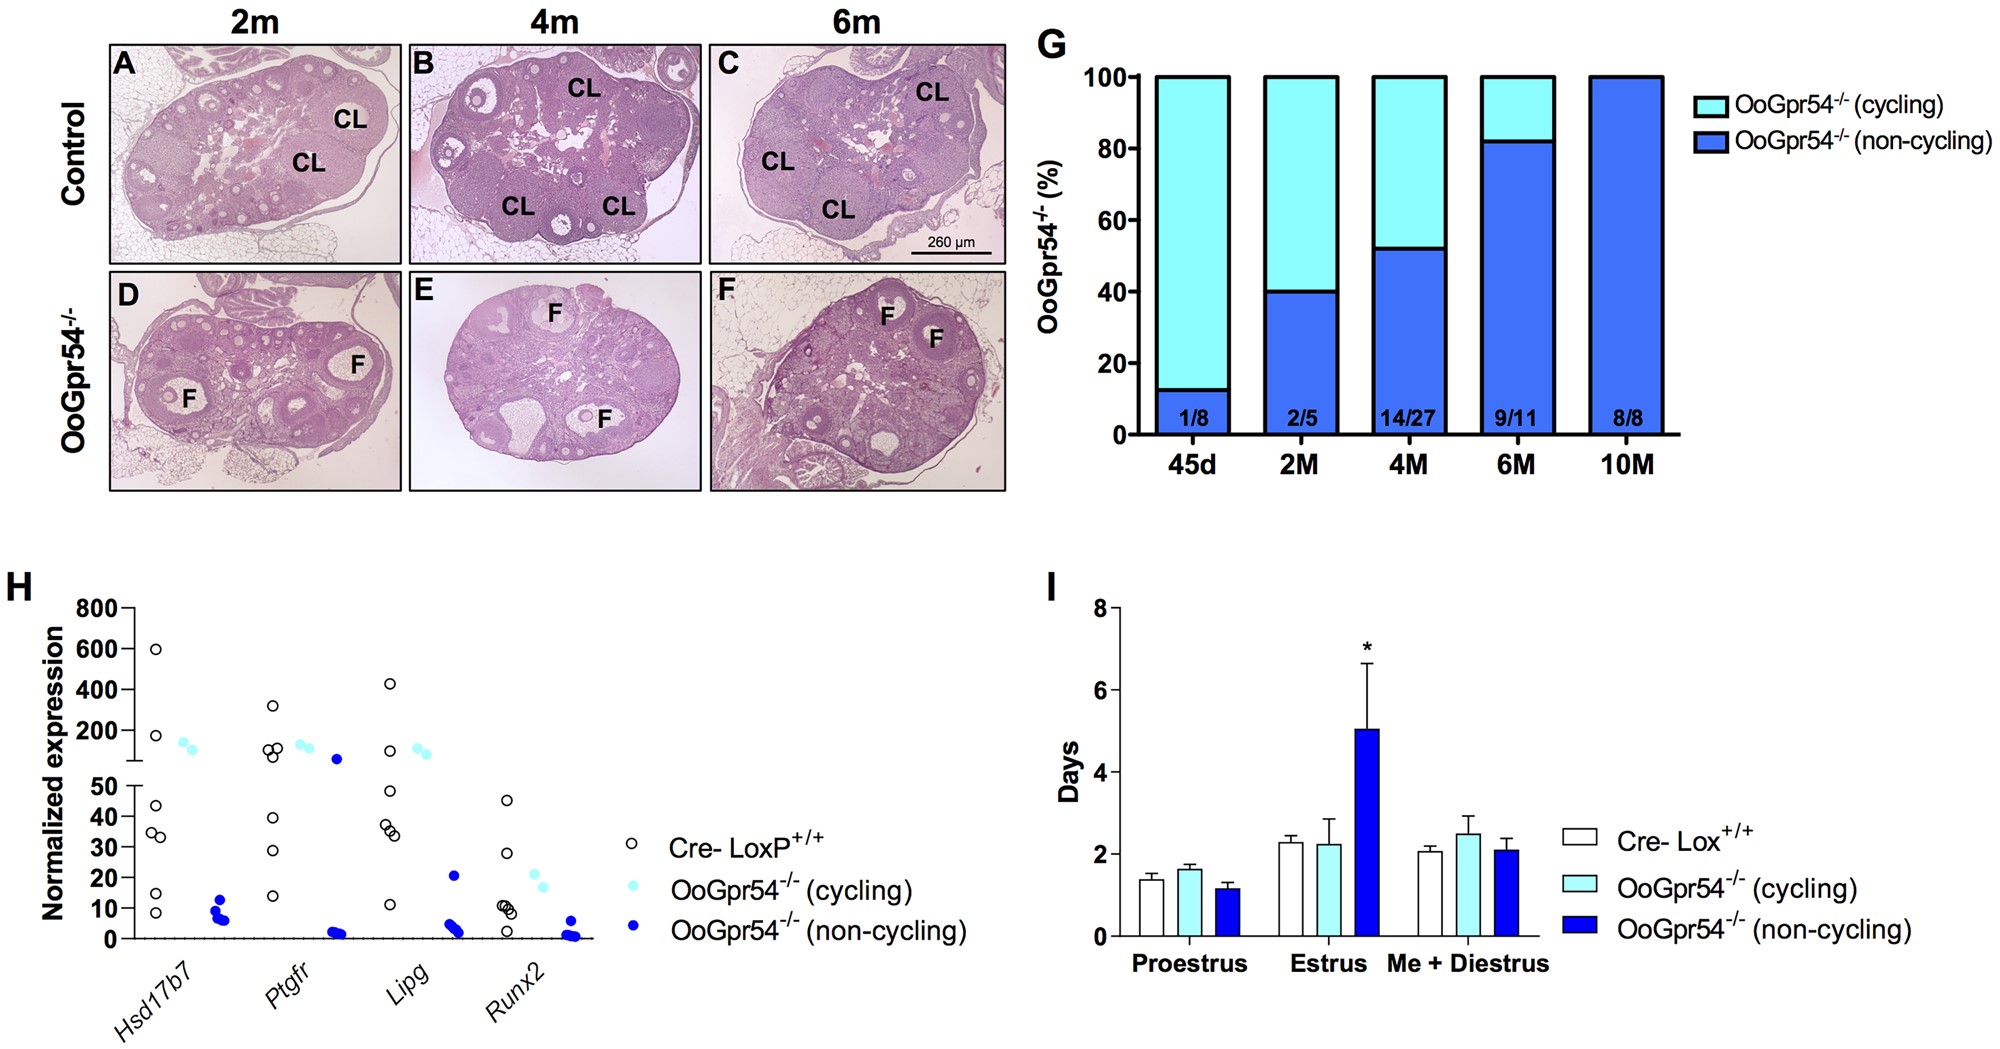
Fig4. Progressiva ägglossningsförändringar rapporterade hos möss med oocytselektiv Gpr54/Kiss1r-deletion.[6]
Paneler (AF) visar representativ äggstockshistologi från kontroll- och OoGpr54−/− möss vid de angivna åldrarna. Panel (G) sammanfattar andelen OoGpr54−/− honor utan corpora lutea, panel (H) presenterar utvalda RNA-sekvenseringsfynd och panel (I) visar brunstcykelmätningar. Gruppstorlekar och statistiska metoder redovisas i den ursprungliga publikationen.[6]
Forskningsbegränsningar
Studierna som sammanfattats ovan utvärderar inte alla samma kisspeptinmolekylform. KISS1-prekursorn kan bearbetas till flera bioaktiva peptider, inklusive KP54, KP14, KP13 och KP10, som delar samma C-terminala dekapeptid men skiljer sig i längd och farmakokinetiskt beteende. Wu-studien använde KP54 och TAK448, medan andra citerade arbeten undersökte endogen kisspeptin-signalering, receptor-knockout-modeller eller kisspeptin-preparat som inte var designade som direkta jämförelser av ett kommersiellt KP-10-forskningsmaterial.[2,3,4,6,7]
KISS1R är en klass AG-proteinkopplad receptor och är mest känd för Gq/11-signalering, även om nya strukturella och funktionella arbeten också stödjer koppling till Gi/o under specifika experimentella förhållanden.[2] Skillnader i peptidisoform, receptoruttryck, art, vävnadskontext, exponeringsväg och experimentell design kan påverka det observerade svaret. Resultat från mus- och råttmodeller bör därför förbli knutna till den exakta peptid, receptormodell och experimentella förhållanden som beskrivs i varje publikation.[2,7]
COCER Peptides presenterar Kisspeptin-10 enbart för laboratorieforskning och analytisk användning. Det är inte avsett för humant eller veterinärt bruk. Forskningen som beskrivs ovan sammanfattar resultat som rapporterats i tredje parts publikationer och är inte ett uttalande om klinisk effekt, säkerhet, diagnos, behandling, förebyggande eller en bruksanvisning.


