

|
1 souprava (10 lahviček)
| Množství: | |
|---|---|
▎ kisspeptinu Struktura
Zdroj: PubChem |
Sekvence:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF vzorec 258CHNO401Molekulární 79: 78 Molekulová hmotnost: 5857 g/mol PubChem CID: 71306396 Synonyma: Protein KISS-1;Kisspeptiny |
▎ kisspeptinu Výzkum
Molekulární Pozadí
Kisspeptin-10 (KP-10) je 10-aminokyselinový C-terminální fragment prekurzoru kisspeptinu odvozeného od KISS1. Jeho aminokyselinová sekvence je Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2) a váže receptor KISS1R spřažený s G proteinem. PubChem uvádí lidský Kisspeptin-10 pod CID 25240297, s molekulovým vzorcem C63H83N17O14 a molekulovou hmotností přibližně 1302,4 g/mol.[1,8]
Výzkumný pokrok
Zhangsong Wu a kolegové určili kryo-EM struktury komplexů KISS1R-Gq a KISS1R-Gi vázaných na syntetického agonistu TAK448 spolu s komplexem KISS1R-Gq vázaným na endogenní KP54. Funkční testy ve stejné studii ukázaly, že KISS1R se může spojit s Gi/o dráhou kromě zavedené Gq/11 dráhy. Autoři uvádějí strukturální rozdíly v receptorových extracelulárních a intracelulárních smyčkách a na rozhraní Ga-podjednotky, které mohou přispívat k selektivitě vazby G-proteinu. Tato strukturální studie používala KP54 a TAK448 spíše než KP-10 jako vázané ligandy.[2]
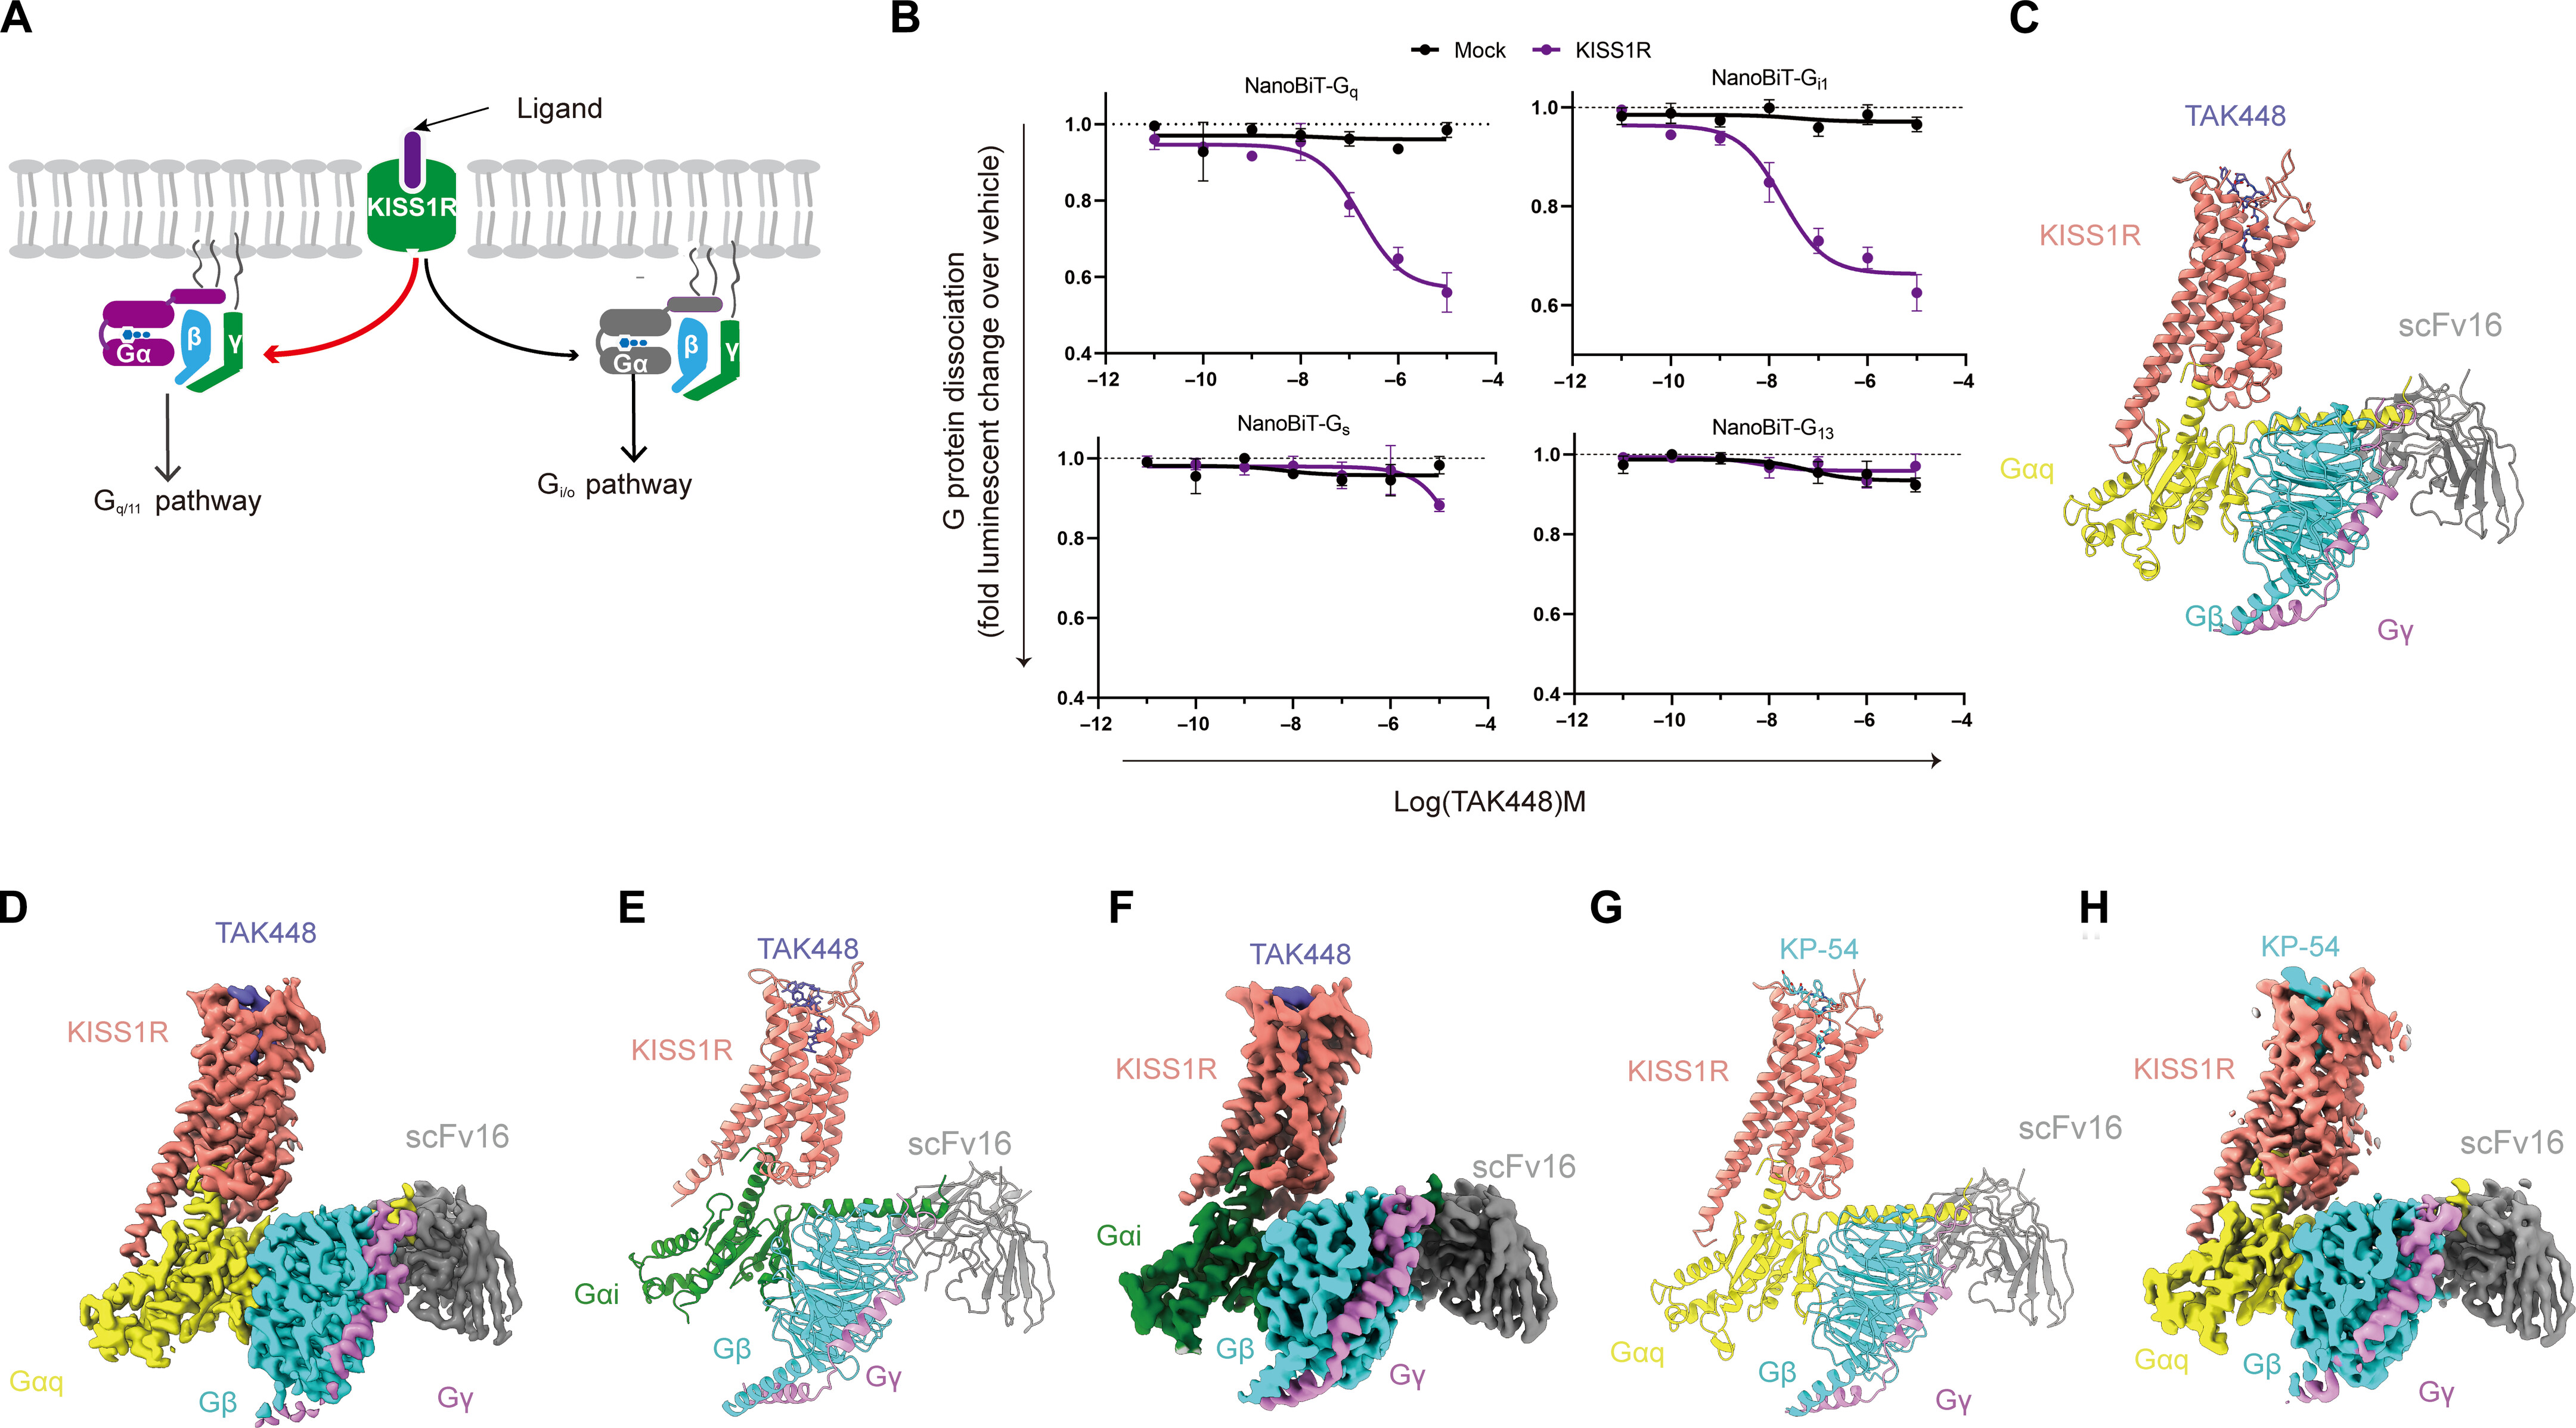
Obr. Cryo-EM struktury proteinových komplexů KISS1R-G uváděné s TAK448 a KP54 v citované studii.[2]
(A) Schematické znázornění vazby G-proteinu KISS1R zkoumané ve zdrojové studii. (B) NanoBiT G-proteinové disociační testy pro uvedené členy G-proteinu po expozici TAK448. (CH) Cryo-EM modely a mapy komplexů TAK448-KISS1R-Gq, TAK448-KISS1R-Gi a KP54-KISS1R-Gq. Experimentální podmínky a statistické podrobnosti jsou uvedeny v původní publikaci.[2]
Jenny Clarkson a Allan Herbison studovali postnatální vývoj populací neuronů kisspeptinu a jejich projekce na neurony GnRH u myší. Pomocí antiséra proti myšímu kisspeptinu-10 identifikovali kisspeptin-imunoreaktivní populace v anteroventrální periventrikulární/preoptické periventrikulární oblasti, dorzomediálním hypotalamu a arcuate nucleus. Autoři zaznamenali výrazný rozdíl v počtu AVPV/PeN kisspeptinových neuronů v počtu neuronů AVPV/PeN a pozorovali těsné apozice mezi vlákny kisspeptinu a těly buněk neuronů GnRH vznikajících během postnatálního vývoje. Tato práce charakterizovala endogenní neuronální expresi a vývoj spíše než účinky externě dodávaného materiálu KP-10.[3]
Alexander S. Kauffman a kolegové použili dospělé myši divokého typu (WT) a GPR54/KISS1R knockout (KO) myši ke zkoumání role signalizace kisspeptin-receptor v sexuálně dimorfním chování a neurálním vývoji. Muži a ženy GPR54 KO nahrazení hormony si zachovali pohlavně typické kopulační chování, zatímco byly pozorovány rozdíly v preferenci čichového partnera a v několika sexuálně dimorfních nervových vlastnostech. Autoři dospěli k závěru, že signalizace GPR54 nebyla vyžadována pro kopulační chování dospělých za použitých podmínek hormonální substituce, ale byla zapojena do vývoje vybraných sexuálně dimorfních znaků.[4]
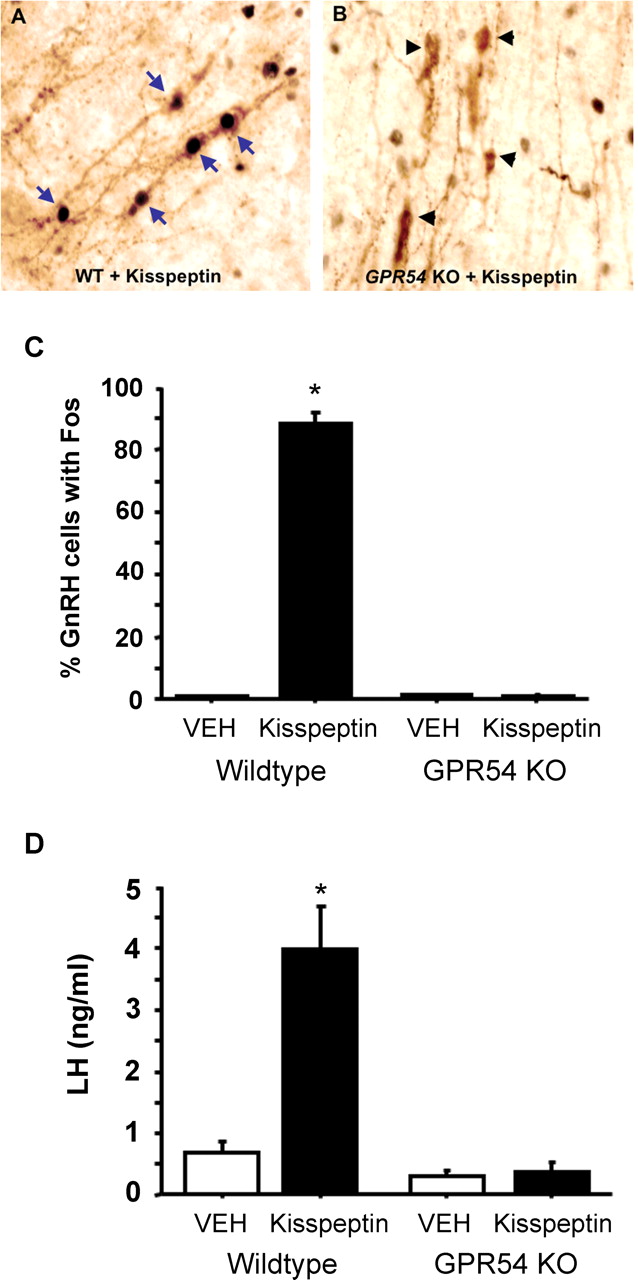
Obr. GnRH-neuron Fos imunoreaktivita a měření LH v plazmě hlášené po intracerebroventrikulární expozici kisspeptinu u samců myší WT a GPR54 KO.[4]
*p < 0,05 oproti skupině WT léčené vehikulem, jak bylo uvedeno v původní studii.[4]
Oscar González-Flores a kolegové zkoumali intracerebroventrikulární expozici kisspeptinu u krys po ovariektomii primárně s estradiol benzoátem. Autoři měřili lordózní kvocient a intenzitu lordózního reflexu a následně použili antagonistu KISS1R Kiss-234, antagonistu progesteronového receptoru RU486 a antagonistu receptoru GnRH-1 k vyšetření receptorového zapojení. Expozice kisspeptinu byla spojena s vyššími hodnotami lordózy u potkaního modelu, zatímco předléčení antagonistou snižovalo odezvu ve vybraných časových bodech. Zjištění podpořila zapojení KISS1R, progesteron-receptoru a GnRH-receptorové signalizace za podmínek studie.[5]
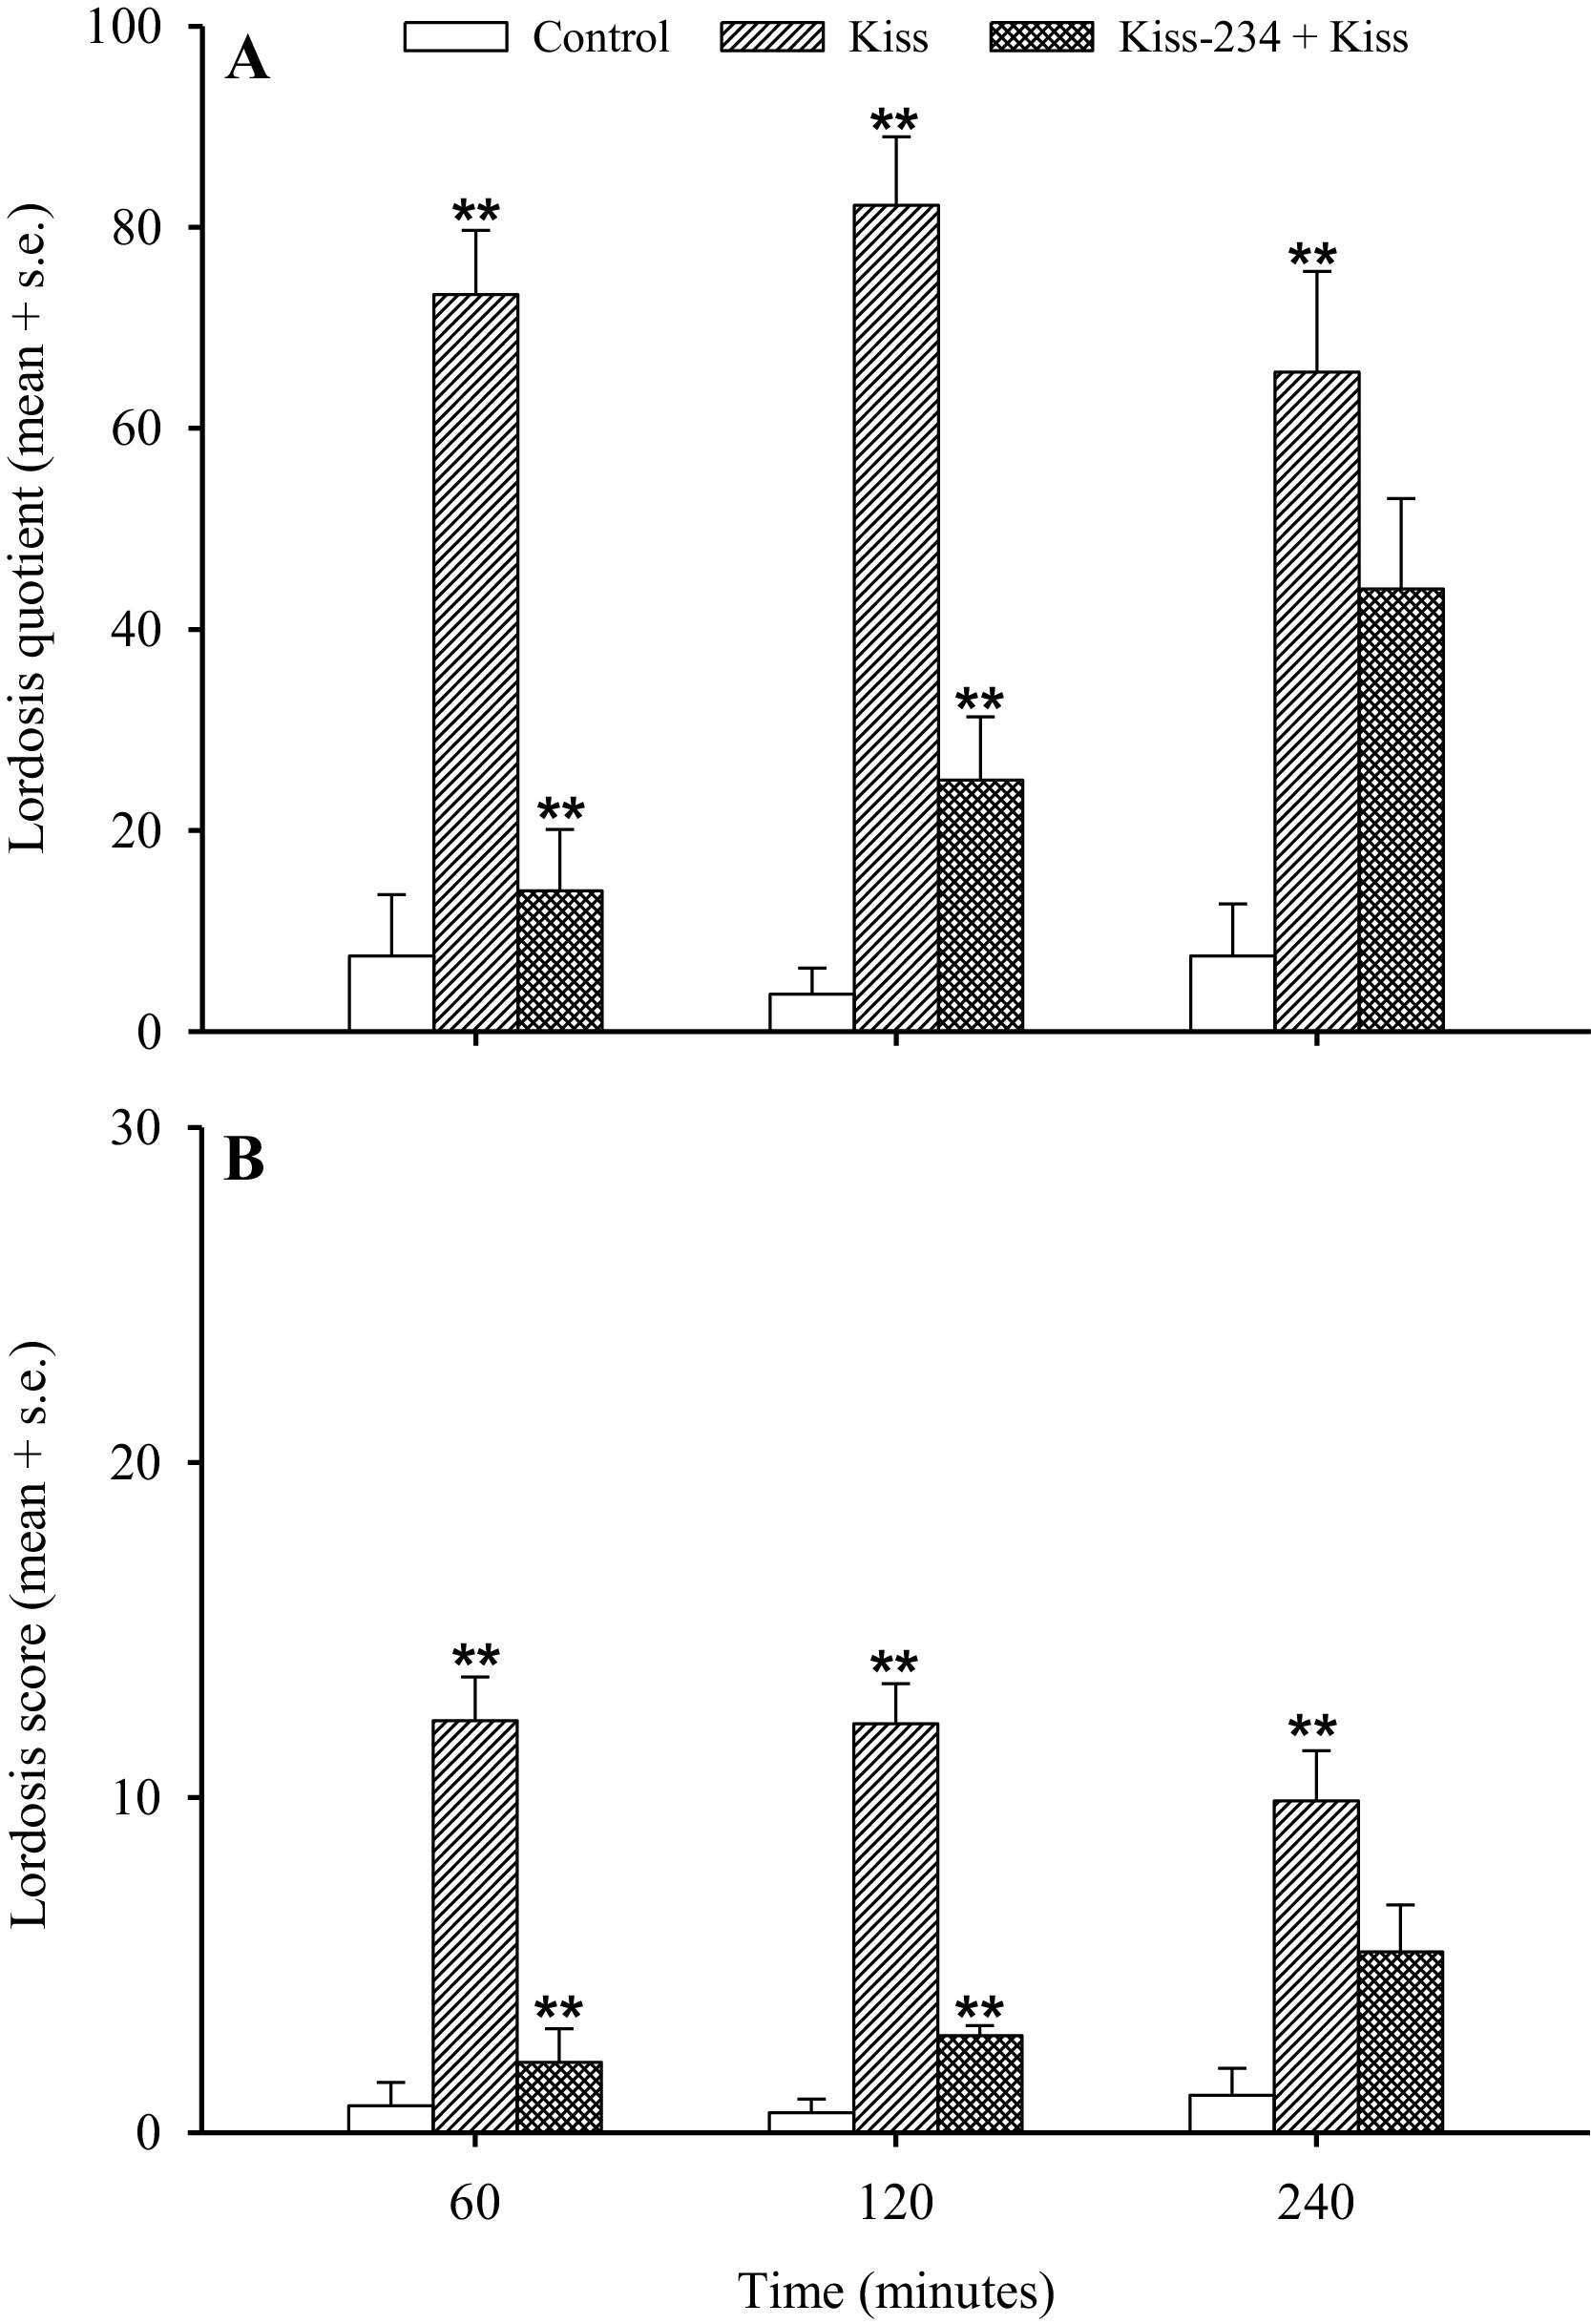
Obr. Měření lordózy hlášené po expozici kisspeptinu s nebo bez antagonisty KISS1R Kiss-234 u krys po ovariektomii.[5]
Zdrojová studie porovnávala kisspeptin a kontrolní skupiny a hodnotila účinek předléčení Kiss-234 na lordózní kvocient a intenzitu lordózního reflexu. Velikosti skupin, studijní dávky, časové body a statistická srovnání jsou uvedeny v původní publikaci.[5]
Suvi T. Ruohonen a kolegové vytvořili myši s oocytově selektivní delecí Gpr54/Kiss1r křížením linie Gdf9-Cre s linií Gpr54 LoxP. Výsledné myši OoGpr54−/− podstoupily fenotypové, histologické, hormonální a molekulární analýzy v několika postnatálních věkových kategoriích. Autoři uvádějí normální nástup puberty, ale progresivní ovulační selhání s věkem, včetně histologických změn a změněných profilů exprese ovariálních genů. Protože tato studie používala spíše deleci receptoru než podávání kisspeptinového peptidu, její zjištění se týkají biologické role ovariální signalizace KISS1R a nejsou přímou studií expozice KP-10.[6]
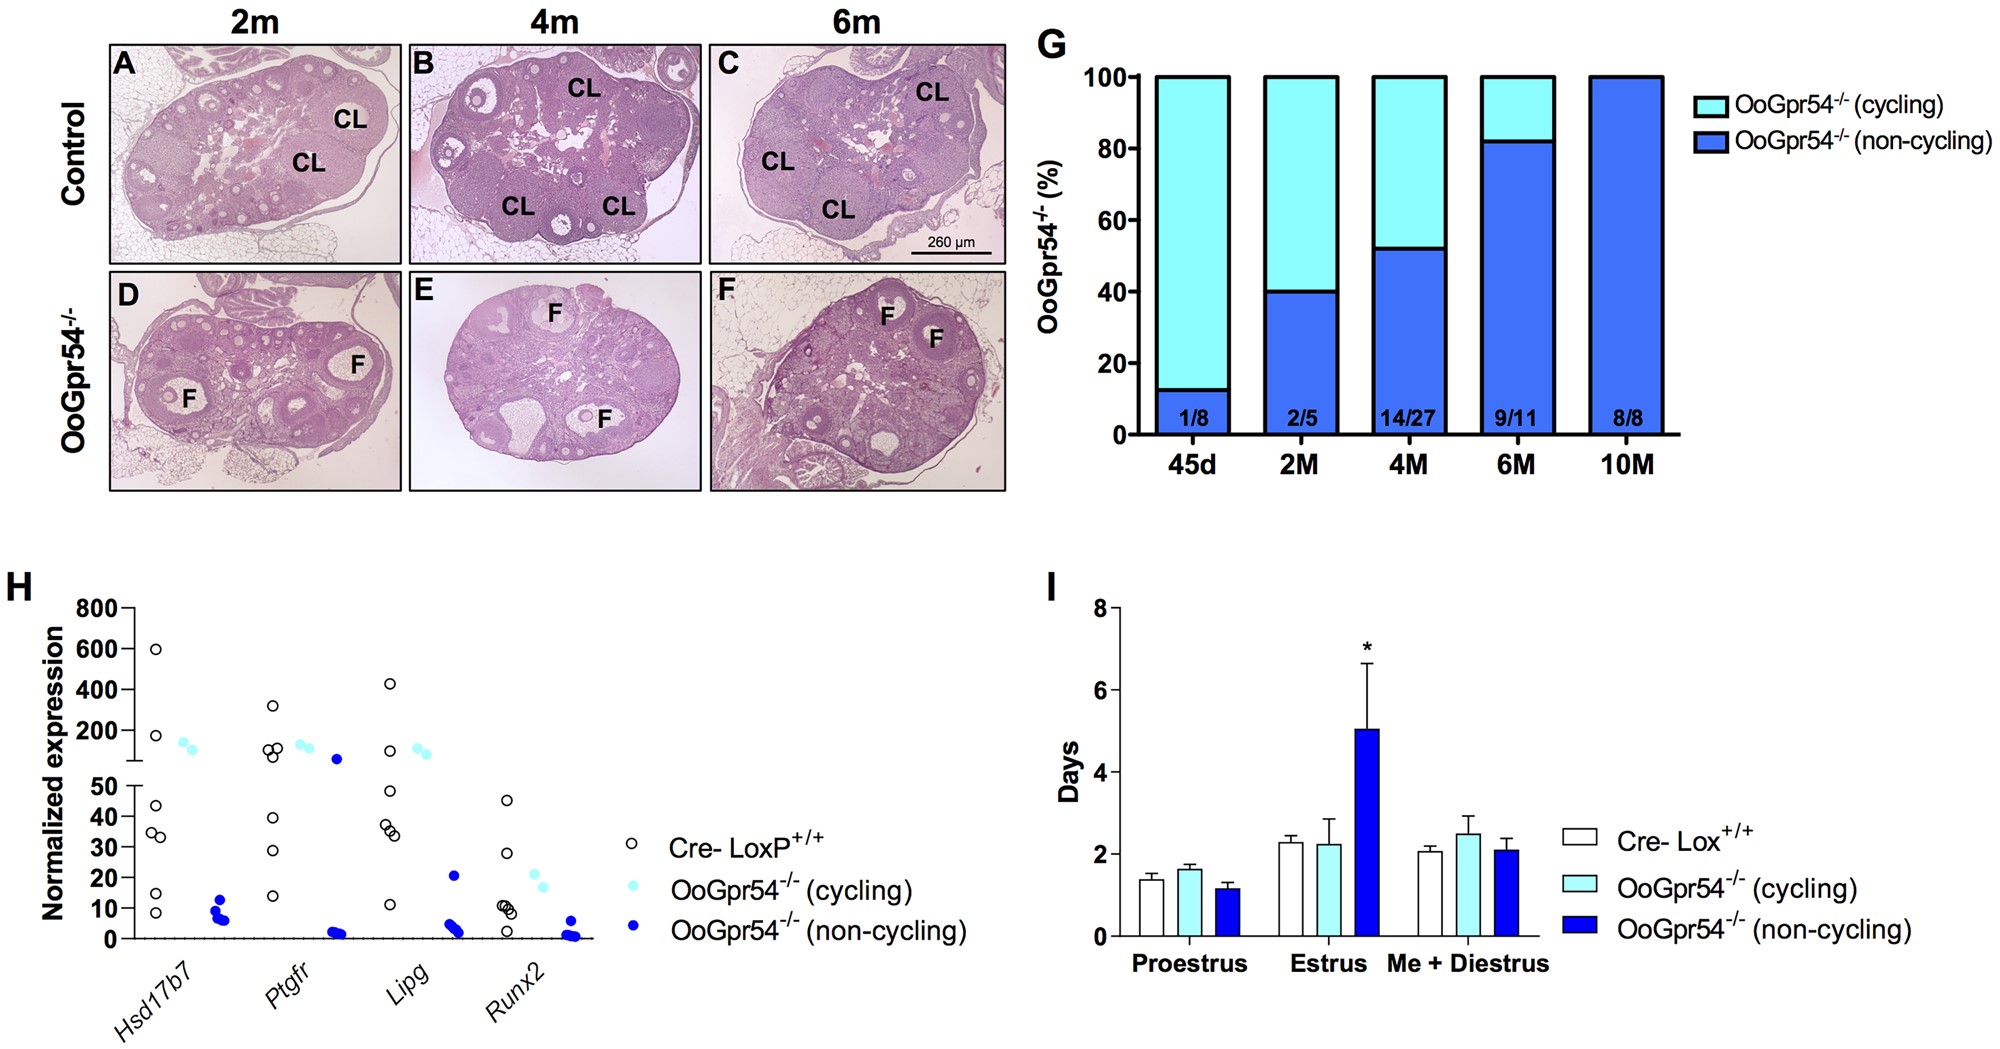
Obr. Progresivní ovulační změny hlášené u myší s oocytově selektivní delecí Gpr54/Kiss1r.[6]
Panely (AF) ukazují reprezentativní ovariální histologii z kontrolních a OoGpr54−/− myší v uvedeném věku. Panel (G) shrnuje podíl samic OoGpr54−/− bez žlutých tělísek, panel (H) uvádí vybrané nálezy sekvenování RNA a panel (I) ukazuje měření estrálního cyklu. Velikosti skupin a statistické metody jsou uvedeny v původní publikaci.[6]
Omezení výzkumu
Výše uvedené studie nehodnotí stejnou molekulární formu kisspeptinu. Prekurzor KISS1 může být zpracován na několik bioaktivních peptidů, včetně KP54, KP14, KP13 a KP10, které sdílejí stejný C-terminální dekapeptid, ale liší se délkou a farmakokinetickým chováním. Studie Wu používala KP54 a TAK448, zatímco jiná citovaná práce zkoumala endogenní signalizaci kisspeptinu, modely knockout receptorů nebo přípravky kisspeptinu, které nebyly navrženy jako přímé srovnání komerčního výzkumného materiálu KP-10.[2,3,4,6,7]
KISS1R je receptor spřažený s proteinem třídy AG a je nejlépe známý pro signalizaci Gq/11, i když nedávné strukturální a funkční práce také podporují vazbu na Gi/o za specifických experimentálních podmínek.[2] Rozdíly v izoformě peptidu, expresi receptoru, druhu, tkáňovém kontextu, cestě expozice a experimentálním uspořádání mohou ovlivnit pozorovanou odpověď. Výsledky z myších a potkaních modelů by proto měly zůstat vázány na přesný peptid, model receptoru a experimentální podmínky popsané v každé publikaci.[2,7]
COCER Peptides představuje Kisspeptin-10 výhradně pro laboratorní výzkum a analytické použití. Není určen pro humánní ani veterinární použití. Výše popsaný výzkum shrnuje poznatky uváděné v publikacích třetích stran a není prohlášením o klinické účinnosti, bezpečnosti, diagnóze, léčbě, prevenci ani návodem k použití.


