

|
1 sæt (10 hætteglas)
| Mængde: | |
|---|---|
▎ Kisspeptin struktur
Kilde: PubChem |
Sekvens:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF Molekylformel: C 258H 401N 79O78 Molekylvægt: 5857 g/mol PubChem CID:71306396 Synonymer: Protein KISS-1;Kisspeptiner |
▎ Kisspeptin Research
Molekylær baggrund
Kisspeptin-10 (KP-10) er et 10-aminosyre C-terminalt fragment af den KISS1-afledte kisspeptin precursor. Dens aminosyresekvens er Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2), og den binder den G-proteinkoblede receptor KISS1R. PubChem lister humant Kisspeptin-10 under CID 25240297 med molekylformlen C63H83N17O14 og en molekylvægt på ca. 1302,4 g/mol.[1,8]
Forskningsfremskridt
Zhangsong Wu og kolleger bestemte cryo-EM strukturer af KISS1R-Gq og KISS1R-Gi komplekser bundet til den syntetiske agonist TAK448, sammen med et KISS1R-Gq kompleks bundet til endogent KP54. Funktionelle analyser i samme undersøgelse indikerede, at KISS1R kan kobles til Gi/o-vejen ud over den etablerede Gq/11-vej. Forfatterne rapporterede strukturelle forskelle i receptorens ekstracellulære og intracellulære løkker og i Gα-underenhedsgrænsefladen, der kan bidrage til G-proteinkoblingsselektivitet. Denne strukturelle undersøgelse brugte KP54 og TAK448 i stedet for KP-10 som de bundne ligander.[2]
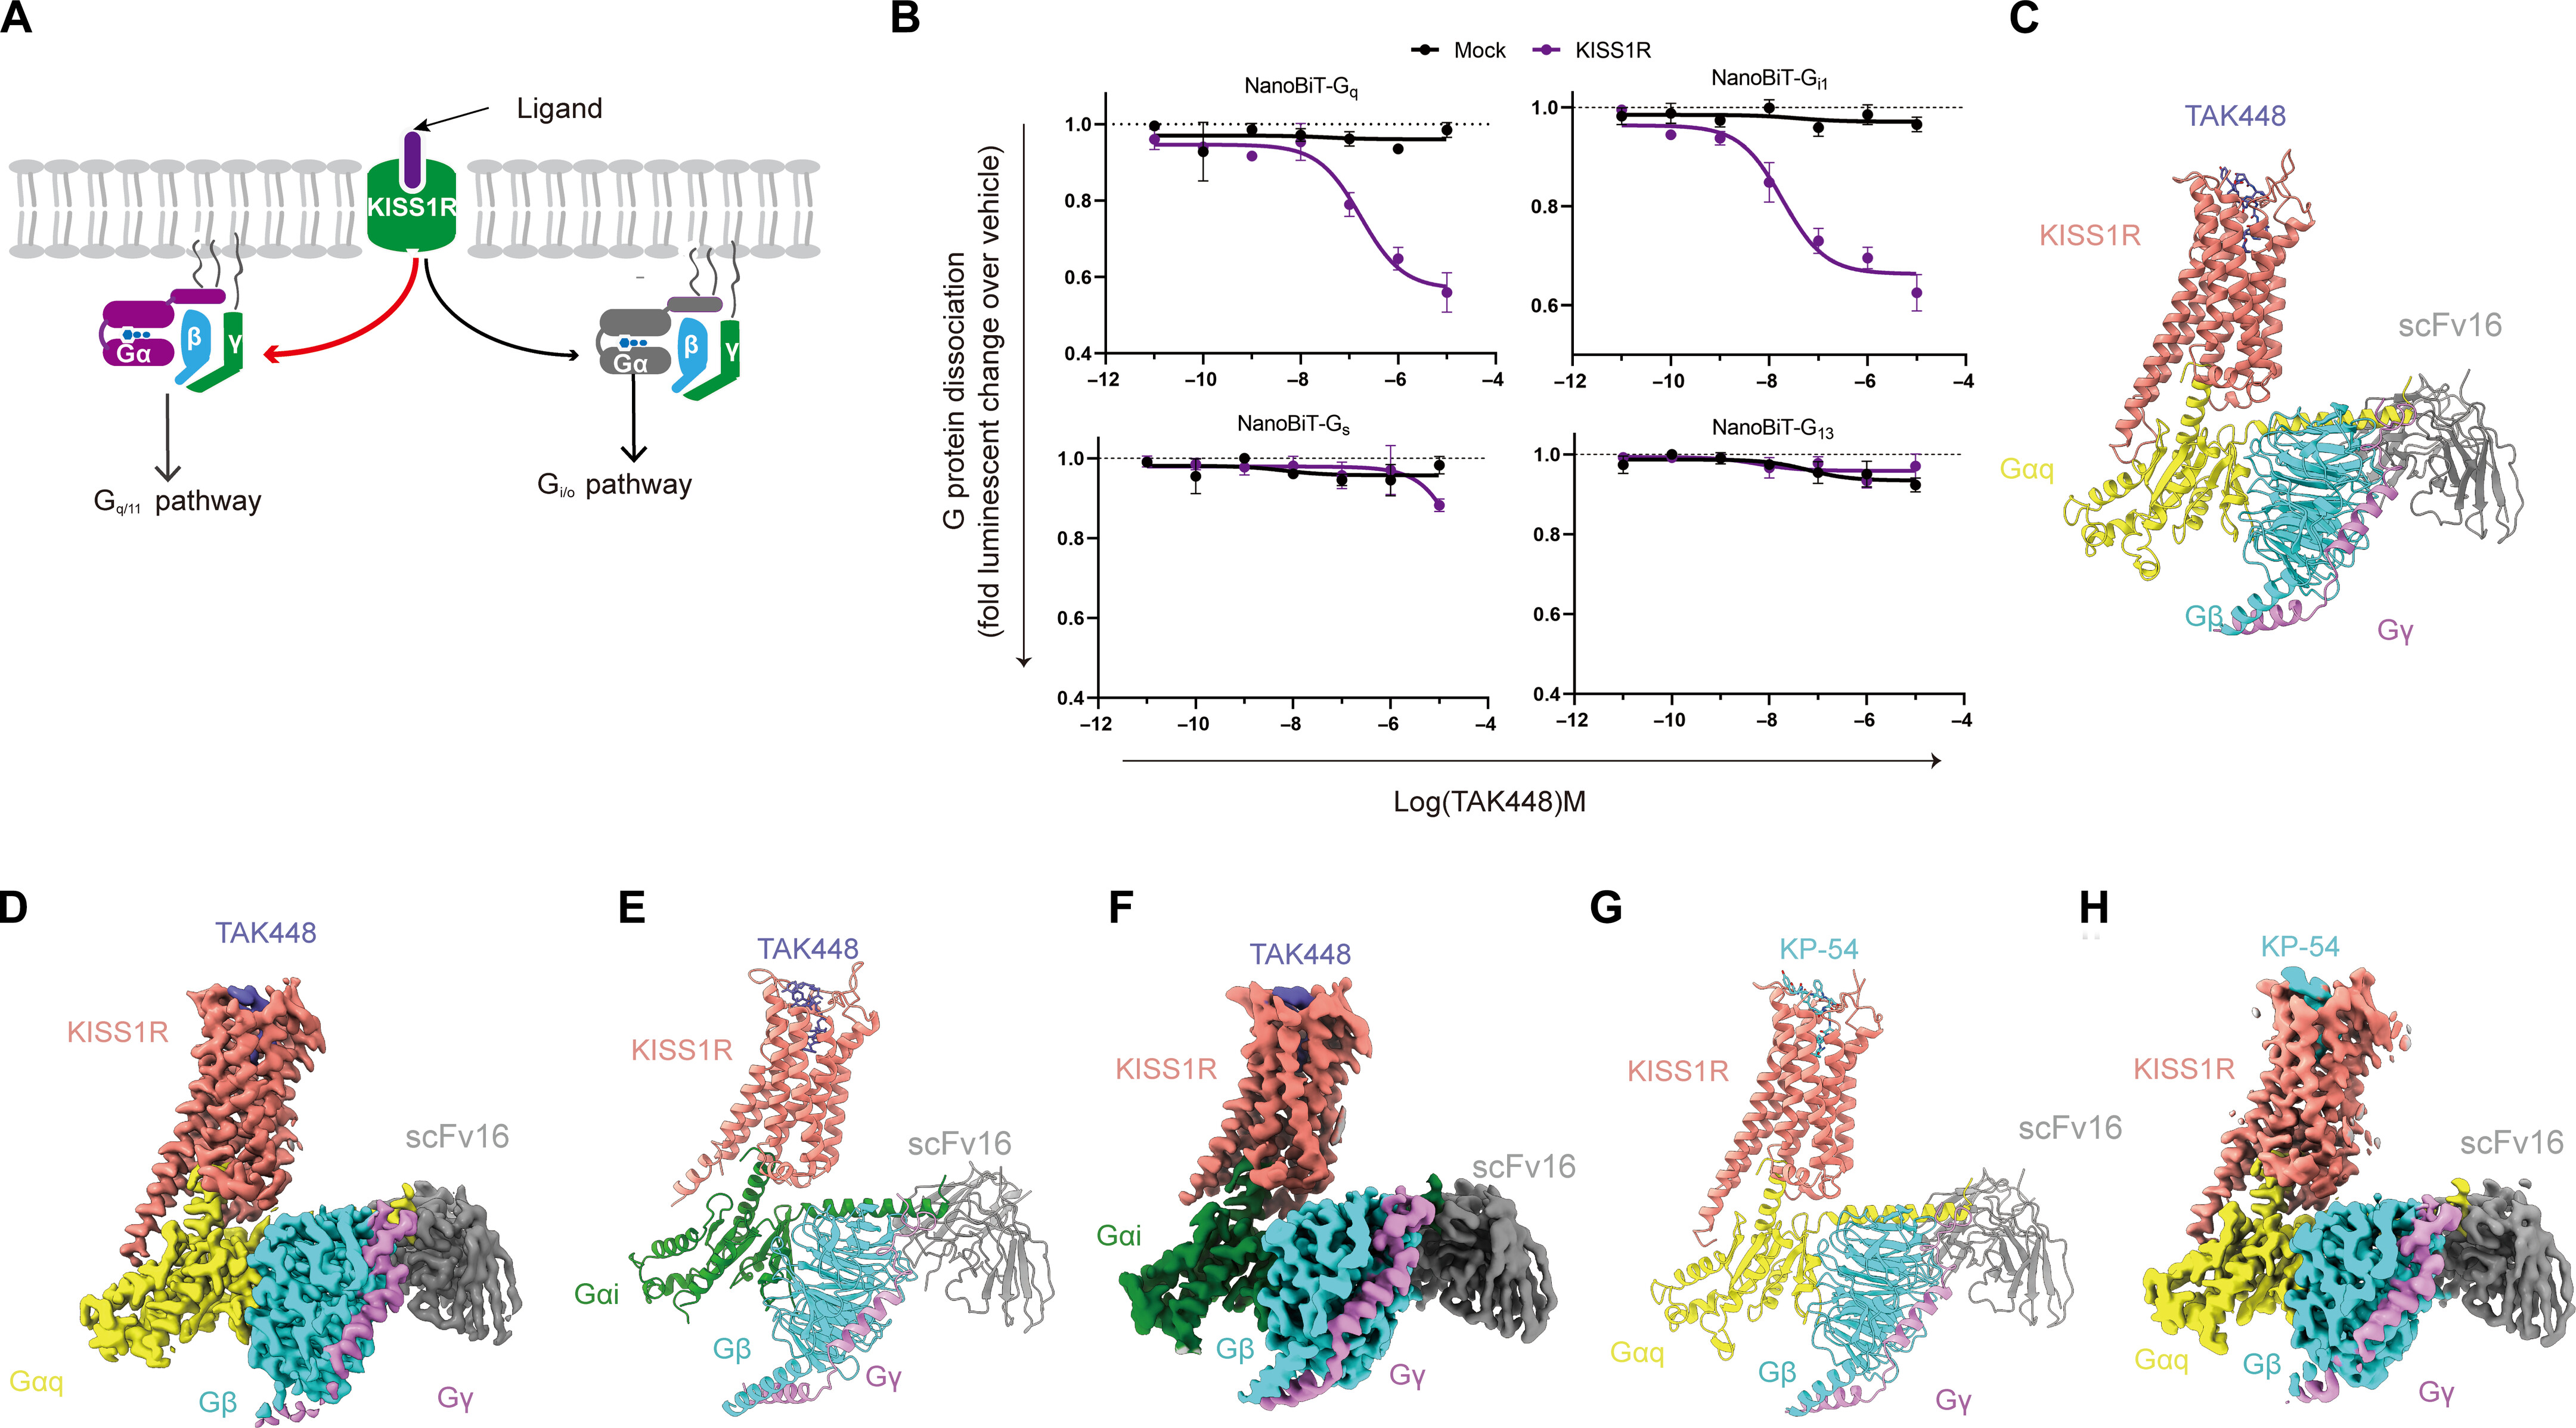
Fig1. Cryo-EM strukturer af KISS1R-G proteinkomplekser rapporteret med TAK448 og KP54 i den citerede undersøgelse.[2]
(A) Skematisk repræsentation af KISS1R G-proteinkobling undersøgt i kildestudiet. (B) NanoBiT G-protein dissociationsassays for de angivne G-protein medlemmer efter TAK448 eksponering. (CH) Cryo-EM modeller og kort over TAK448-KISS1R-Gq, TAK448-KISS1R-Gi og KP54-KISS1R-Gq komplekser. Eksperimentelle forhold og statistiske detaljer er rapporteret i den originale publikation.[2]
Jenny Clarkson og Allan Herbison studerede den postnatale udvikling af kisspeptin-neuronpopulationer og deres projektioner til GnRH-neuroner hos mus. Ved hjælp af et antiserum rejst mod muse-kisspeptin-10 identificerede de kisspeptin-immunoreaktive populationer i den anteroventrale periventrikulære/præoptiske periventrikulære region, den dorsomediale hypothalamus og den buede kerne. Forfatterne rapporterede en markant kvindedominant forskel i AVPV/PeN-kisspeptin-neurontal og observerede tætte appositioner mellem kisspeptinfibre og GnRH-neuroncellelegemer, der dukkede op under postnatal udvikling. Dette arbejde karakteriserede endogen neuronal ekspression og udvikling snarere end virkningerne af et eksternt leveret KP-10-materiale.[3]
Alexander S. Kauffman og kolleger brugte voksne vildtype (WT) og GPR54/KISS1R knockout (KO) mus til at undersøge rollen af kisspeptin-receptor signalering i seksuel dimorf adfærd og neural udvikling. Hormonerstattede GPR54 KO mænd og kvinder bevarede kønstypisk kopulatorisk adfærd, mens forskelle blev observeret i olfaktoriske partnerpræferencer og i flere seksuelt dimorfe neurale træk. Forfatterne konkluderede, at GPR54-signalering ikke var påkrævet for voksen kopulatorisk adfærd under de anvendte hormon-erstatningsbetingelser, men var involveret i udviklingen af udvalgte seksuelt dimorfe træk.[4]
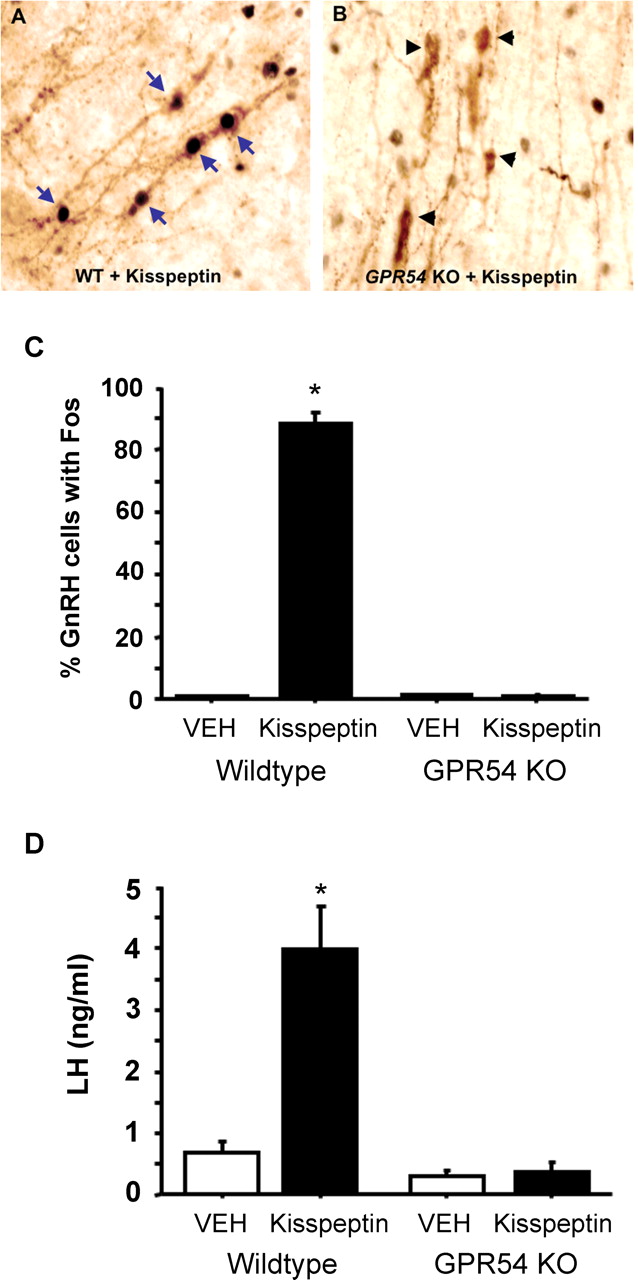
Fig. 2. GnRH-neuron Fos immunreaktivitet og plasma LH målinger rapporteret efter intracerebroventrikulær kisspeptin eksponering i WT og GPR54 KO hanmus.[4]
*p < 0,05 versus den vehikelbehandlede WT-gruppe, som rapporteret i den oprindelige undersøgelse.[4]
Oscar González-Flores og kolleger undersøgte intracerebroventrikulær kisspeptin eksponering i ovariektomiserede rotter primet med østradiolbenzoat. Forfatterne målte lordosekvotient og lordoserefleksintensitet og brugte derefter KISS1R-antagonisten Kiss-234, progesteronreceptorantagonisten RU486 og GnRH-1-receptorantagonistantidet til at undersøge receptorinvolvering. Kisspeptineksponering var forbundet med højere lordosemålinger i rottemodellen, mens antagonistforbehandling reducerede responsen på udvalgte tidspunkter. Resultaterne understøttede involvering af KISS1R, progesteron-receptor og GnRH-receptor-signalering under undersøgelsens betingelser.[5]
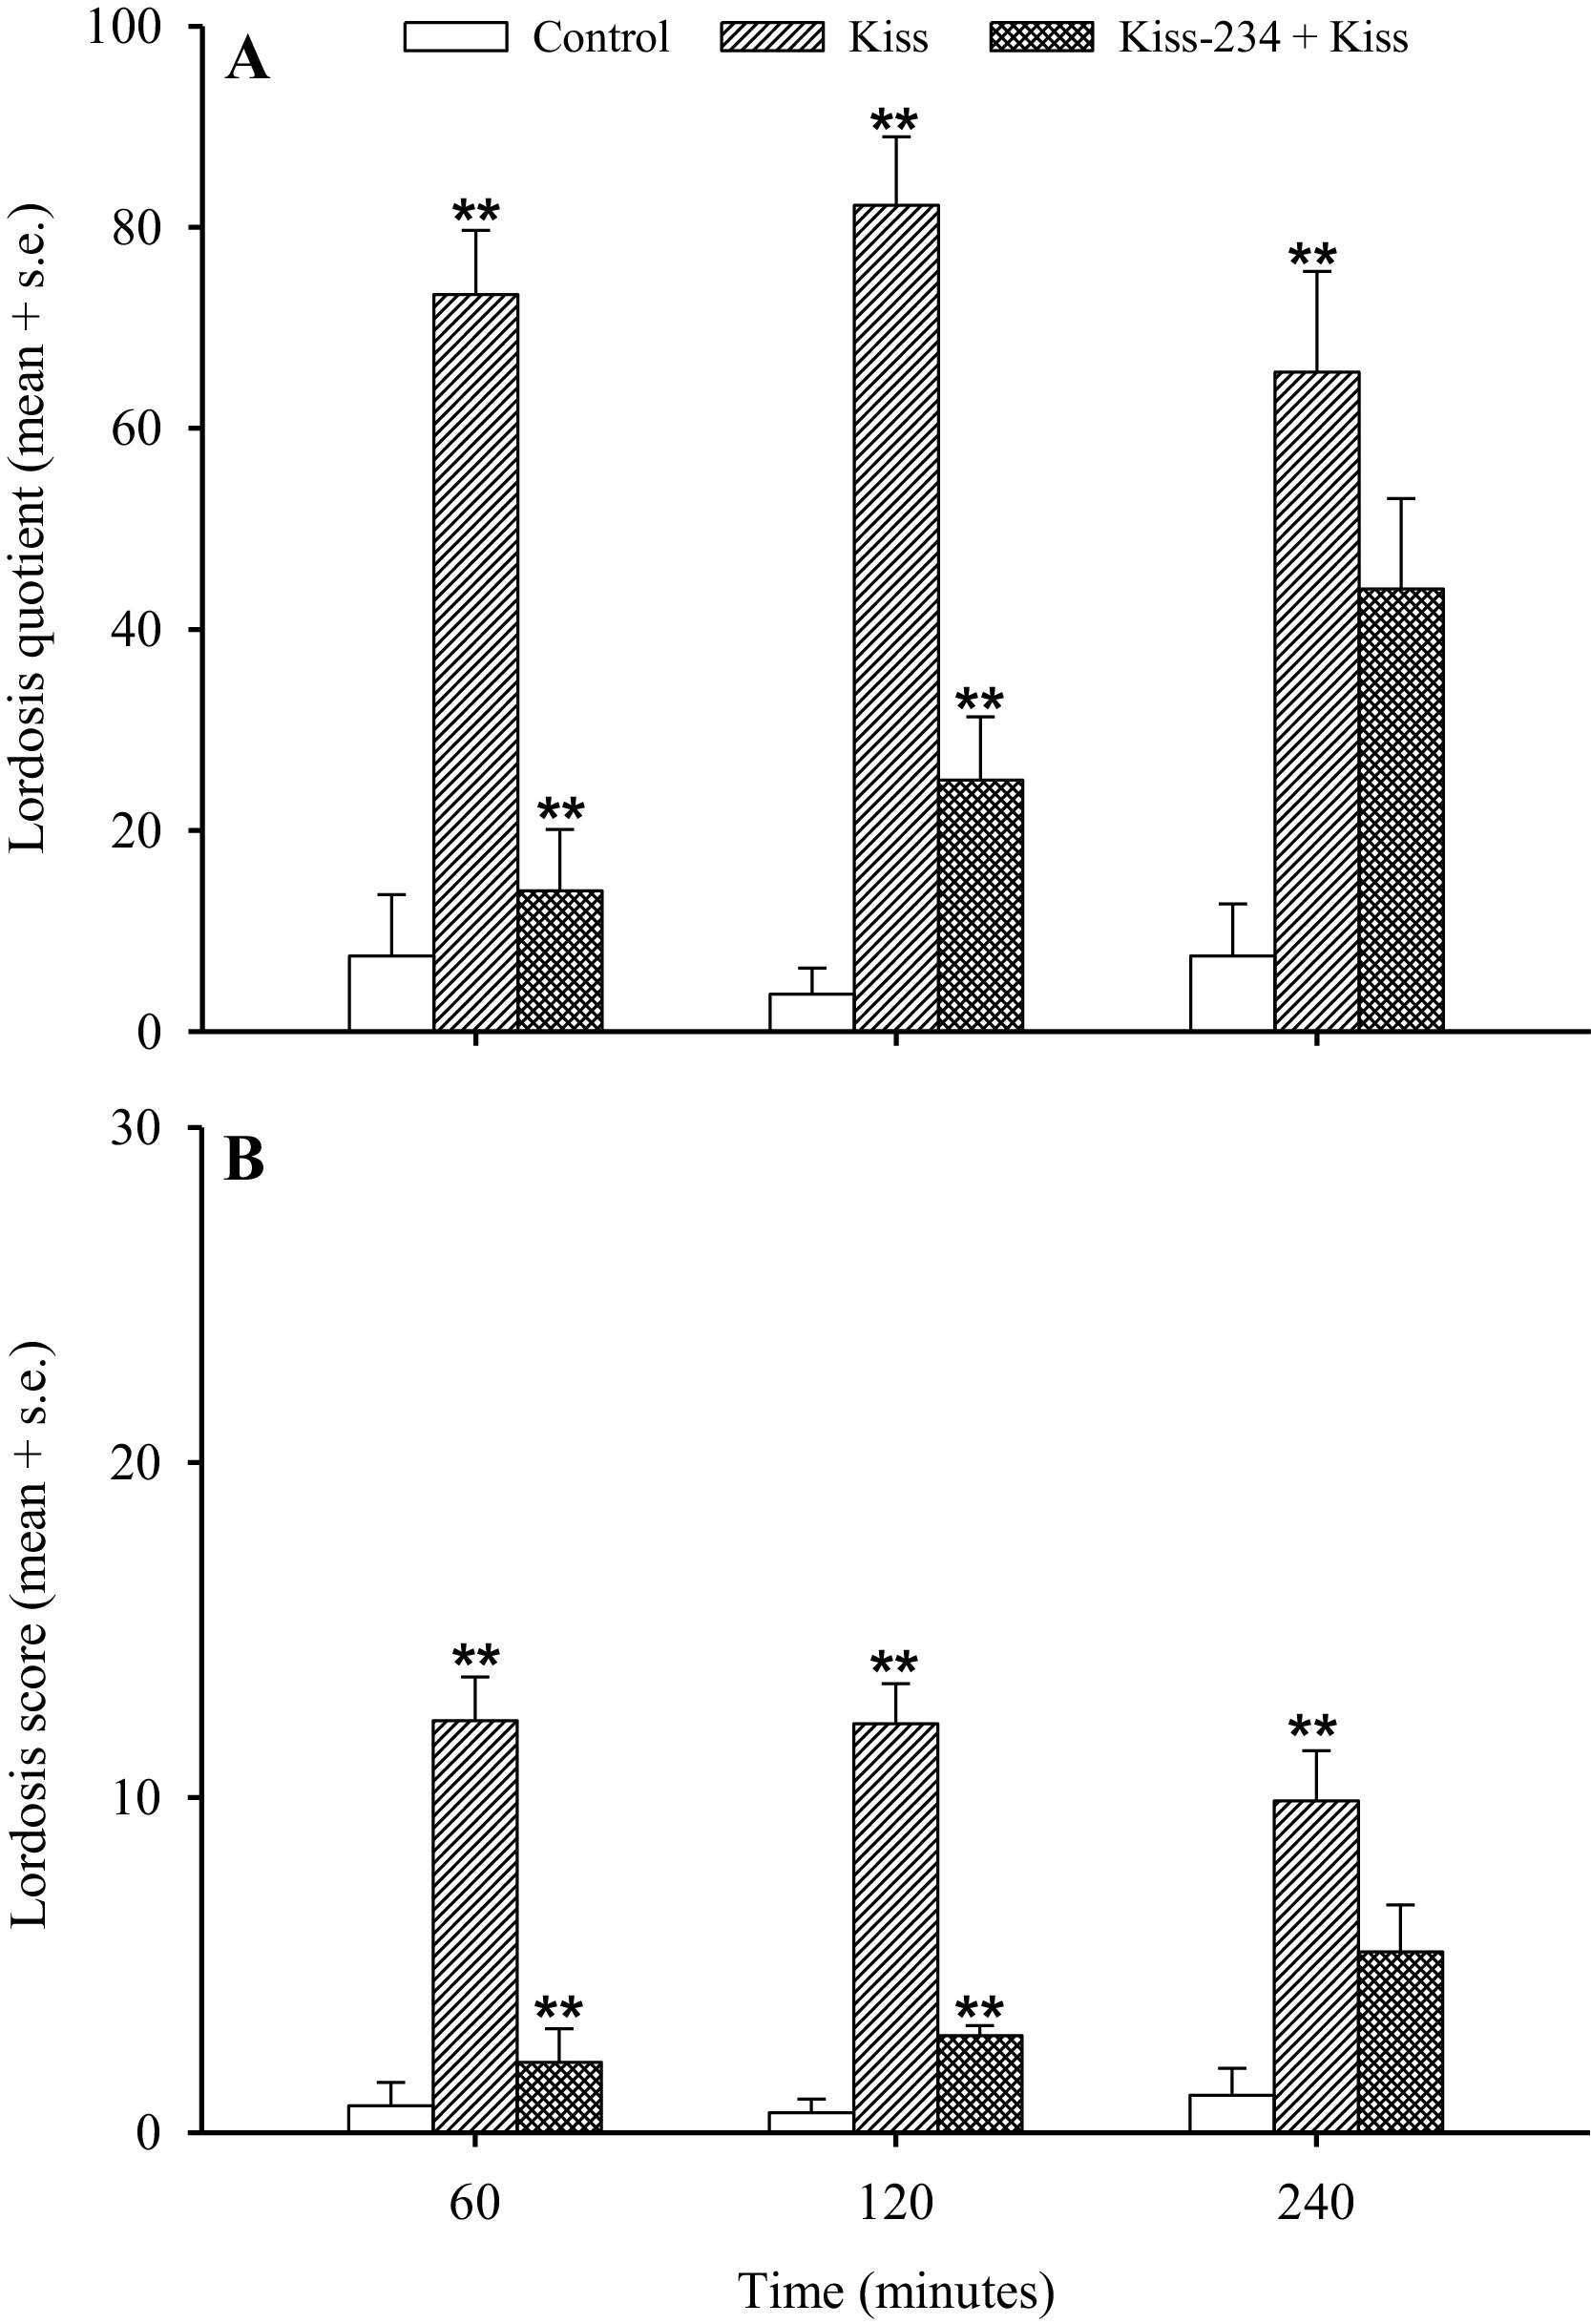
Fig. 3. Lordose-målinger rapporteret efter kisspeptin-eksponering med eller uden KISS1R-antagonisten Kiss-234 hos ovarieektomiserede rotter.[5]
Kildestudiet sammenlignede kisspeptin og kontrolgrupper og evaluerede effekten af Kiss-234 forbehandling på lordosekvotient og lordoserefleksintensitet. Gruppestørrelser, undersøgelsesdoser, tidspunkter og statistiske sammenligninger er rapporteret i den originale publikation.[5]
Suvi T. Ruohonen og kolleger genererede mus med oocyt-selektiv deletion af Gpr54/Kiss1r ved at krydse en Gdf9-Cre linje med en Gpr54 LoxP linje. De resulterende OoGpr54-/− mus gennemgik fænotypiske, histologiske, hormonelle og molekylære analyser på tværs af flere postnatale aldre. Forfatterne rapporterede normal pubertetstart, men progressiv ægløsningssvigt med alderen, inklusive histologiske ændringer og ændrede ovarie-genekspressionsprofiler. Fordi denne undersøgelse brugte receptordeletion i stedet for administration af et kisspeptin-peptid, vedrører dens resultater den biologiske rolle af ovarie KISS1R-signalering og er ikke en direkte KP-10-eksponeringsundersøgelse.[6]
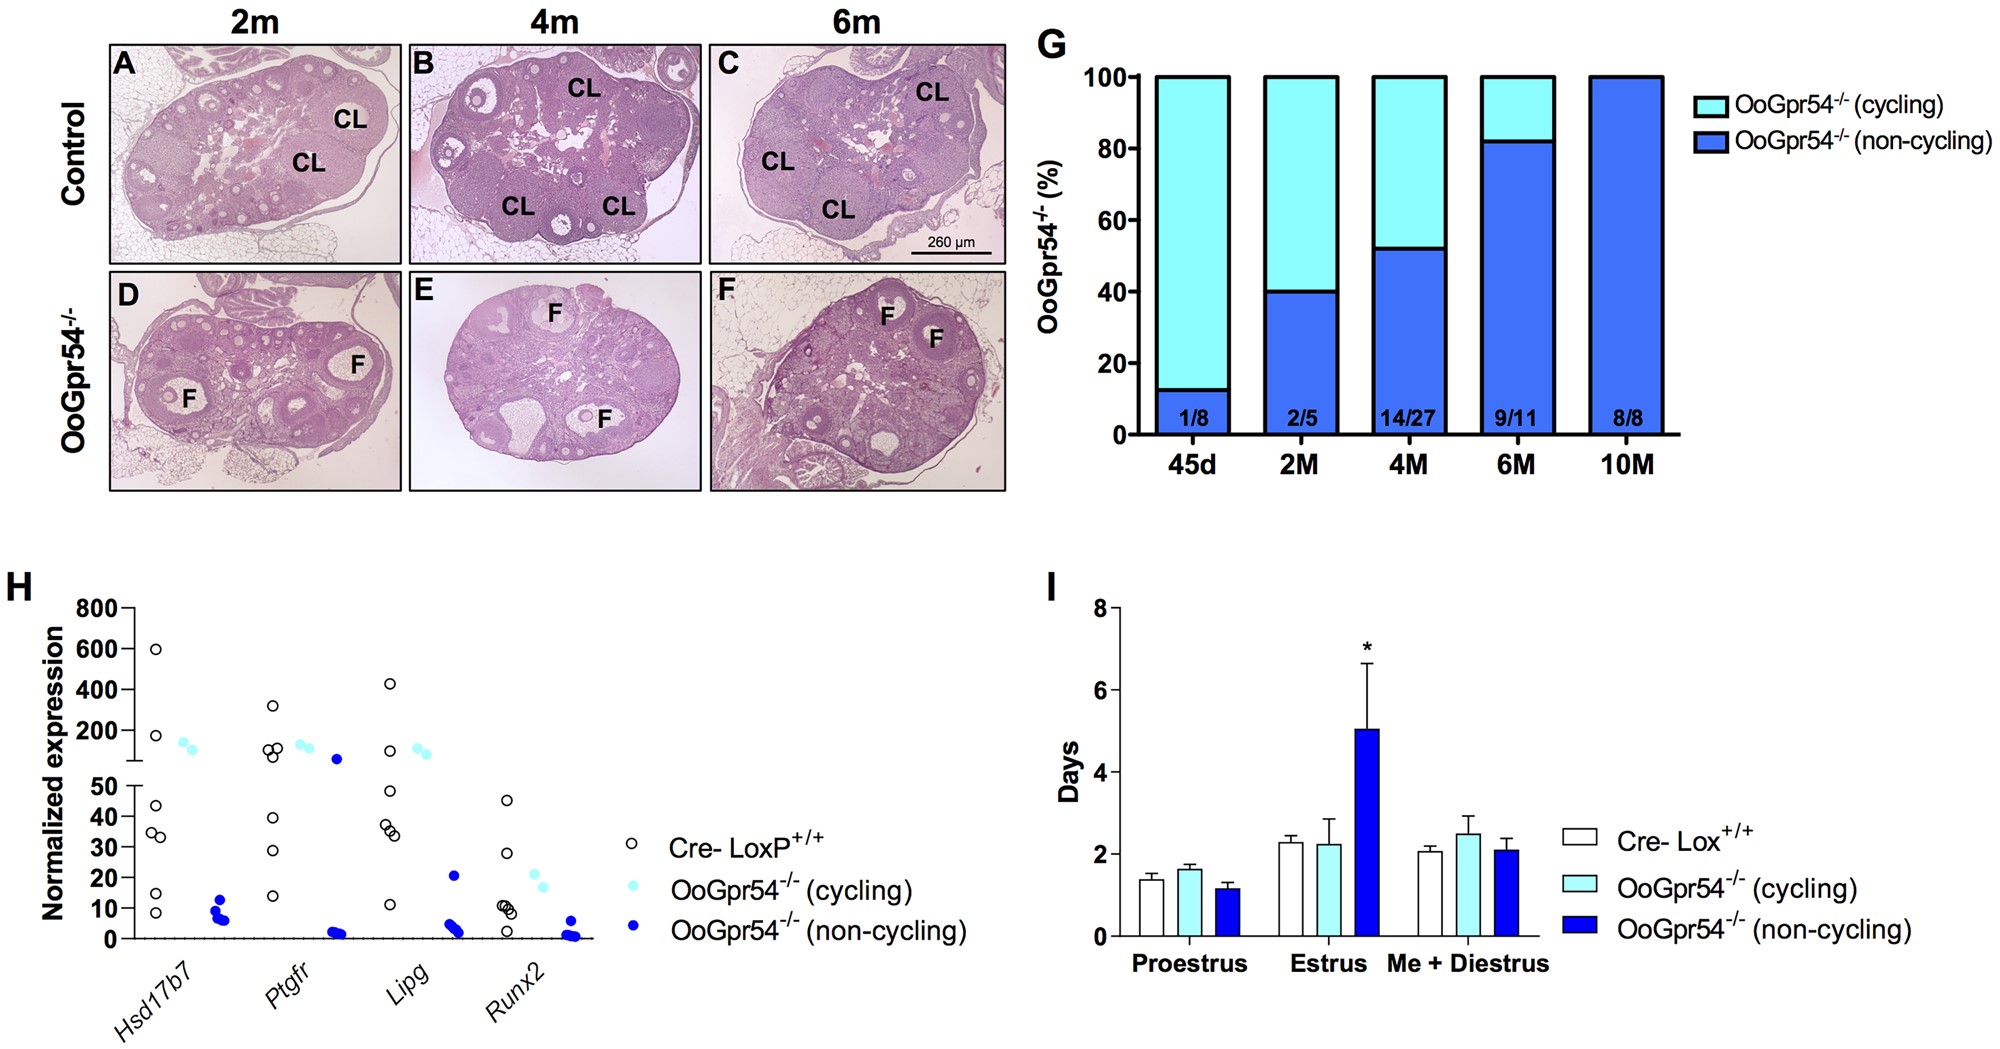
Fig4. Progressive ovulatoriske ændringer rapporteret i mus med oocyt-selektiv Gpr54/Kiss1r deletion.[6]
Paneler (AF) viser repræsentativ ovariehistologi fra kontrol- og OoGpr54−/− mus i de angivne aldre. Panel (G) opsummerer andelen af OoGpr54−/− hunner uden corpora lutea, panel (H) præsenterer udvalgte RNA-sekventeringsfund, og panel (I) viser østruscyklusmålinger. Gruppestørrelser og statistiske metoder er rapporteret i den originale publikation.[6]
Forskningsbegrænsninger
De undersøgelser, der er opsummeret ovenfor, evaluerer ikke alle den samme kisspeptin-molekyleform. KISS1-precursoren kan bearbejdes til flere bioaktive peptider, herunder KP54, KP14, KP13 og KP10, som deler det samme C-terminale decapeptid, men adskiller sig i længde og farmakokinetisk adfærd. Wu-studiet brugte KP54 og TAK448, mens andet citeret arbejde undersøgte endogen kisspeptin-signalering, receptor-knockout-modeller eller kisspeptin-præparater, der ikke var designet som direkte sammenligninger af et kommercielt KP-10-forskningsmateriale.[2,3,4,6,7]
KISS1R er en klasse AG-proteinkoblet receptor og er bedst kendt for Gq/11-signalering, selvom nyere strukturelle og funktionelle arbejde også understøtter kobling til Gi/o under specifikke eksperimentelle forhold.[2] Forskelle i peptidisoform, receptorekspression, art, vævskontekst, eksponeringsvej og eksperimentelt design kan påvirke det observerede respons. Resultater fra muse- og rottemodeller bør derfor forblive bundet til det nøjagtige peptid, receptormodel og eksperimentelle forhold beskrevet i hver publikation.[2,7]
COCER Peptides præsenterer Kisspeptin-10 udelukkende til laboratorieforskning og analytisk brug. Det er ikke beregnet til human eller veterinær brug. Forskningen beskrevet ovenfor opsummerer resultater rapporteret i tredjepartspublikationer og er ikke en erklæring om klinisk effekt, sikkerhed, diagnose, behandling, forebyggelse eller en brugsanvisning.


