
▎気管支原研究
分子の背景
ブロンコーゲンは、非臨床実験室研究で議論されているペプチドです。化学的に言えば、Ala-Asp-Glu-Leu というアミノ酸配列を持つポリペプチド、つまりテトラペプチドです[1].
研究の進捗状況
JR Monaselidze は、示差走査熱量計を使用して、さまざまな濃度のブロンコーゲンの存在下での DNA 融解の熱力学的パラメータを推定しました。この単離された DNA 実験において、著者らはブロンコーゲンとの安定化相互作用を報告しました。研究者らは、子ウシ胸腺とマウス肝臓のDNAの融解温度がrの狭い範囲(DNAに対する気管支原のモル比、0.01~0.055)内で3.1℃上昇することを測定した。 rがさらに増加しても、溶融温度の変化は伴わなかった。複素融解エンタルピー (ΔHmelt) は、r (0.01 ~ 1.0) のこの範囲内で変化しませんでした。胸腺およびマウス肝臓からの DNA の ΔHmelt は、それぞれ 11.4 および 12.7 cal/g でした。研究著者らは、これらの結果を、ブロンコーゲンがアデニン-チミン特異的リガンドでも、グアニン-シトシン特異的リガンドでもないことを示していると解釈した。観察された結合は、試験条件下で強力かつ非特異的であることが特徴でした。著者らは、単離された DNA の両方の鎖 (主に窒素塩基による) への結合についても説明しました[1].
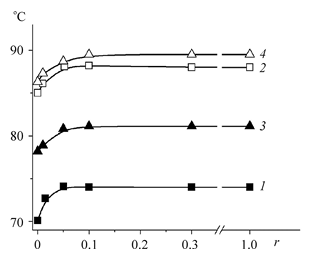
図1. pH 7.02 における DNA 融解温度の r 依存性[1].
主要画分 (1);子ウシ胸腺 DNA のサテライト画分 (2)。溶液中のマウス肝臓 DNA の主要な画分 (細かいピーク): (3) 0.015 M NaCl、0.0015 M クエン酸緩衝液。 (4) 0.15 M NaCl、0.015 M クエン酸緩衝液。
閉塞性肺病理の非臨床ラットモデルにおいて、気管支上皮構造、関門関連マーカー、および炎症測定に対する低分子量ペプチドの影響が次の方法で調査されました。 NAクズボワ。慢性閉塞性肺疾患は、ラットを用いて NO2 に 60 日間断続的に曝露してモデル化されました。このラットモデルでは、1ヶ月間のブロンコーゲン曝露は、気管支上皮および肺組織のリモデリング特徴(杯細胞過形成、扁平上皮化生、リンパ球浸潤および気腫、繊毛細胞の回復)の変化と関連していた。研究者らはまた、局所免疫マーカーである分泌型 IgA、気管支肺胞細胞組成および炎症誘発性サイトカイン プロファイルの変化も報告し、このラット モデルにおける好中球性炎症の測定値の低下と一致していました[3]。.
V.Kh. Khavinson は、ヒト胎児気管支上皮細胞培養の 1、7、14 継代における Ki67、Mcl-1、p53、CD79、および NOS-3 のタンパク質レベルを測定しました。 NKX2-1、SCGB1A1、SCGB3A2、FOXA1、FOXA2、MUC4、MUC5AC、およびSFTPA1の遺伝子発現をリアルタイムポリメラーゼ連鎖反応によって測定しました。分光測光法、粘度測定、円二色性を使用して、ADEL-DNA 相互作用を in vitro で研究しました。これらの細胞培養実験において、著者らは、ADELが、さまざまな継代におけるヒト気管支上皮細胞培養物におけるKi67、Mcl-1、p53、CD79、およびNOS-3タンパク質のレベルの変化と関連していることを報告した。 Ki67 および Mcl-1 関連増殖マーカーの報告された最大の変化は、継代後の気管支上皮細胞培養物で発生しました。この in vitro モデルでは、ADEL は気管支上皮分化に関与する遺伝子 (NKX2-1、SCGB1A1、SCGB3A2、FOXA1、FOXA2) の発現を変化させることが報告されています。研究者らはまた、肺の発達に関連して議論されている遺伝子、MUC4、MUC5AC、およびSFTPA1の発現の変化も観察した。これらの実験方法は、主溝(N7 グアニン)の領域が関与する ADEL-DNA 相互作用の証拠として解釈されました[4].
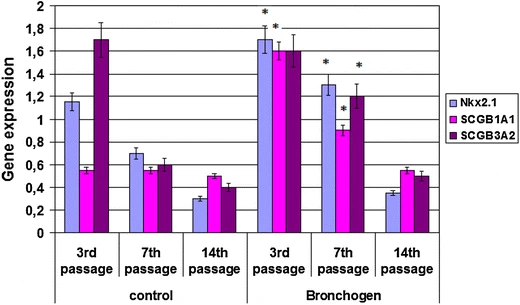
図2.気管支上皮の遺伝子発現に対するペプチド ADEL の影響[4] .
*p < 0.05 - 対照との比較
ON Titova は、60 日間の断続的な二酸化窒素曝露によって誘発された慢性閉塞性肺疾患 (COPD) のラットモデルにおいて、気管支上皮の構造的および機能的状態と肺の炎症活動に対するテトラペプチド気管支原の影響を調査しました。気管支肺胞洗浄液 (BALF) の細胞組成とサイトカイン酵素プロファイル、および BALF 中の分泌型免疫グロブリン A と界面活性剤タンパク質 B のレベルを測定しました。実験観察期間中、著者らは、治療を受けたラットにおいて好中球性炎症の測定値が低下し、気管支肺胞の細胞組成、サイトカイン、酵素の変化が減少したと報告した。このラットモデルでは、研究者らは、以前に破壊された気管支上皮構造の変化と、分泌型免疫グロブリン A (局所免疫マーカー) および界面活性タンパク質 B (肺胞の表面張力に関連する) の増加も報告しました[5]。.
LI Fedoreyeva による研究では、外因性の短い生物活性ペプチドであるエピタロン (Ala-Glu-Asp-Gly)、気管支原 (Ala-Glu-Asp-Leu)、およびビロン (Lys-Glu) が、10⁻⁷ ~ 10⁻⁹ M の濃度で、タバコ (Nicotiana tabacum) の成長、発育、分化に重大な影響を与えることが判明しました。カルス文化。これらの植物培養物において、研究者らはエピタロンとブロンコーゲンへの曝露後のカルスの成長と葉の形成の増加を観察しました。この研究では、組織形成と細胞分化に関与する遺伝子を含む、ペプチド曝露後のタバコ細胞における遺伝子発現の変化が報告されました。著者らはまた、既知の内因性調節ペプチドをコードするCLEファミリー遺伝子、ならびに対応するDNA結合タンパク質(トポイソメラーゼやヌクレアーゼなど)をコードするKNOX1遺伝子(転写因子遺伝子)およびGRF遺伝子(成長調節因子遺伝子)の発現差も報告した[6]。.
H1 ヒストンおよび非ヒストンタンパク質が枯渇した白色ラット肝臓クロマチンの熱安定性に対する Ala-Asp-Glu-Leu ペプチドの影響が研究されています。 J・モナセリゼ著者らは、ヌクレオソームが相互作用しない10 nmのクロマチンフィラメントでは、ペプチドの露出がヌクレオソームのコア構造の変化と、ヌクレオソーム間リンカーDNAの融解温度範囲で融解するコアDNAの約15%の放出と関連していると報告した。著者らは、これらのクロマチンの変化により、実験系における転写のための DNA のアクセス可能性が増加する可能性があると示唆しました[2].
研究の限界
ブロンコーゲンの DNA への結合が配列特異的であるのか、構造特異的であるのかは依然として不明です。言い換えれば、ブロンコーゲンが DNA の主溝または副溝にランダムに結合するのか、それとも特定のプロモーターまたはエンハンサー領域を特異的に認識するのかはまだわかっていません。この非特異的結合の特徴により、観察された遺伝子発現の変化 (NKX2-1 や SCGB1A1 の上方制御など) を特定の DNA ペプチド相互作用に直接帰することが困難になります[4] 。 これらの結果は、単離された DNA、細胞培養物、植物培養物、およびラット モデルに由来しています。人体における安全性や有効性は確立されていません。植物培養に関する出版物 [6] には、上記の Ala-Asp-Glu-Leu 配列とは残基の順序が異なる Ala-Glu-Asp-Leu が記載されています。これらのシーケンスの結果は互換性があると想定すべきではありません。
COCER ペプチドは、非臨床実験室研究のみを目的としてブロンコーゲンを提供します。これは、いかなる経路によるヒトまたは獣医学での使用、投与、または消費を目的としたものではなく、診断、治療、予防、またはその他の臨床使用を目的としたものでもありません。上記の概要は、引用された非臨床研究およびインビトロ研究のみから得られた結果を報告しています。臨床上の安全性、有効性、または FDA の承認は確立されておらず、使用説明書も提供されていません。


