

|
1 sett (10 hetteglass)
| Mengde: | |
|---|---|
▎ Bronchogenforskning
Molekylær bakgrunn
Bronchogen er et peptid diskutert i ikke-klinisk laboratorieforskning; kjemisk sett er det et polypeptid med aminosyresekvensen Ala-Asp-Glu-Leu – det vil si et tetrapeptid [1].
Forskningsfremgang
JR Monaselidze estimerte de termodynamiske parameterne for DNA-smelting i nærvær av Bronchogen ved forskjellige konsentrasjoner ved å bruke et differensialskanningskalorimeter. I dette isolerte DNA-eksperimentet rapporterte forfatterne en stabiliserende interaksjon med Bronchogen. Etterforskerne målte en økning i smeltetemperaturen til DNA fra kalvethymus og muselever med 3,1 °C innenfor et smalt område på r (molart forhold mellom bronkogen og DNA, 0,01–0,055). En ytterligere økning i r ble ikke ledsaget av endringer i smeltetemperaturen. Den komplekse smelteentalpien (ΔHmelt) forble uendret innenfor dette området r (0,01–1,0). ΔH-smelte for DNA fra thymus og muselever var henholdsvis 11,4 og 12,7 cal/g. Studieforfatterne tolket disse resultatene som å indikere at Bronchogen ikke er en adenin-tymin-spesifikk eller guanin-cytosin-spesifikk ligand. Den observerte bindingen ble karakterisert som sterk og uspesifikk under de testede forholdene. Forfatterne beskrev også binding til begge trådene av isolert DNA (primært med nitrogenbaser) [1].
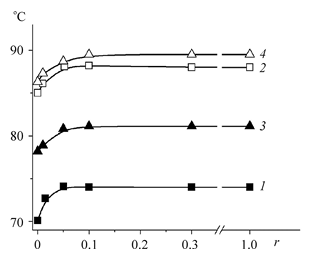
Fig1. Avhengighet av DNA-smeltetemperatur på r ved pH 7,02 [1] .
Hovedfraksjon (1); satellittfraksjon av kalvethymus-DNA (2). Hovedfraksjon (fin topp) av muselever-DNA i løsninger: (3) 0,015 M NaCl, 0,0015 M sitratbuffer; (4) 0,15 M NaCl, 0,015 M sitratbuffer.
I en ikke-klinisk rottemodell av obstruktiv lungepatologi ble effekten av lavmolekylære peptider på bronkial epitelstruktur, barriererelaterte markører og inflammatoriske målinger undersøkt av NA Kuzubova . Kronisk obstruktiv lungesykdom ble modellert hos rotter ved 60-dagers intermitterende eksponering for NO2. I denne rottemodellen var en måneds bronkogeneksponering assosiert med endringer i bronkiale epitel- og lungevevsremodelleringsfunksjoner (begercellehyperplasi, plateepitelmetaplasi, lymfocytisk infiltrasjon og emfysem og restaurering av cilierte celler). Etterforskerne rapporterte også endringer i sekretorisk IgA, en lokal immunitetsmarkør, og bronkoalveolære cellesammensetning og proinflammatoriske cytokinprofiler i samsvar med lavere målt nøytrofil betennelse i denne rottemodellen [3].
V. Kh. Khavinson målte proteinnivåene til Ki67, Mcl-1, p53, CD79 og NOS-3 i 1., 7. og 14. passasje av humane embryonale bronkoepitelcellekulturer. Genekspresjon av NKX2-1, SCGB1A1, SCGB3A2, FOXA1, FOXA2, MUC4, MUC5AC og SFTPA1 ble målt ved sanntids polymerasekjedereaksjon. Ved å bruke spektrofotometri, viskometri og sirkulær dikroisme studerte vi ADEL-DNA-interaksjonen in vitro. I disse cellekultureksperimentene rapporterte forfatterne at ADEL var assosiert med endringer i nivåene av Ki67, Mcl-1, p53, CD79 og NOS-3 proteiner i humane bronkiale epitelcellekulturer ved forskjellige passasjer. De største rapporterte endringene i Ki67- og Mcl-1-assosierte proliferasjonsmarkører skjedde i bronkiale epitelcellekulturer med senere passasje. I denne in vitro-modellen ble ADEL rapportert å endre uttrykket av gener involvert i bronkial epiteldifferensiering: NKX2-1, SCGB1A1, SCGB3A2, FOXA1 og FOXA2. Etterforskerne observerte også endret uttrykk for gener diskutert i forhold til lungeutvikling: MUC4, MUC5AC og SFTPA1. Disse laboratoriemetodene ble tolket som bevis på ADEL-DNA-interaksjon som involverer en region i hovedsporet (N7 guanin) [4].
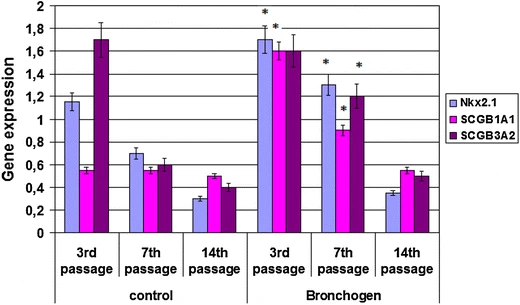
Fig. 2. Påvirkningen av peptid ADEL på genuttrykket av bronkial epitel [4] .
*p < 0,05 - sammenlignet med kontroll
ON Titova undersøkte effekten av tetrapeptidbronkogen på den strukturelle og funksjonelle statusen til bronkial epitel og lungeinflammatorisk aktivitet i en rottemodell av kronisk obstruktiv lungesykdom (KOLS) indusert av 60 dager med intermitterende nitrogendioksideksponering. Cellesammensetningen og cytokin-enzymprofilen til bronkoalveolær lavagevæske (BALF), samt nivåene av sekretorisk immunoglobulin A og overflateaktivt protein B i BALF, ble bestemt. I løpet av den eksperimentelle observasjonsperioden rapporterte forfatterne lavere målt nøytrofil betennelse og endringer i bronkoalveolær cellulær sammensetning, cytokiner og enzymer hos de behandlede rottene. I denne rottemodellen beskrev forskerne også endringer i tidligere forstyrret bronkial epitelstruktur og økninger i sekretorisk immunglobulin A (en lokal immunitetsmarkør) og overflateaktivt protein B (relatert til alveolær overflatespenning) [5].
Forskning av LI Fedoreyeva fant at de eksogene korte bioaktive peptidene epitalon (Ala-Glu-Asp-Gly), bronkogen (Ala-Glu-Asp-Leu) og vilon (Lys-Glu), i konsentrasjoner på 10⁻⁷–10⁻⁹ M, påvirket signifikant vekst, utvikling, og forskjellig vekst, utvikling, og tobaccous. kulturer. I disse plantekulturene observerte forskerne økt callusvekst og bladdannelse etter eksponering for epitalon og bronkogen. Studien rapporterte endringer i genuttrykk i tobakksceller etter peptideksponering, inkludert gener som er ansvarlige for vevsdannelse og celledifferensiering. Forfatterne rapporterte også differensiell ekspresjon av gener i CLE-familien – som koder for kjente endogene regulatoriske peptider – så vel som KNOX1-genet (et transkripsjonsfaktorgen) og GRF-genet (et vekstregulerende faktorgen), som koder for tilsvarende DNA-bindende proteiner (som topoisomeraser og nukleaser) [6].
Påvirkning av Ala-Asp-Glu-Leu-peptid på termostabilitet av hvit rotteleverkromatin, der H1-histon- og ikke-histonproteiner er utarmet, er studert av J Monaselidze . Forfatterne rapporterte at i 10 nm kromatinfilamenter, der nukleosomer ikke interagerer, var peptideksponering assosiert med endret nukleosomal kjernestruktur og frigjøring av omtrent 15 % av kjerne-DNA som smelter i smeltetemperaturområdet til internukleosomalt linker-DNA. Forfatterne antydet at disse kromatinendringene kan øke DNA-tilgjengeligheten for transkripsjon i det eksperimentelle systemet [2].
Forskningsbegrensninger
Det er fortsatt uklart om bindingen av Bronchogen til DNA er sekvensspesifikk eller strukturspesifikk; med andre ord, det er foreløpig ikke kjent om Bronchogen binder seg tilfeldig til hoved- eller mindresporet i DNA eller om det spesifikt gjenkjenner visse promoter- eller enhancerregioner. Denne egenskapen til uspesifikk binding gjør det vanskelig å direkte tilskrive de observerte endringene i genuttrykk (som oppregulering av NKX2-1 og SCGB1A1) til spesifikke DNA-peptidinteraksjoner [4] . Disse resultatene stammer fra isolert DNA, cellekulturer, plantekulturer og rottemodeller; de fastslår ikke sikkerhet eller effekt hos mennesker. Plantekulturpublikasjonen [6] beskriver Ala-Glu-Asp-Leu, som er forskjellig i restrekkefølge fra Ala-Asp-Glu-Leu-sekvensen angitt ovenfor; resultater for disse sekvensene bør ikke antas utskiftbare.
COCER Peptides presenterer Bronchogen utelukkende for ikke-klinisk laboratorieforskning. Det er ikke til human eller veterinær bruk, administrering eller konsum på noen måte, og er ikke beregnet på diagnose, behandling, forebygging eller annen klinisk bruk. Sammendraget ovenfor rapporterer kun funn fra siterte ikke-kliniske og in vitro-studier; den etablerer ikke klinisk sikkerhet, effektivitet eller FDA-godkjenning og gir ingen bruksanvisning.


