

|
1 súpravy (10 liekoviek)
| množstvo: | |
|---|---|
▎ kisspeptínu Štruktúra
Zdroj: PubChem |
Sekvencia: GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF vzorec 258CHNO401Molekulový 79: 78 Molekulová hmotnosť: 5857 g/mol PubChem CID: 71306396 Synonymá: Proteín KISS-1;Kisspeptíny |
▎ kisspeptínu Výskum
Molekulárne pozadie
Kisspeptín-10 (KP-10) je 10-aminokyselinový C-koncový fragment prekurzora kisspeptínu odvodeného od KISS1. Jeho aminokyselinová sekvencia je Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2) a viaže sa na receptor KISS1R spojený s G proteínom. PubChem uvádza ľudský kisspeptín-10 pod CID 25240297 s molekulovým vzorcom C63H83N17O14 a molekulovou hmotnosťou približne 1302,4 g/mol.[1,8]
Výskumný pokrok
Zhangsong Wu a kolegovia určili kryo-EM štruktúry komplexov KISS1R-Gq a KISS1R-Gi naviazaných na syntetického agonistu TAK448 spolu s komplexom KISS1R-Gq naviazaným na endogénny KP54. Funkčné testy v tej istej štúdii ukázali, že KISS1R sa môže pripojiť k Gi / o dráhe okrem zavedenej Gq / 11 dráhy. Autori uviedli štrukturálne rozdiely v receptorových extracelulárnych a intracelulárnych slučkách a na rozhraní Ga-podjednotky, ktoré môžu prispieť k selektivite spojenia G-proteínu. Táto štrukturálna štúdia použila ako viazané ligandy skôr KP54 a TAK448 než KP-10.[2]
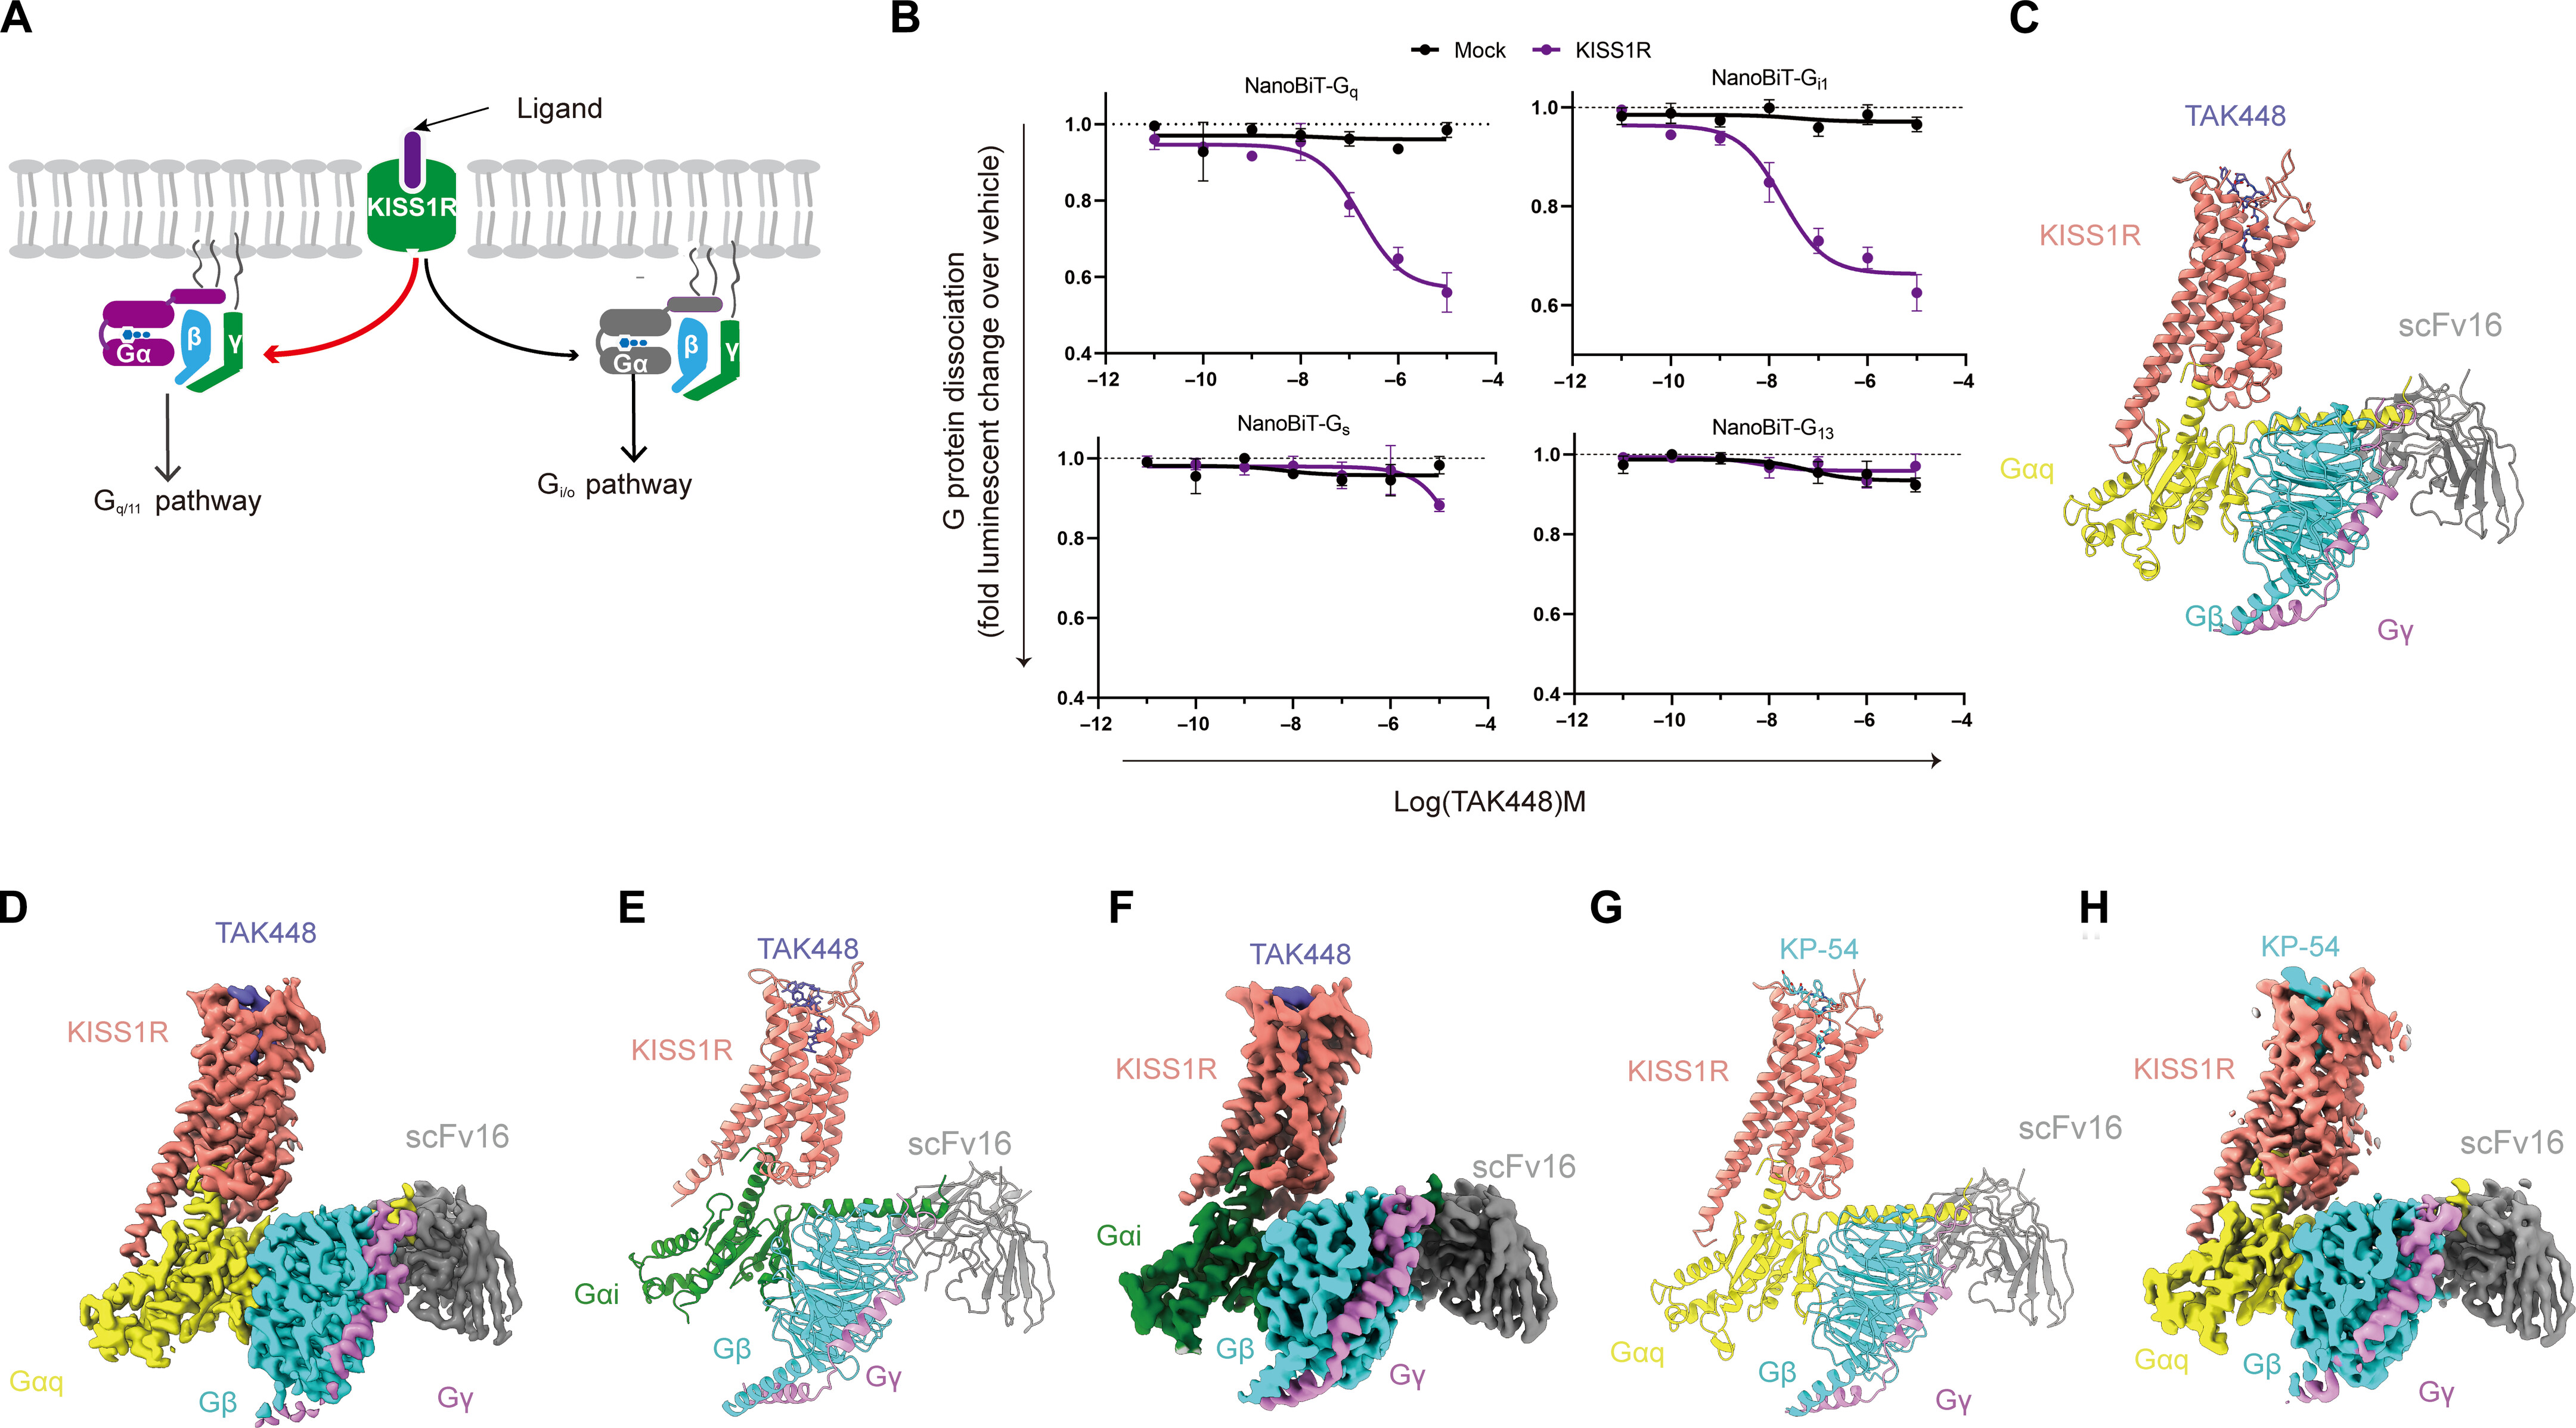
Obr. Kryo-EM štruktúry proteínových komplexov KISS1R-G uvádzané s TAK448 a KP54 v citovanej štúdii.[2]
(A) Schematické znázornenie spojenia G-proteínu KISS1R skúmané v zdrojovej štúdii. (B) NanoBiT disociačné testy G-proteínu pre uvedených členov G-proteínu po expozícii TAK448. (CH) Cryo-EM modely a mapy komplexov TAK448-KISS1R-Gq, TAK448-KISS1R-Gi a KP54-KISS1R-Gq. Experimentálne podmienky a štatistické podrobnosti sú uvedené v pôvodnej publikácii.[2]
Jenny Clarkson a Allan Herbison študovali postnatálny vývoj populácií neurónov kisspeptínu a ich projekcie na neuróny GnRH u myší. Použitím antiséra proti myšiemu kisspeptínu-10 identifikovali kisspeptín-imunoreaktívne populácie v anteroventrálnej periventrikulárnej/preoptickej periventrikulárnej oblasti, dorzomediálnom hypotalame a oblúkovom jadre. Autori zaznamenali výrazný rozdiel medzi ženami a dominantnými ženami v počte AVPV/PeN kisspeptínových neurónov a pozorovali tesné apozície medzi vláknami kisspeptínu a bunkami neurónových buniek GnRH vznikajúcimi počas postnatálneho vývoja. Táto práca charakterizovala endogénnu expresiu a vývoj neurónov skôr než účinky externe dodávaného materiálu KP-10.[3]
Alexander S. Kauffman a kolegovia použili dospelé myši divokého typu (WT) a GPR54/KISS1R knockout (KO) myši na preskúmanie úlohy signalizácie kisspeptínového receptora v sexuálne dimorfnom správaní a neurálnom vývoji. Muži a ženy GPR54 KO nahradení hormónmi si zachovali kopulačné správanie typické pre pohlavie, zatiaľ čo rozdiely boli pozorované v preferencii čuchového partnera a v niekoľkých sexuálne dimorfných nervových črtách. Autori dospeli k záveru, že signalizácia GPR54 nebola potrebná pre kopulačné správanie dospelých v podmienkach nahradenia hormónov, ale podieľala sa na vývoji vybraných sexuálne dimorfných znakov.[4]
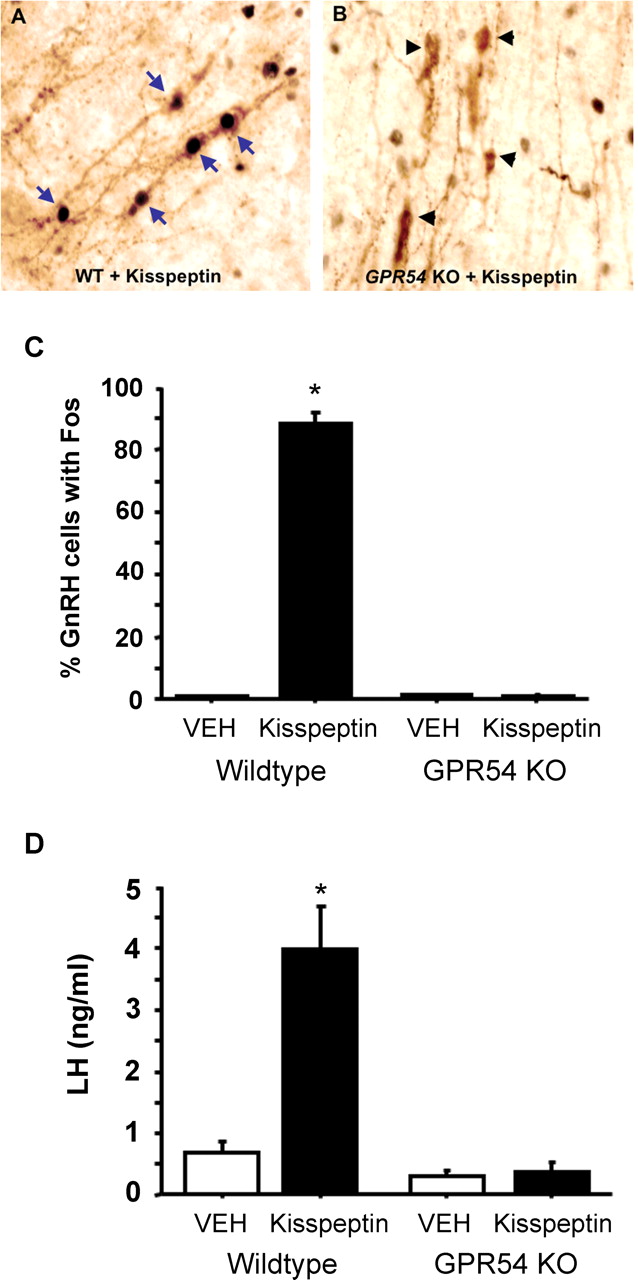
Obr. Imunoreaktivita GnRH-neurónu Fos a merania plazmatického LH hlásené po intracerebroventrikulárnej expozícii kisspeptínu u samcov myší WT a GPR54 KO.[4]
*p < 0,05 oproti skupine WT liečenej vehikulom, ako sa uvádza v pôvodnej štúdii.[4]
Oscar González-Flores a kolegovia skúmali intracerebroventrikulárnu expozíciu kisspeptínu u ovariektomizovaných potkanov primovaných estradiolbenzoátom. Autori merali kvocient lordózy a intenzitu reflexu lordózy a potom použili antagonistu KISS1R Kiss-234, antagonistu progesterónového receptora RU486 a antagonistu receptora GnRH-1 na vyšetrenie zapojenia receptora. Expozícia kisspeptínu bola spojená s vyššími meraniami lordózy na modeli potkanov, zatiaľ čo predliečba antagonistom znížila odpoveď vo vybraných časových bodoch. Zistenia podporili zapojenie signalizácie KISS1R, progesterónového receptora a GnRH receptora v podmienkach štúdie.[5]
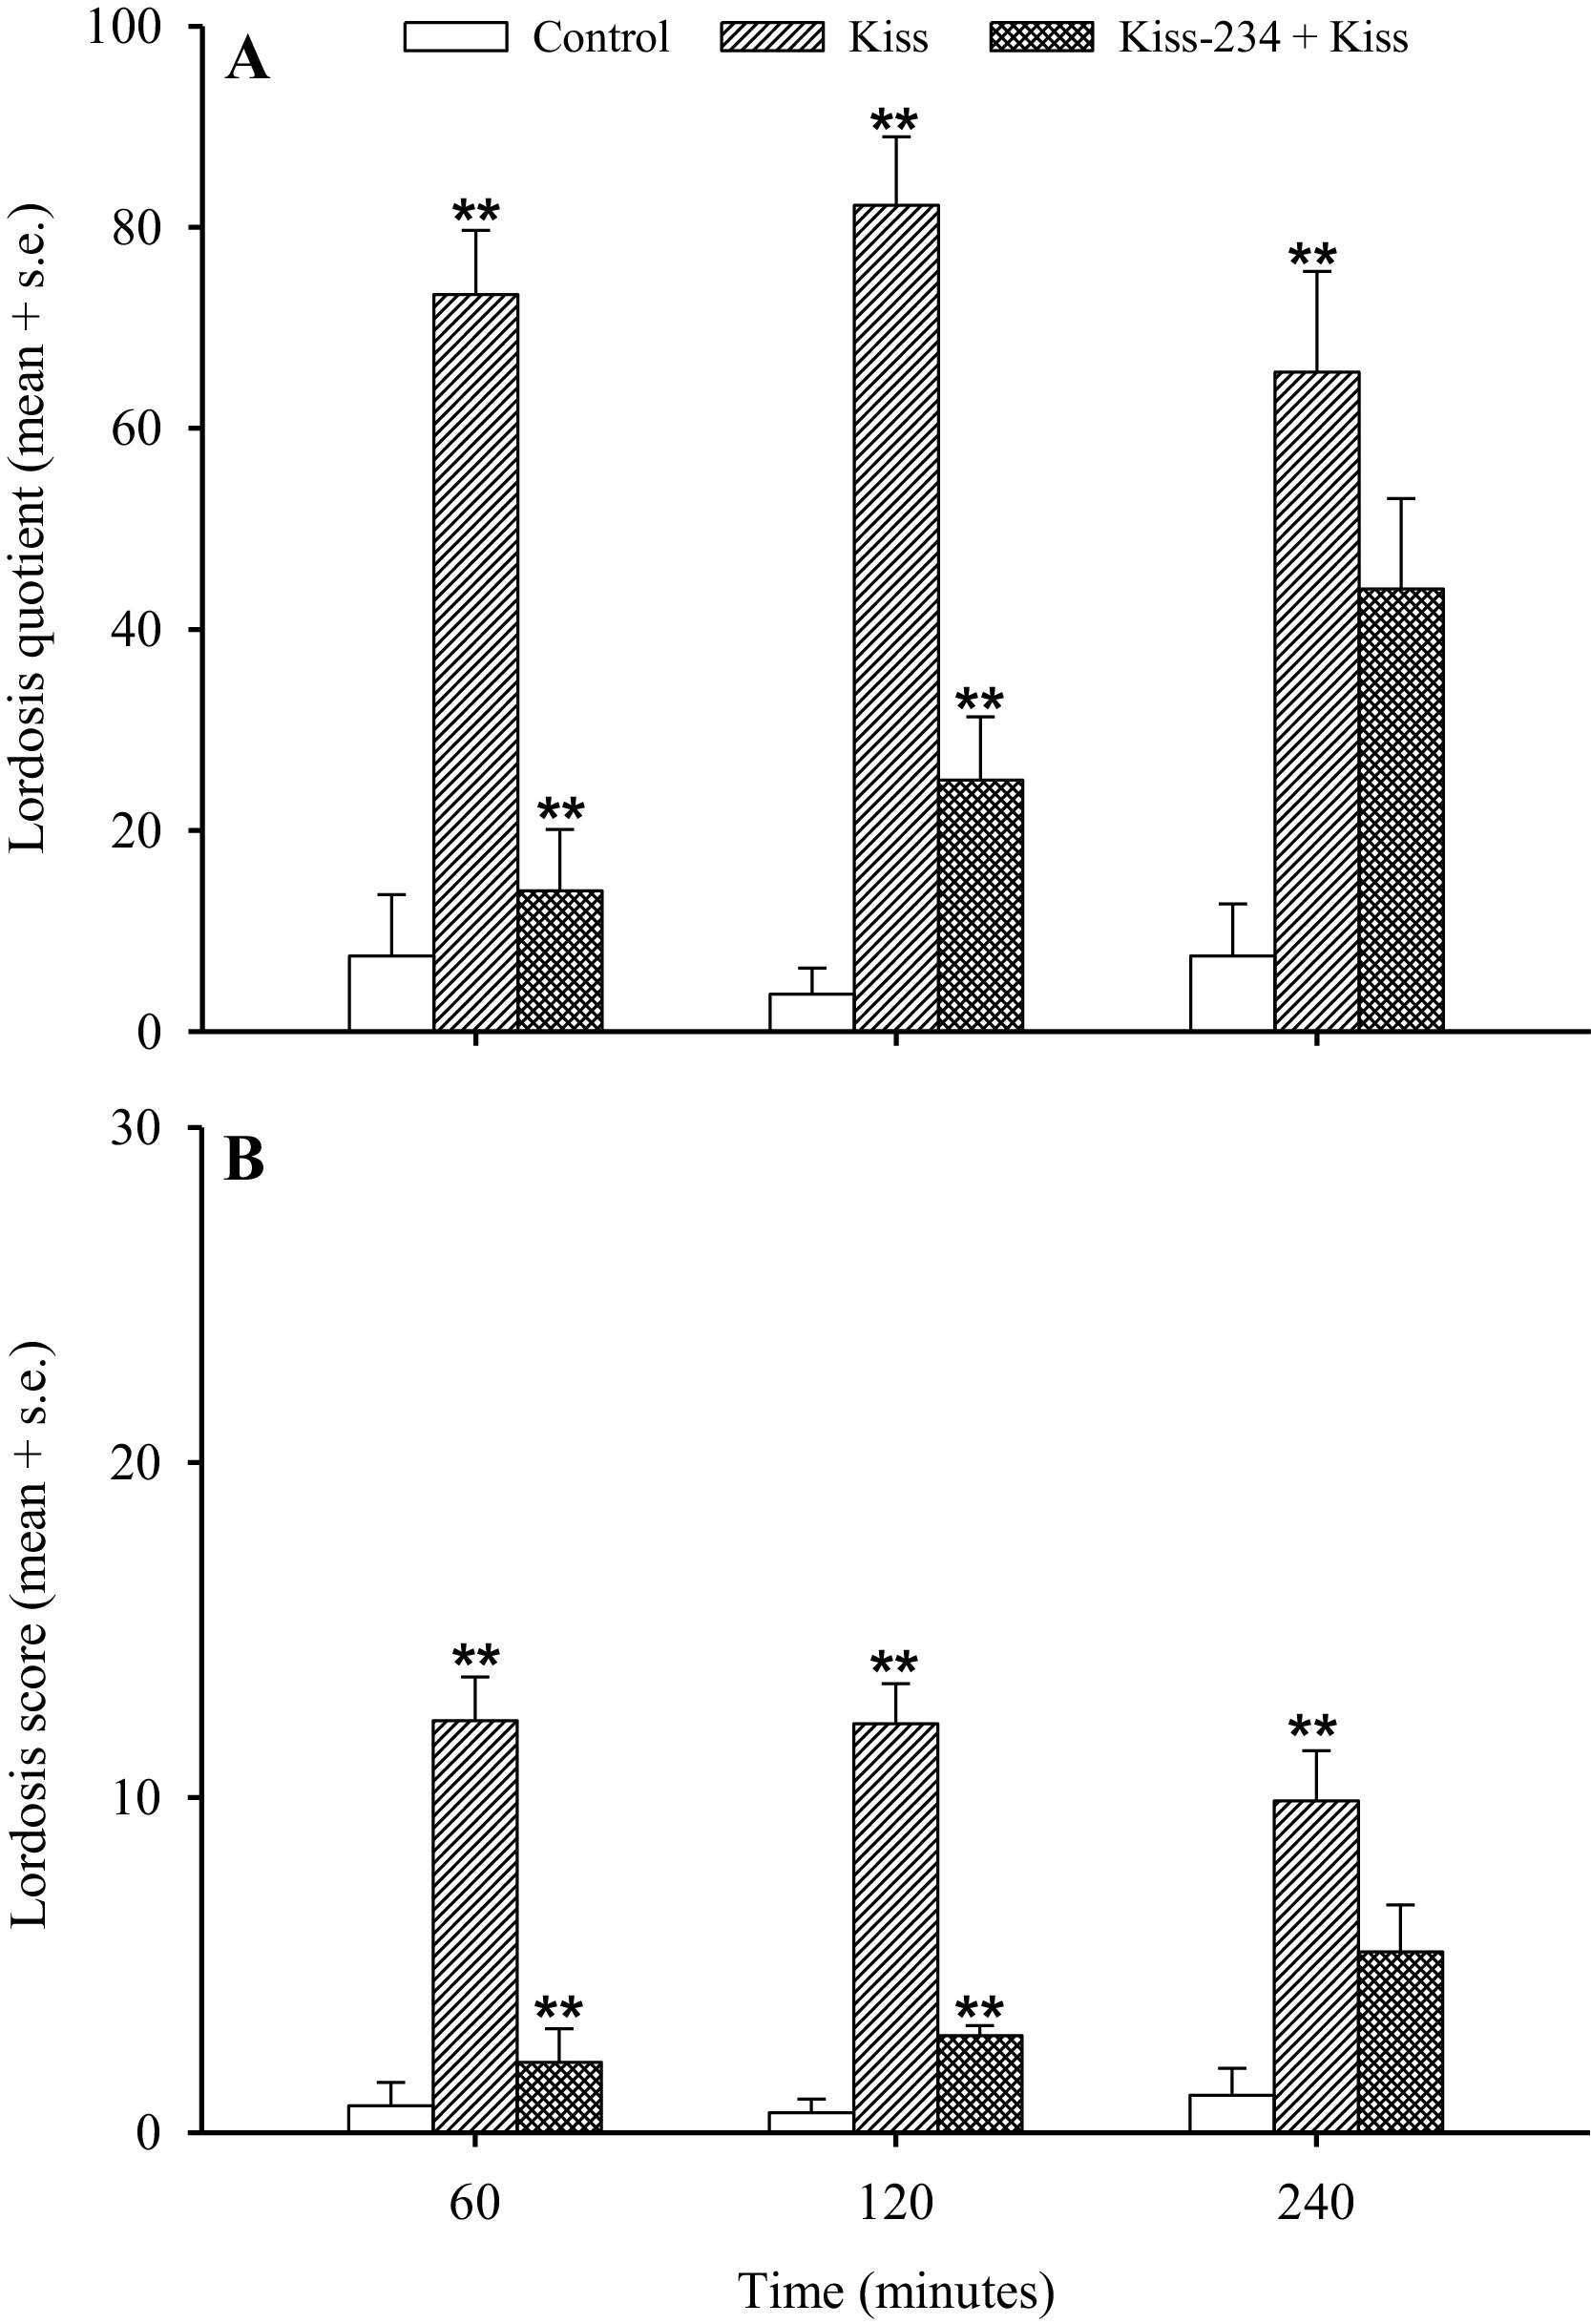
Obr. Merania lordózy hlásené po expozícii kisspeptínu s antagonistom KISS1R Kiss-234 alebo bez neho u potkanov po ovariektómii.[5]
Zdrojová štúdia porovnávala kisspeptín a kontrolné skupiny a hodnotila účinok predliečenia Kiss-234 na lordózny kvocient a intenzitu lordózneho reflexu. Veľkosti skupín, študijné dávky, časové body a štatistické porovnania sú uvedené v pôvodnej publikácii.[5]
Suvi T. Ruohonen a kolegovia vytvorili myši s oocytovo selektívnou deléciou Gpr54/Kiss1r krížením línie Gdf9-Cre s líniou Gpr54 LoxP. Výsledné myši OoGpr54-/- podstúpili fenotypové, histologické, hormonálne a molekulárne analýzy v niekoľkých postnatálnych vekoch. Autori uviedli normálny nástup puberty, ale progresívne ovulačné zlyhanie s vekom, vrátane histologických zmien a zmenených profilov expresie ovariálnych génov. Pretože táto štúdia využívala skôr deléciu receptora ako podávanie kisspeptínového peptidu, jej zistenia sa týkajú biologickej úlohy ovariálnej signalizácie KISS1R a nie sú priamou štúdiou expozície KP-10.[6]
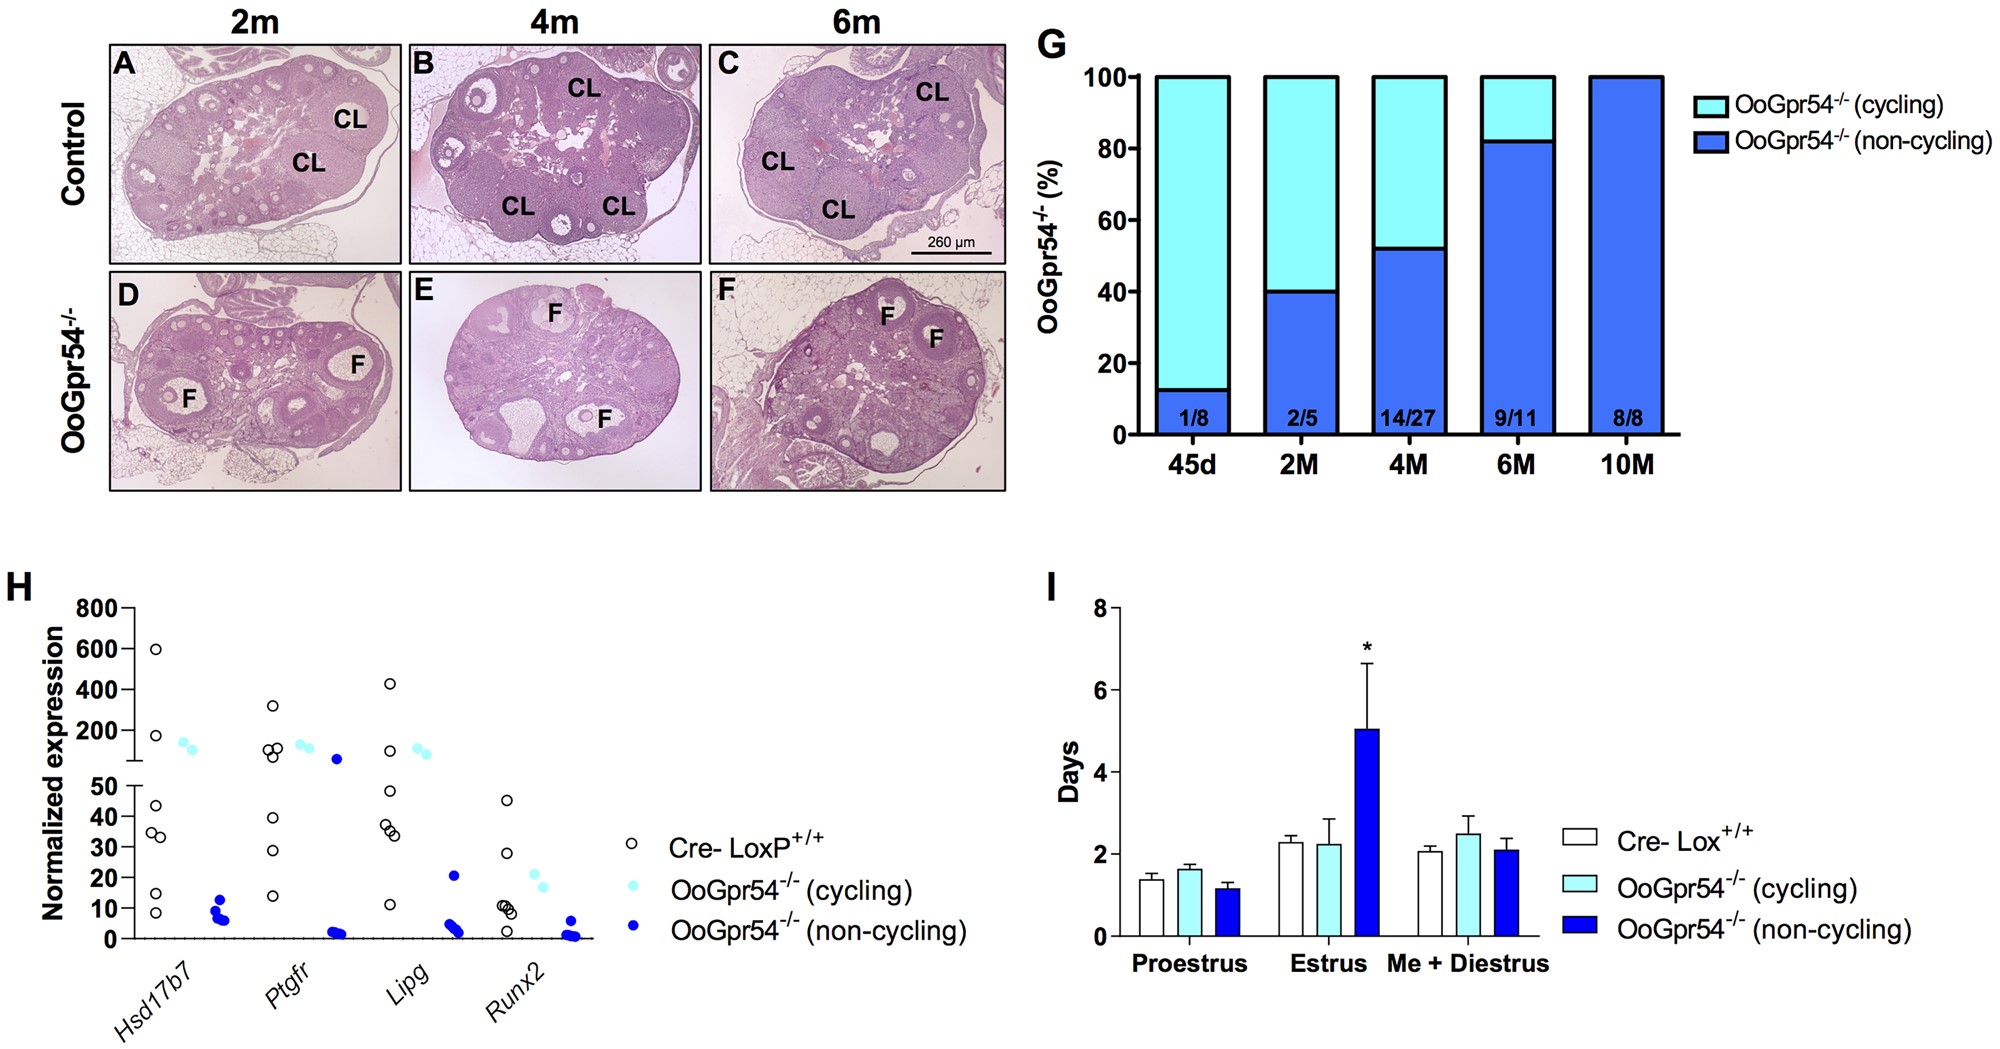
Obr. Progresívne ovulačné zmeny zaznamenané u myší s deléciou Gpr54/Kiss1r selektívnou pre oocyty.[6]
Panely (AF) ukazujú reprezentatívnu ovariálnu histológiu z kontrolných a OoGpr54-/- myší v uvedenom veku. Panel (G) sumarizuje podiel samíc OoGpr54-/- bez žltých teliesok, panel (H) predstavuje vybrané nálezy sekvenovania RNA a panel (I) ukazuje merania estrálneho cyklu. Veľkosti skupín a štatistické metódy sú uvedené v pôvodnej publikácii.[6]
Obmedzenia výskumu
Štúdie zhrnuté vyššie nehodnotia všetky rovnakú molekulárnu formu kisspeptínu. Prekurzor KISS1 môže byť spracovaný na niekoľko bioaktívnych peptidov, vrátane KP54, KP14, KP13 a KP10, ktoré zdieľajú rovnaký C-terminálny dekapeptid, ale líšia sa dĺžkou a farmakokinetickým správaním. Štúdia Wu používala KP54 a TAK448, zatiaľ čo iná citovaná práca skúmala endogénnu signalizáciu kisspeptínu, modely knockoutu receptorov alebo prípravky kisspeptínu, ktoré neboli navrhnuté ako priame porovnanie komerčného výskumného materiálu KP-10.[2,3,4,6,7]
KISS1R je receptor triedy AG spojený s proteínom a je najlepšie známy pre signalizáciu Gq/11, hoci nedávna štrukturálna a funkčná práca tiež podporuje spojenie s Gi/o za špecifických experimentálnych podmienok.[2] Rozdiely v izoforme peptidu, expresii receptora, druhu, tkanivovom kontexte, spôsobe expozície a experimentálnom usporiadaní môžu ovplyvniť pozorovanú odpoveď. Výsledky z myších a potkaních modelov by preto mali zostať viazané na presný peptid, model receptora a experimentálne podmienky opísané v každej publikácii.[2,7]
COCER Peptides predstavuje Kisspeptin-10 výhradne pre laboratórny výskum a analytické použitie. Nie je určený na humánne ani veterinárne použitie. Vyššie popísaný výskum sumarizuje zistenia uvedené v publikáciách tretích strán a nie je vyhlásením o klinickej účinnosti, bezpečnosti, diagnóze, liečbe, prevencii ani návodom na použitie.


