

|
1 комплет (10 бочица)
| Количина: | |
|---|---|
▎ Кисспептина Структура
Извор: ПубЦхем |
Секвенца:ГТСЛСПППЕССГСРККПГЛСАПХСРКИПАПКГАВЛВКРЕКДЛПНИНВНСФГЛРФ Молекуларна формула: Ц 258Х 401Н 79О78 Молекулска тежина: 5857 г/мол ПубЦхем ЦИД: 71306396 Синоними: Протеин КИСС-1;Кисспептинс |
▎ Кисспептина Истраживање
Молецулар Бацкгроунд
Кисспептин-10 (КП-10) је Ц-терминални фрагмент од 10 аминокиселина прекурсора кисспептина добијеног од КИСС1. Његова аминокиселинска секвенца је Тир-Асн-Трп-Асн-Сер-Пхе-Гли-Леу-Арг-Пхе-НХ2 (ИНВНСФГЛРФ-НХ2), а везује се за Г протеин спојен рецептор КИСС1Р. ПубЦхем наводи људски Кисспептин-10 под ЦИД 25240297, са молекулском формулом Ц63Х83Н17О14 и молекулском тежином од приближно 1302,4 г/мол.[1,8]
Напредак истраживања
Зхангсонг Ву и његове колеге су одредили крио-ЕМ структуре комплекса КИСС1Р-Гк и КИСС1Р-Ги везане за синтетички агонист ТАК448, заједно са КИСС1Р-Гк комплексом везаним за ендогени КП54. Функционални тестови у истој студији показали су да КИСС1Р може да се повеже са Ги/о путем поред утврђеног Гк/11 пута. Аутори су известили о структурним разликама у екстрацелуларним и интрацелуларним петљама рецептора и у интерфејсу Гα-подјединице које могу допринети селективности спајања Г-протеина. Ова структурна студија је користила КП54 и ТАК448 уместо КП-10 као везане лиганде.[2]
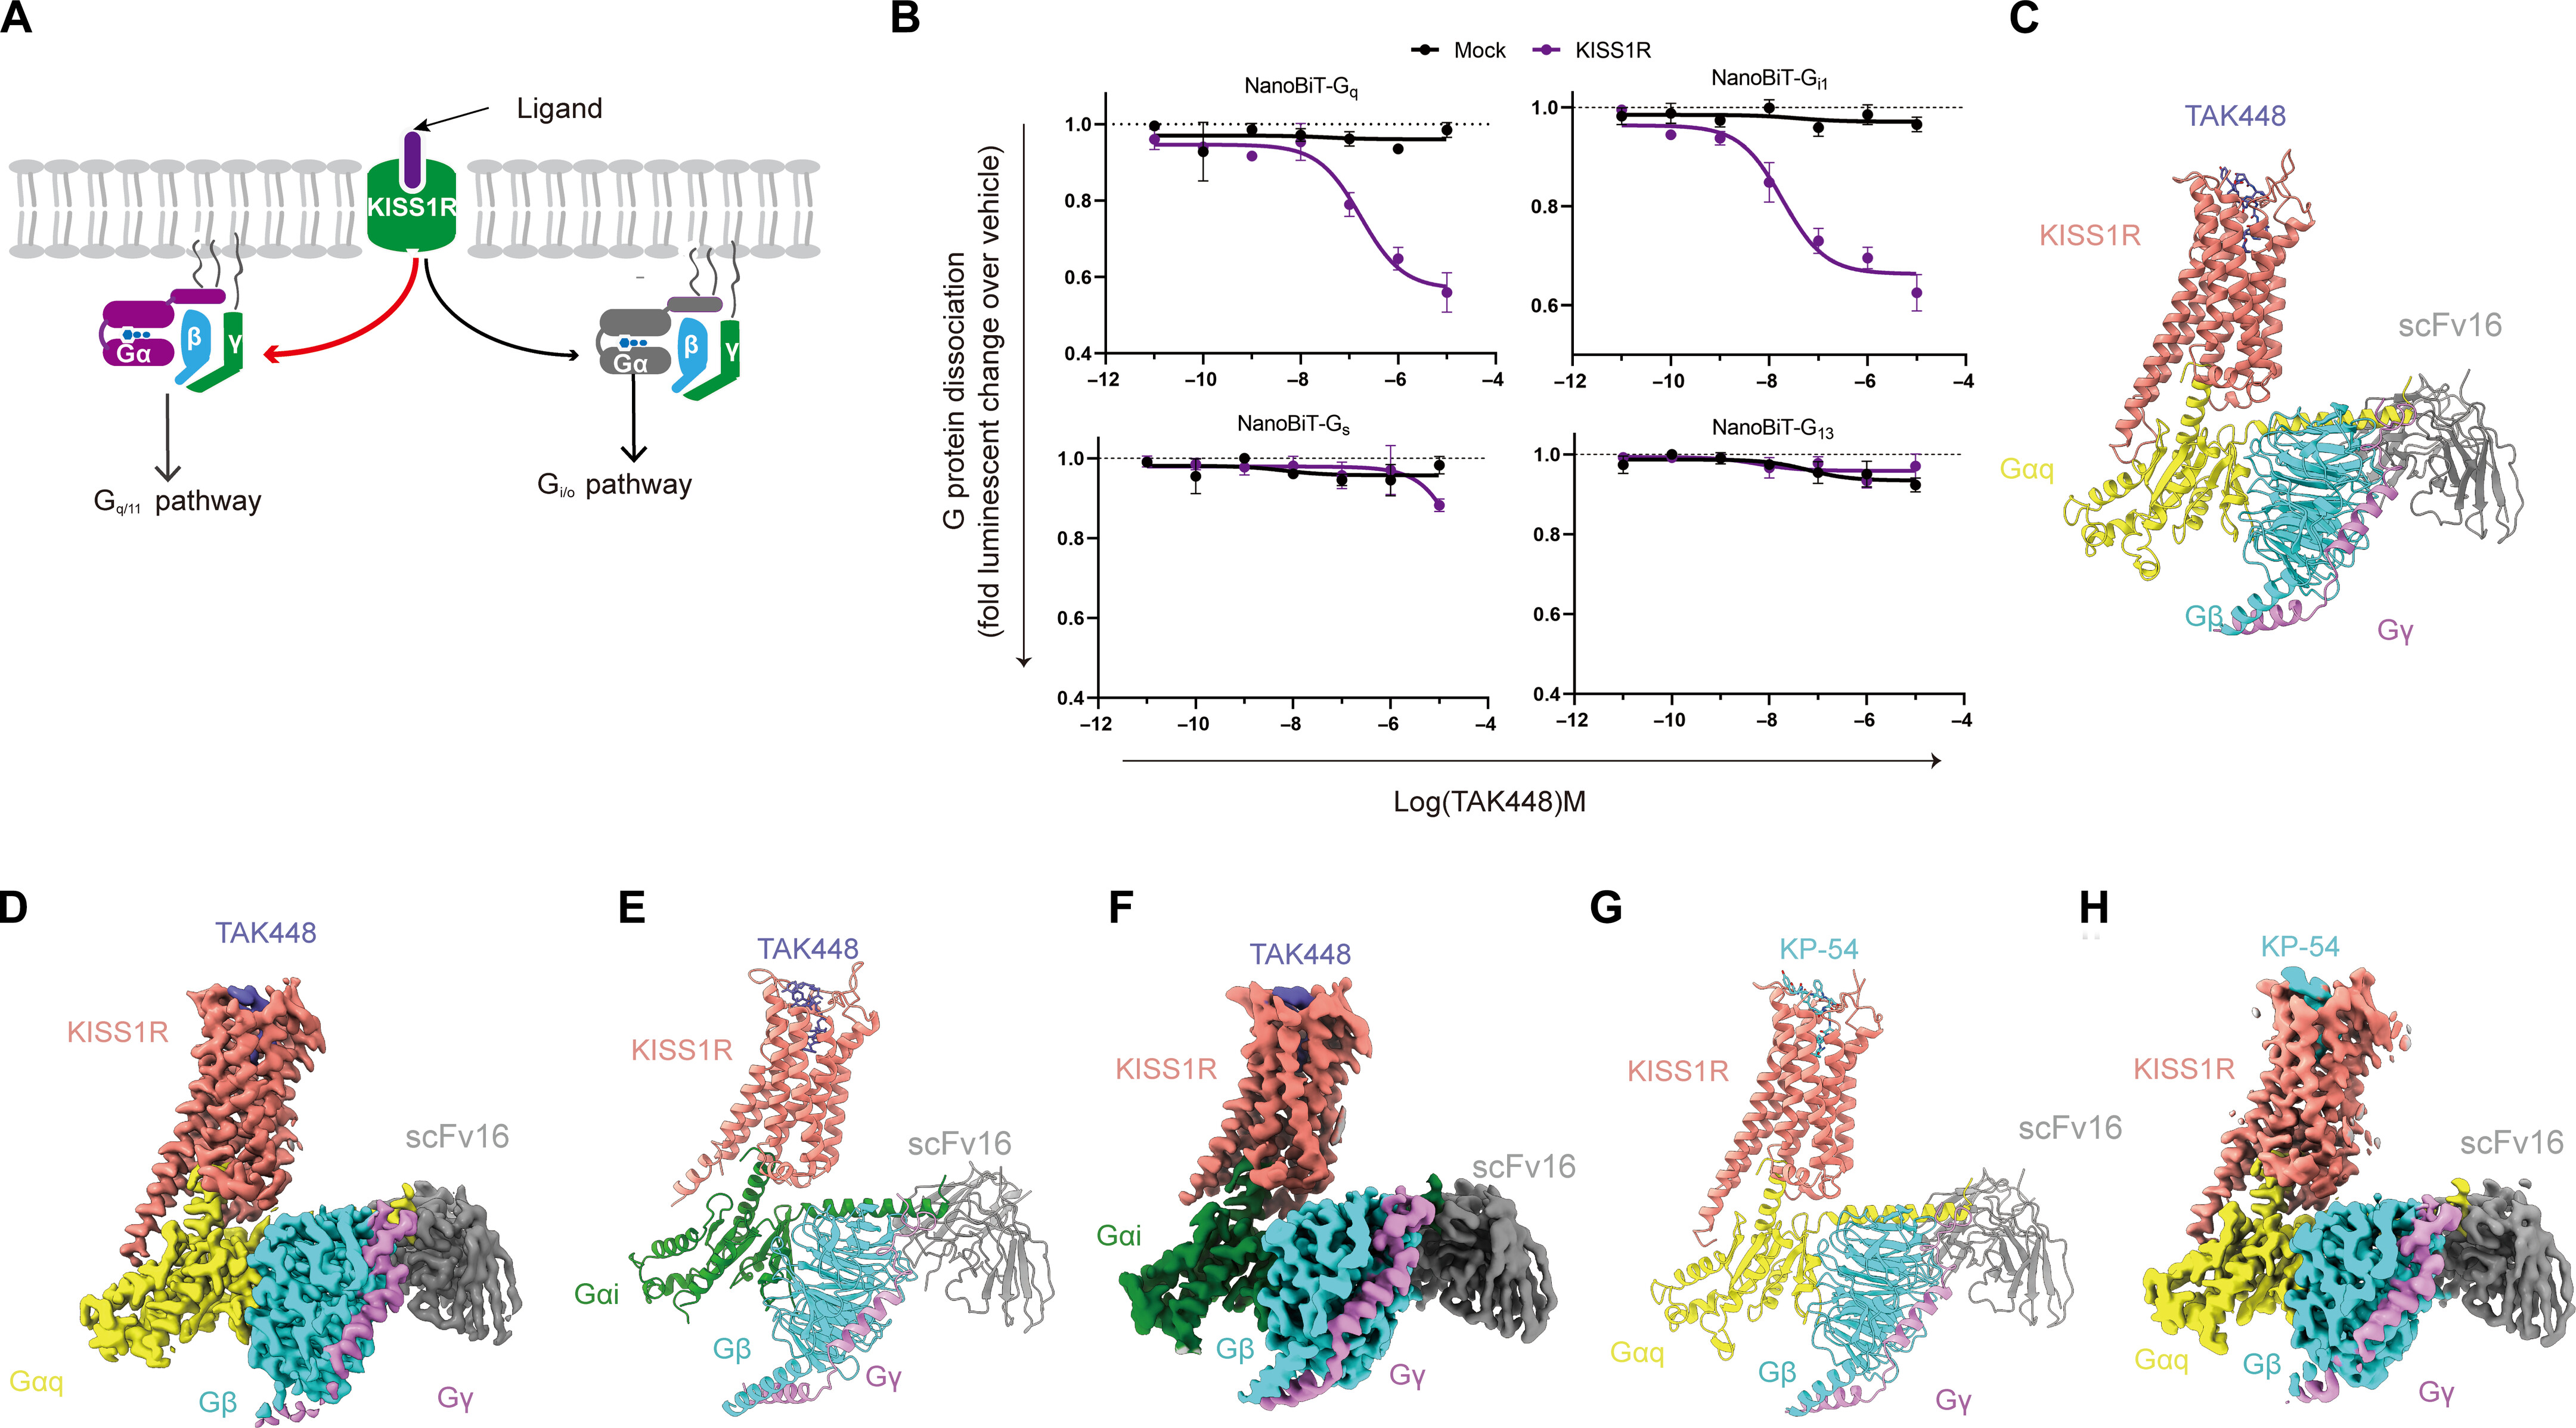
Фиг1. Крио-ЕМ структуре протеинских комплекса КИСС1Р-Г пријављене са ТАК448 и КП54 у цитираној студији.[2]
(А) Шематски приказ спајања КИСС1Р Г-протеина испитаног у изворној студији. (Б) НаноБиТ тестови дисоцијације Г-протеина за назначене чланове Г-протеина након излагања ТАК448. (ЦХ) Црио-ЕМ модели и мапе комплекса ТАК448-КИСС1Р-Гк, ТАК448-КИСС1Р-Ги и КП54-КИСС1Р-Гк. Експериментални услови и статистички детаљи су наведени у оригиналној публикацији.[2]
Јенни Цларксон и Аллан Хербисон проучавали су постнатални развој популација неурона кисспептина и њихове пројекције на ГнРХ неуроне код мишева. Користећи антисерум подигнут против мишјег кисспептина-10, они су идентификовали кисспептин-имунореактивне популације у антеровентралном перивентрикуларном/преоптичком перивентрикуларном региону, дорзомедијалном хипоталамусу и аркуатном језгру. Аутори су пријавили изражену женску доминантну разлику у броју неурона АВПВ/ПеН кисспептина и приметили блиске апозиције између кисспептинских влакана и ГнРХ неуронских ћелија које се појављују током постнаталног развоја. Овај рад карактерише експресију и развој ендогених неурона, а не ефекте спољашњег материјала КП-10.[3]
Алекандер С. Кауффман и колеге су користили одрасле мишеве дивљег типа (ВТ) и ГПР54/КИСС1Р нокаут (КО) мишева да испитају улогу сигнализације кисспептин-рецептора у сексуално диморфном понашању и неуралном развоју. Мушкарци и жене замењени хормонима ГПР54 КО задржали су полно типично копулативно понашање, док су уочене разлике у преференцијама олфакторног партнера и неколико сексуално диморфних неуронских особина. Аутори су закључили да сигнализација ГПР54 није била потребна за копулативно понашање одраслих у условима коришћене замене хормона, већ је била укључена у развој одабраних полно диморфних особина.[4]
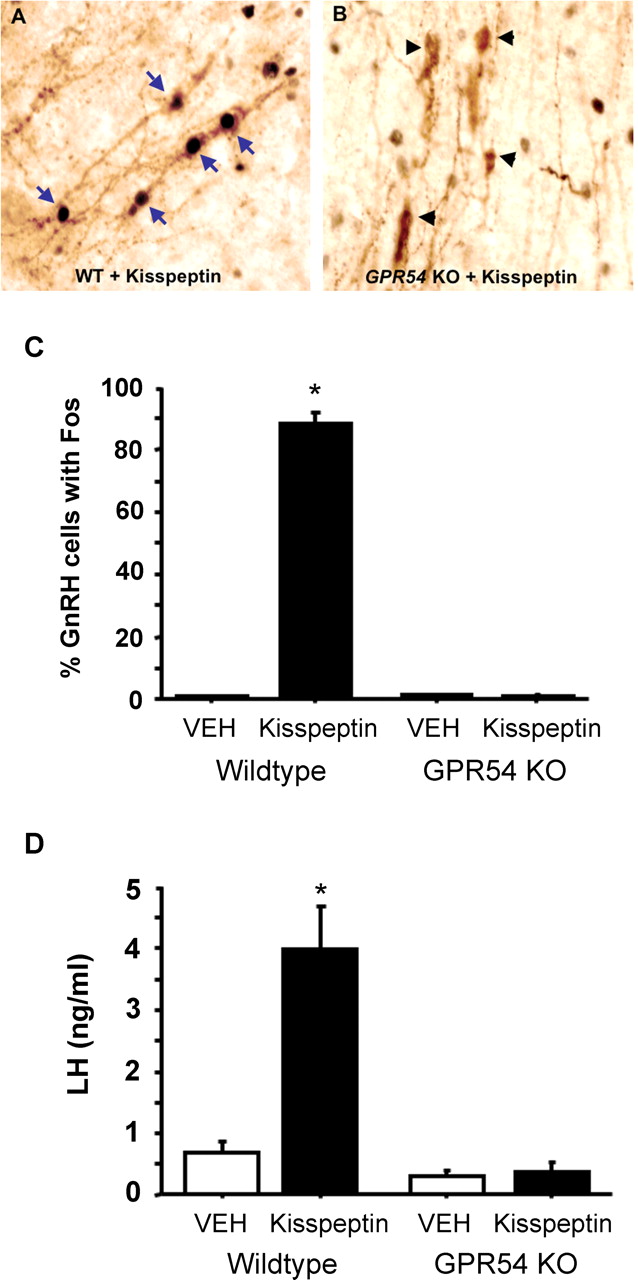
Фиг2. ГнРХ-неурон Фос имунореактивност и мерења ЛХ у плазми пријављена након интрацеребровентрикуларног излагања кисспептину код мушких мишева ВТ и ГПР54 КО.[4]
*п < 0,05 у односу на ВТ групу која је третирана возилом, као што је објављено у оригиналној студији.[4]
Осцар Гонзалез-Флорес и његове колеге су испитали интрацеребровентрикуларну изложеност кисспептину код пацова са овариектомијом напуњених естрадиол бензоатом. Аутори су мерили квоцијент лордозе и интензитет рефлекса лордозе, а затим су користили КИСС1Р антагонист Кисс-234, антагонист прогестеронских рецептора РУ486 и антид антагониста ГнРХ-1 рецептора да испитају укљученост рецептора. Изложеност кисспептину била је повезана са већим мерењима лордозе у моделу пацова, док је антагонистички третман смањио одговор у одабраним временским тачкама. Налази су подржали укљученост сигнализације КИСС1Р, рецептора прогестерона и ГнРХ рецептора у условима студије.[5]
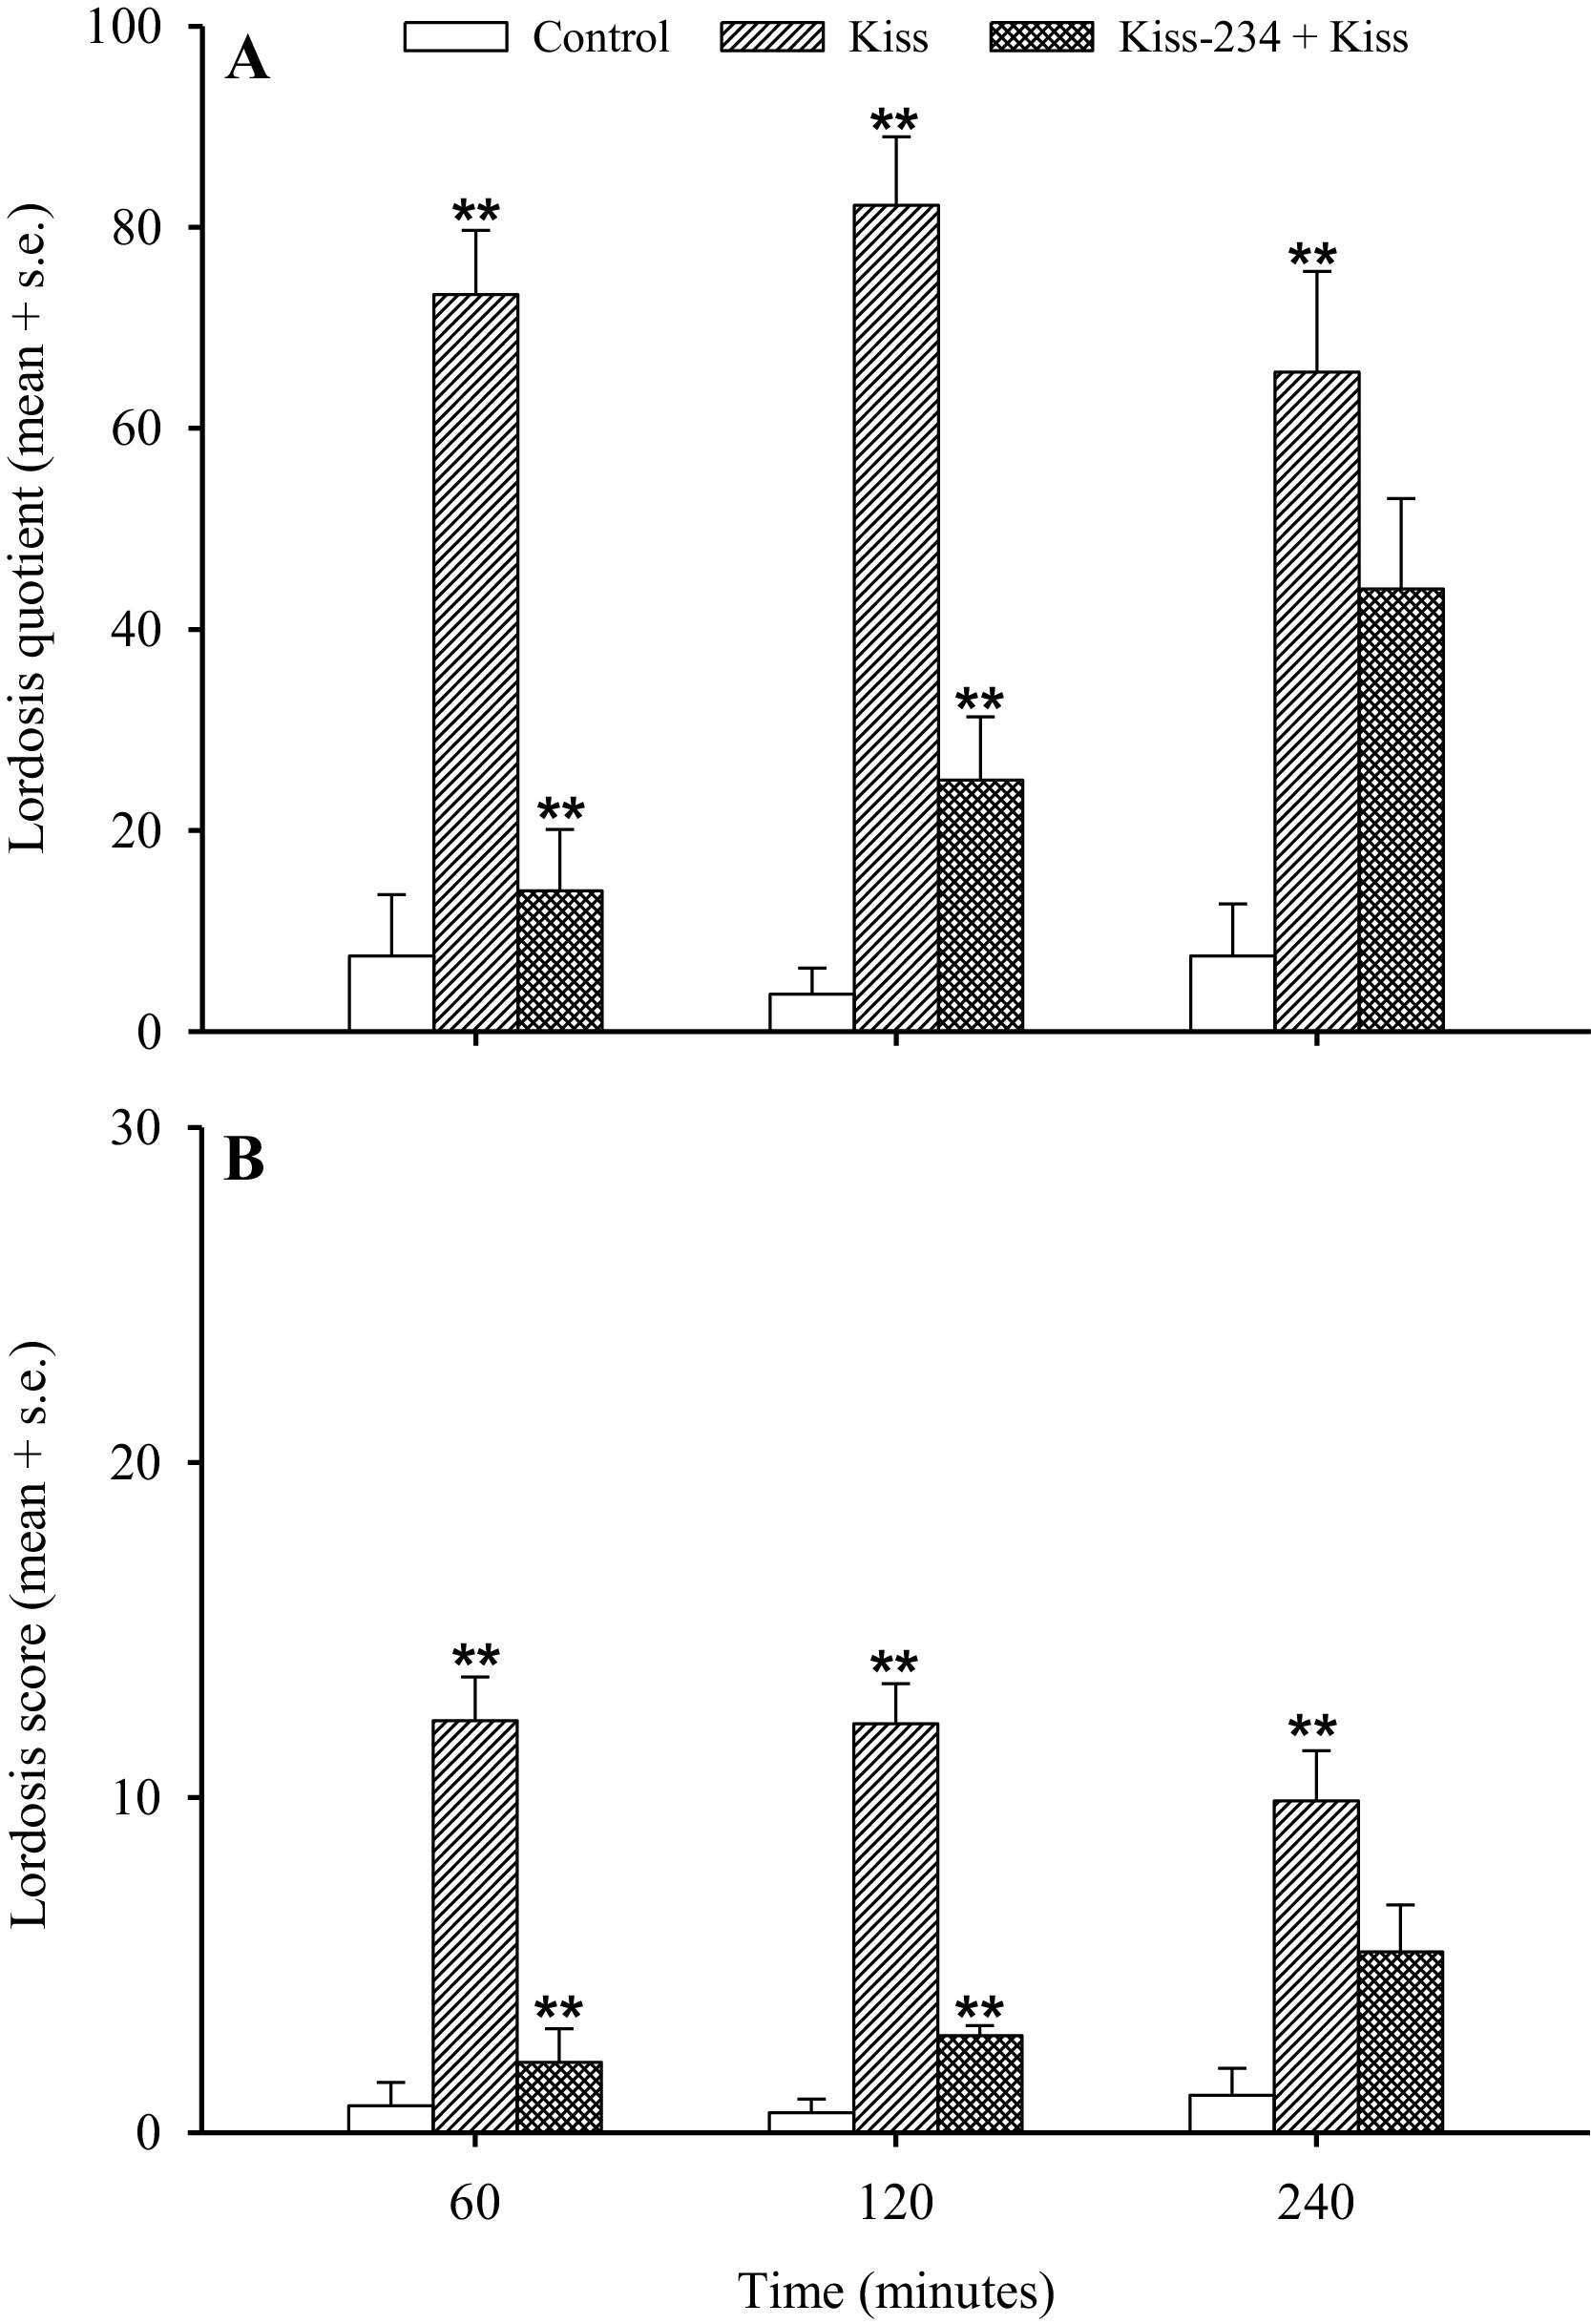
Фиг3. Мерења лордозе пријављена након излагања кисспептину са или без КИСС1Р антагониста Кисс-234 код пацова са овариектомијом.[5]
Изворна студија је упоредила кисспептин и контролне групе и проценила ефекат претходног третмана Кисс-234 на квоцијент лордозе и интензитет рефлекса лордозе. Величине група, студијске дозе, временске тачке и статистичка поређења приказани су у оригиналној публикацији.[5]
Суви Т. Руохонен и колеге су генерисали мишеве са селективном делецијом Гпр54/Кисс1р ооцита укрштањем линије Гдф9-Цре са линијом Гпр54 ЛокП. Добијени ОоГпр54−/− мишеви су подвргнути фенотипским, хистолошким, хормонским и молекуларним анализама у неколико постнаталних узраста. Аутори су пријавили нормалан почетак пубертета, али прогресивну неуспех овулације са годинама, укључујући хистолошке промене и измењене профиле експресије гена јајника. Пошто је ова студија користила делецију рецептора уместо давања пептида кисспептина, њени налази се тичу биолошке улоге КИСС1Р сигнализације јајника и нису директна студија изложености КП-10.[6]
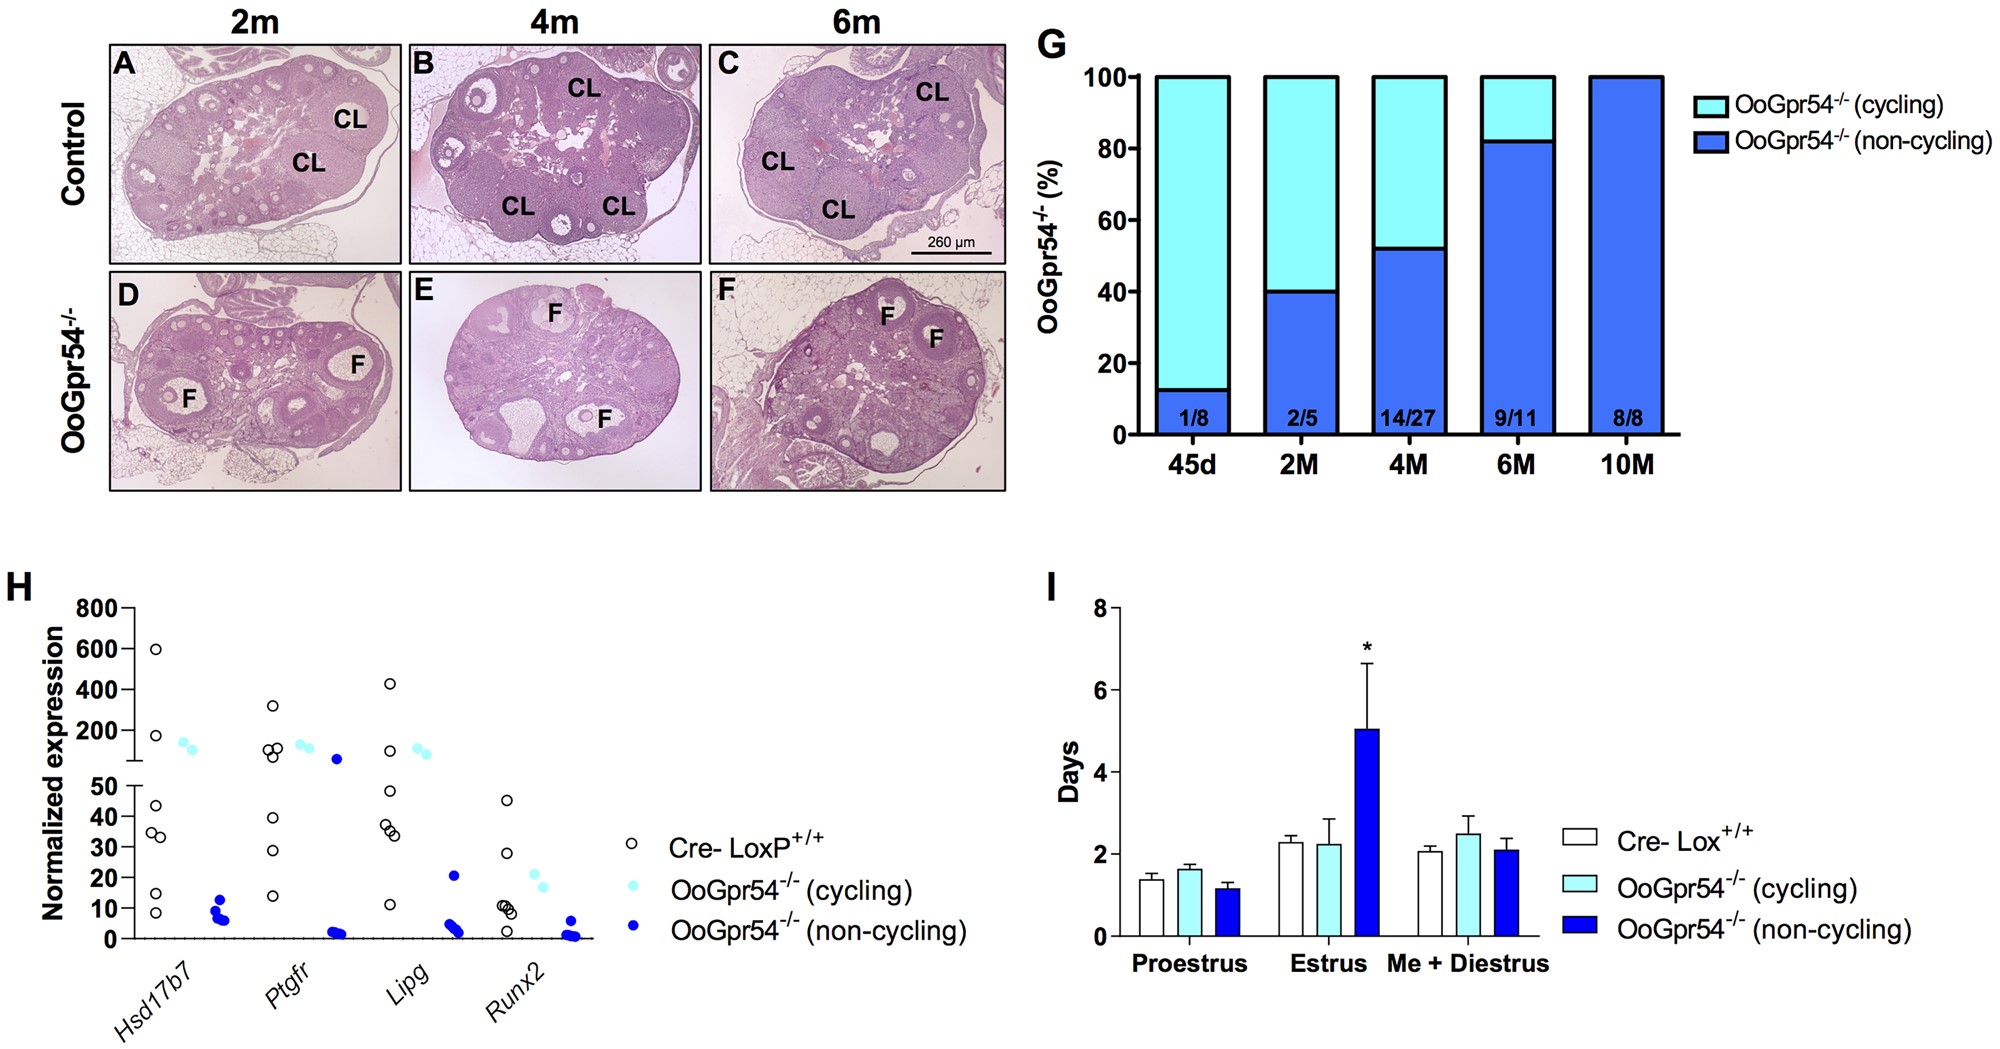
Фиг4. Прогресивне овулаторне промене пријављене код мишева са делецијом Гпр54/Кисс1р селективног ооцита.[6]
Панели (АФ) показују репрезентативну хистологију јајника код контролних и ОоГпр54−/− мишева у назначеним годинама. Панел (Г) сумира пропорцију ОоГпр54−/− женки без жутог тела, панел (Х) представља одабране налазе секвенцирања РНК, а панел (И) приказује мерења еструсног циклуса. Величина група и статистички методи су наведени у оригиналној публикацији.[6]
Ограничења истраживања
Студије које су сумиране изнад не процењују све исти молекуларни облик кисспептина. Прекурсор КИСС1 се може прерадити у неколико биоактивних пептида, укључујући КП54, КП14, КП13 и КП10, који деле исти Ц-терминални декапептид, али се разликују по дужини и фармакокинетичком понашању. Ву студија је користила КП54 и ТАК448, док је други цитирани рад испитивао ендогену сигнализацију кисспептина, моделе нокаута рецептора или препарате кисспептина који нису дизајнирани као директна поређења комерцијалног материјала за истраживање КП-10.[2,3,4,6,7].
КИСС1Р је рецептор повезан са протеином класе АГ и најпознатији је по Гк/11 сигнализацији, иако недавни структурални и функционални радови такође подржавају спајање са Ги/о под специфичним експерименталним условима.[2] Разлике у изоформи пептида, експресији рецептора, врсти, контексту ткива, путу излагања и експерименталном дизајну могу утицати на уочени одговор. Резултати са модела миша и пацова стога треба да остану везани за тачан модел пептида, рецептора и експерименталне услове описане у свакој публикацији.[2,7].
ЦОЦЕР Пептидес представља Кисспептин-10 искључиво за лабораторијска истраживања и аналитичку употребу. Није намењен за људску или ветеринарску употребу. Горе описано истраживање сумира налазе објављене у публикацијама трећих страна и није изјава о клиничкој ефикасности, безбедности, дијагнози, лечењу, превенцији или упутство за употребу.


