

|
1 sæt (10 hætteglas)
| Mængde: | |
|---|---|
▎ Cagrilintide struktur
Kilde: PubChem |
Sekvens: Pyr-KCNTATCATQRLAEFLRHSSNNFGPILPPTNVGSNTP CAS: 1415456-99-3 Formel: C 174H 269N 45O 52S2 MW 4409 g/mol |
▎ Cagrilintide Research
Molekylær baggrund
Cagrilintide er en syntetisk, langtidsvirkende acyleret amylinanalog sammensat af 37 aminosyrer med en C20-fedtsyremodifikation. Det virker som en ikke-selektiv agonist ved amylinreceptorer (AMY1R, AMY2R og AMY3R) og calcitoninreceptoren (CTR). PubChem lister Cagrilintide under CID 171397054 med molekylformlen C194H312N54O59S2 og en molekylvægt på ca. 4409 g/mol.[7]
Forskningsfremskridt
Ved at bruge enkelt-kerne RNA-sekventering (snRNA-seq), Ludwig et al. konstruerede et transkriptomisk atlas omfattende mere end 530.000 celler fra den kaudale hjernestamme fra rotter, mus og makaker og kombinerede dette med rumlig transkriptomi. Forskerne brugte cagrilintideksponering til at undersøge neuronale populationer i det dorsale vagale kompleks (DVC). De rapporterede akutte transkriptionelle reaktioner i Calcr/Ramp3-neuroner i area postrema og, efter længere eksponering hos rotter, øget Prlh-ekspression i NTS Calcr/Prlh-neuroner. Opfølgningsforsøg understøttede en rolle for disse neuronale populationer i de langsigtede fødevareindtag og kropsvægt-responser observeret i rottemodellen. Resultaterne beskriver tværarter neurale kredsløb og transkriptomiske reaktioner under de anvendte eksperimentelle forhold.[2]
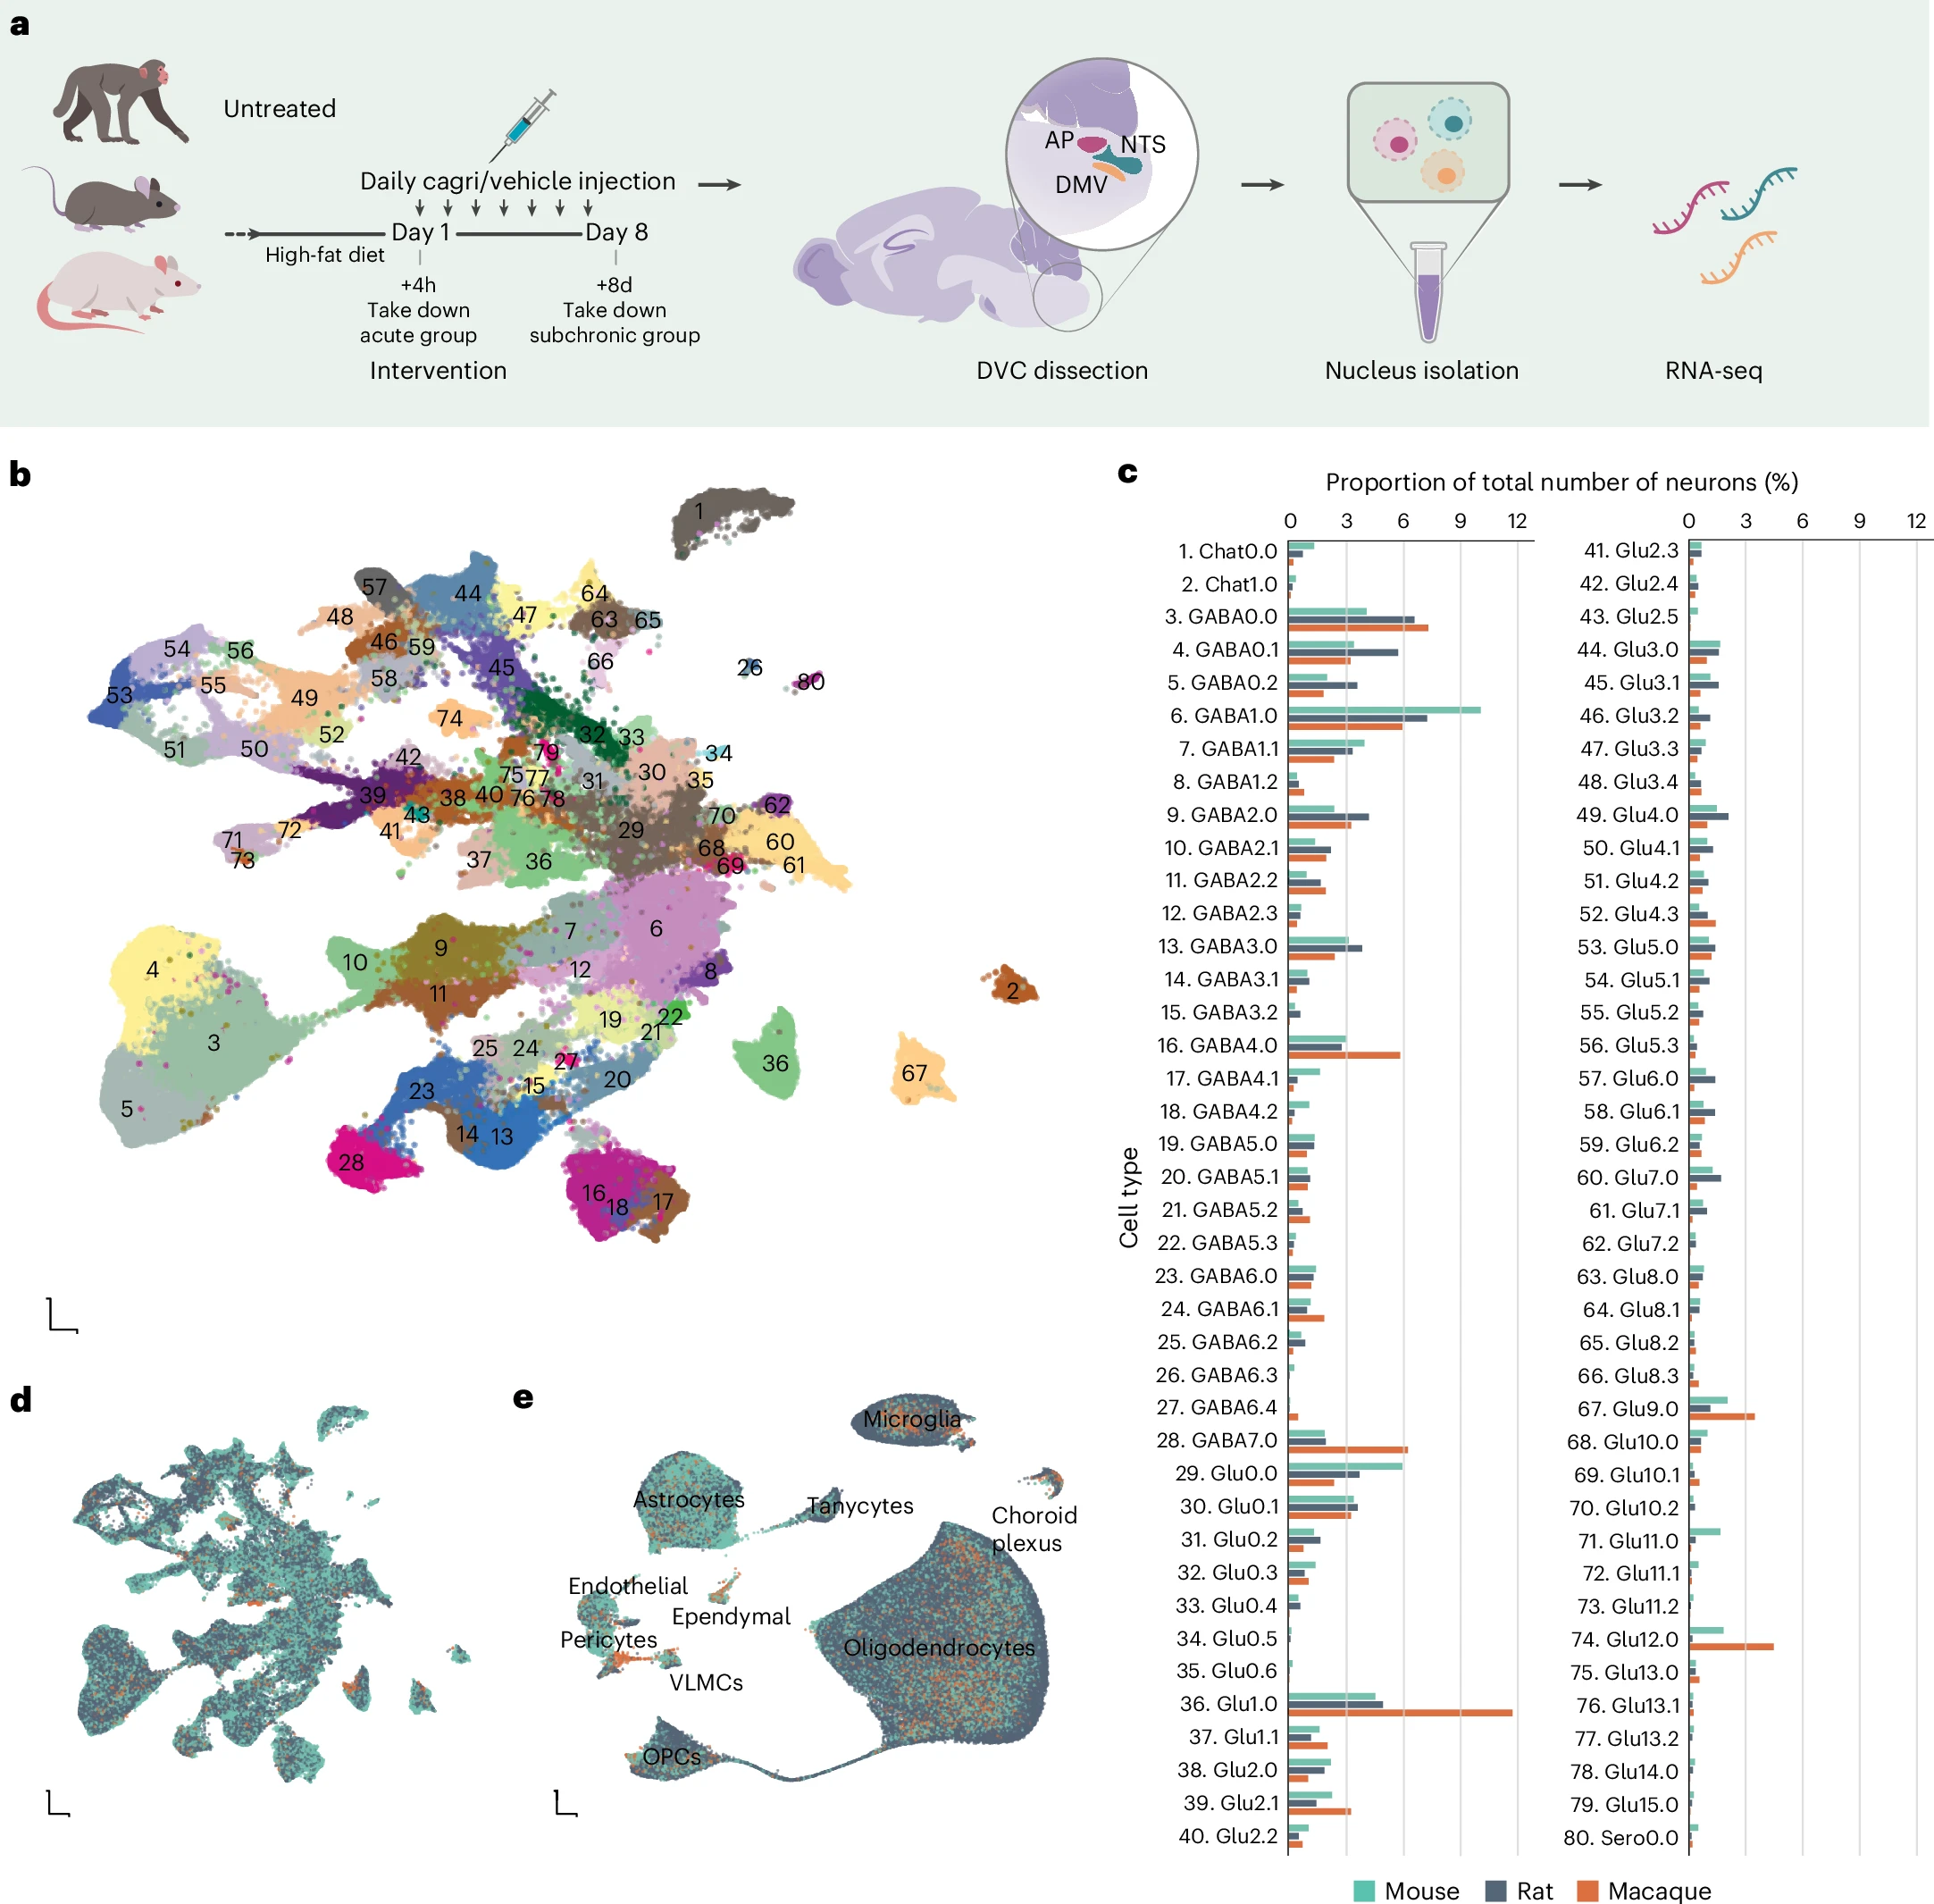
Fig. 1: Transkriptomisk atlas på tværs af arter af enkeltkerner af det dorsale vagale kompleks i den citerede undersøgelse.[2]
Kildefiguren opsummerer in vivo-studiedesignet i diæt-inducerede overvægtige rotter og mus, ubehandlede makakaber, UMAP-definerede neuronale og gliale populationer og bidraget fra hver population på tværs af arter. Komplette gruppedefinitioner, celletal og analysemetoder er rapporteret i den originale publikation.[2]
Carvas et al. undersøgte bidraget af amylinreceptor-undertyper til cagrilintid-responser ved hjælp af han-vildtype- og RAMP1/3-knockout-mus, der blev holdt på en diæt med højt fedtindhold. I løbet af den 3-ugers undersøgelse modtog dyr vehikel, laksecalcitonin eller cagrilintid. Forfatterne rapporterede forskelle i kropsvægt og fødeindtagsmålinger mellem vildtype- og RAMP1/3 knockout-mus sammen med ændringer i cFos-signalering i det dorsale vagale kompleks og den laterale parabrachiale kerne. Bulk RNA-sekventering blev også brugt til at undersøge gen-ekspressionsmønstre i udvalgte hjerneregioner. Resultaterne understøttede involvering af AMY1R og AMY3R i reaktionerne på cagrilintid observeret i denne musemodel.[3]
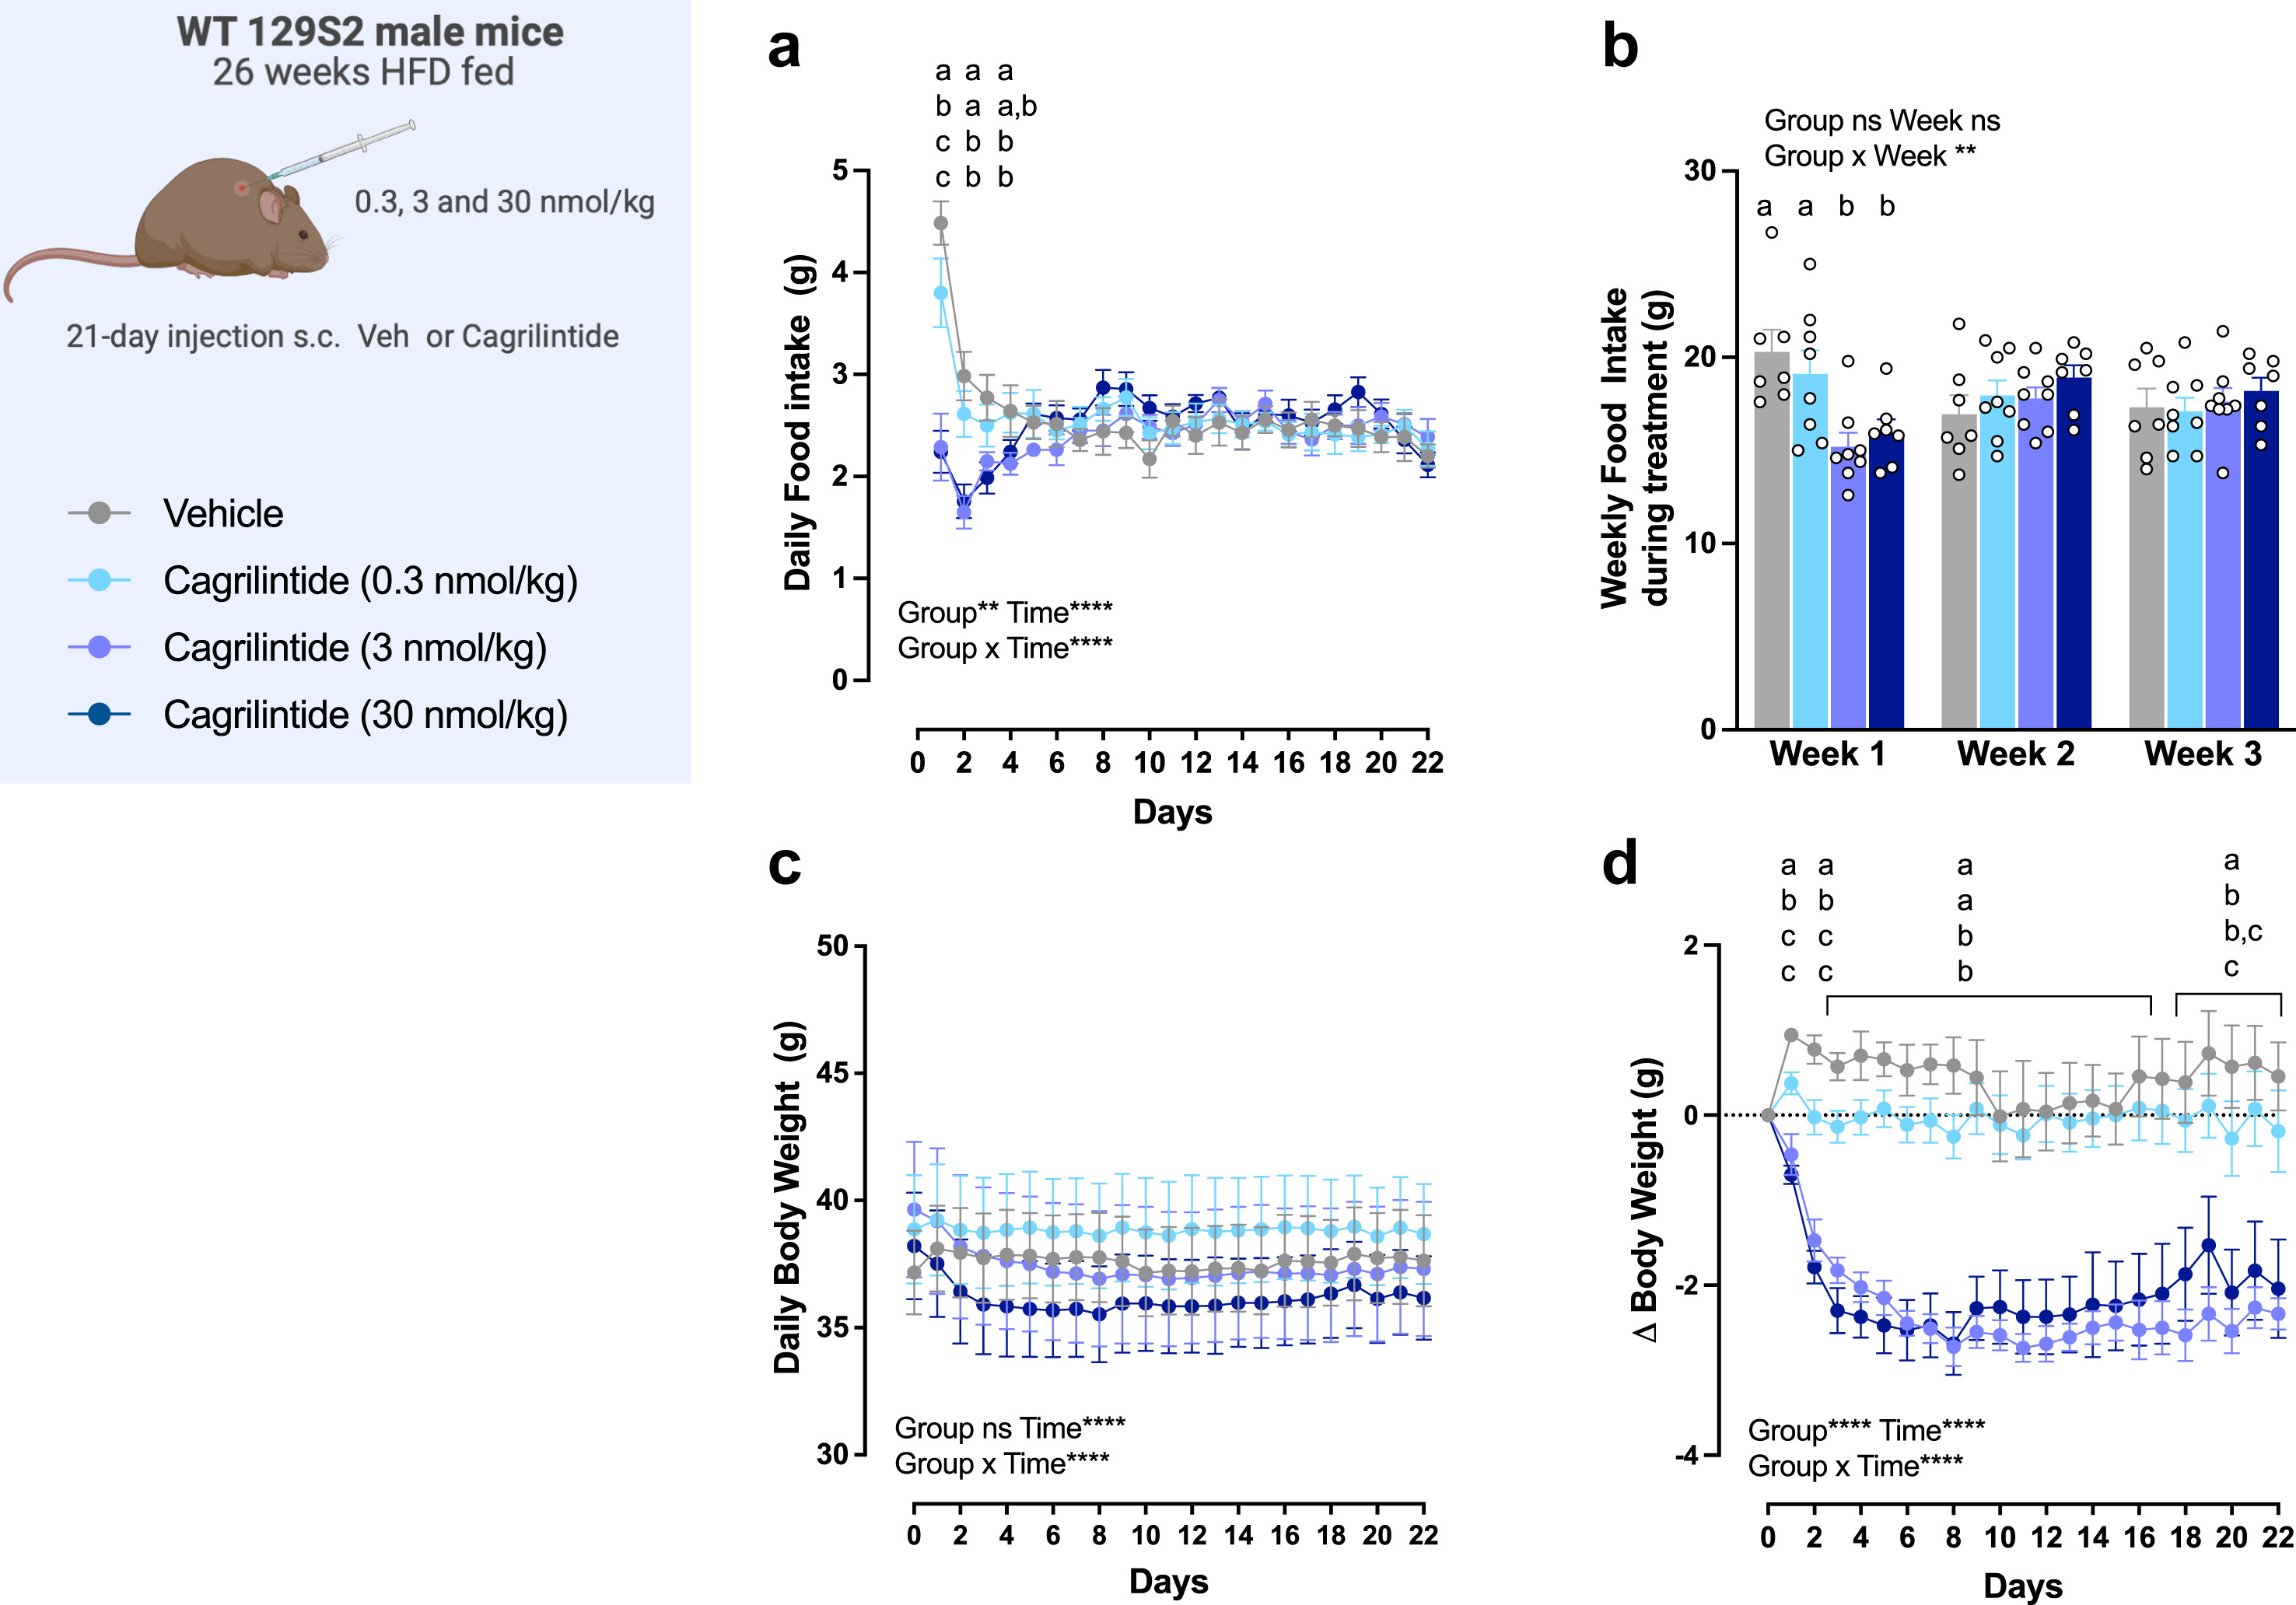
Fig. 2. Målinger af fødeindtagelse og kropsvægt brugt til at vælge en cagrilintid-dosis i højfedt-diæt-fodret vildtype mus i den citerede undersøgelse.[3]
Kildetallet sammenligner dagligt og ugentligt fødeindtag, daglig kropsvægt og kumulativ kropsvægtændring på tværs af vehikel- og cagrilintidundersøgelsesgrupper. Gruppestørrelser, doser, statistiske metoder og komplette eksperimentelle procedurer er rapporteret i den originale publikation.[3]
Petersen et al. brugte en diæt-induceret fedmemodel hos hanrotter til at sammenligne cagrilintid og GLP-3 alene og i kombination, sammen med matchede dosis-sammenligningskombinationer indeholdende semaglutid eller GLP-2. Forskerne målte kropsvægt, fødeindtagelse, fedtvævsmasse, cirkulerende metaboliske markører, plasmaproteomik og hjernetranskriptomiske reaktioner. De rapporterede større ændringer i kropsvægt og fødeindtagelse med cagrilintide-GLP-3 kombinationen end med de ækvimolære monoterapier under undersøgelsesbetingelserne, sammen med forskelle i kolesterol, triglycerider, insulin, plasmaproteiner og centrale neuronale genprogrammer. Fordi dette var et kombinationsstudie, bør de rapporterede resultater ikke tilskrives cagrilintid alene.[4]
Vera Wulfmeyer og kolleger brugte en ex vivo nyre-tubuli-model fra 20 Zucker Diabetic Fatty (ZDF) hanrotter, inklusive magre kontroller og fede diabetiske dyr, til at udforske nyresignalering forbundet med cagrilintid. Kortikale og medullære tubulifraktioner blev udsat for vehikel, cagrilintid eller laksecalcitonin efter phosphodiesterasehæmning, og intracellulær cAMP blev målt. Forfatterne rapporterede phosphoryleringsændringer, der involverede iontransportører som NKCC2 og NCC i raske rotterubuli og en signifikant cAMP-stigning i corticale tubuli fra diabetiske ZDF-rotter efter cagrilintideksponering, mens raske rotter ikke viste det samme cAMP-respons. Publikationen er et konferenceabstrakt, der beskriver foreløbige ex vivo fund, med phosphoproteomiske analyser rapporteret som igangværende på tidspunktet for offentliggørelsen.[5]
Cao et al. brugt kryo-elektronmikroskopi og molekylær-dynamik tilgange til at karakterisere cagrilintid bundet til aktive AMY1R, AMY2R, AMY3R og CTR komplekser. Forfatterne rapporterede en amylin-lignende bindingsmåde sammen med receptorspecifik konformationel dynamik på tværs af calcitonin-familiens receptorer.[6] Gu et al. uafhængigt bestemte cryo-EM-strukturer af cagrilintid bundet til AMY1R og CTR og beskrev molekylære kontakter forbundet med ikke-selektiv Gs-koblet receptoraktivering. Disse strukturelle undersøgelser definerer peptid-receptor-interaktioner under eksperimentelle forhold og etablerer ikke i sig selv klinisk effektivitet eller sikkerhed.[1]
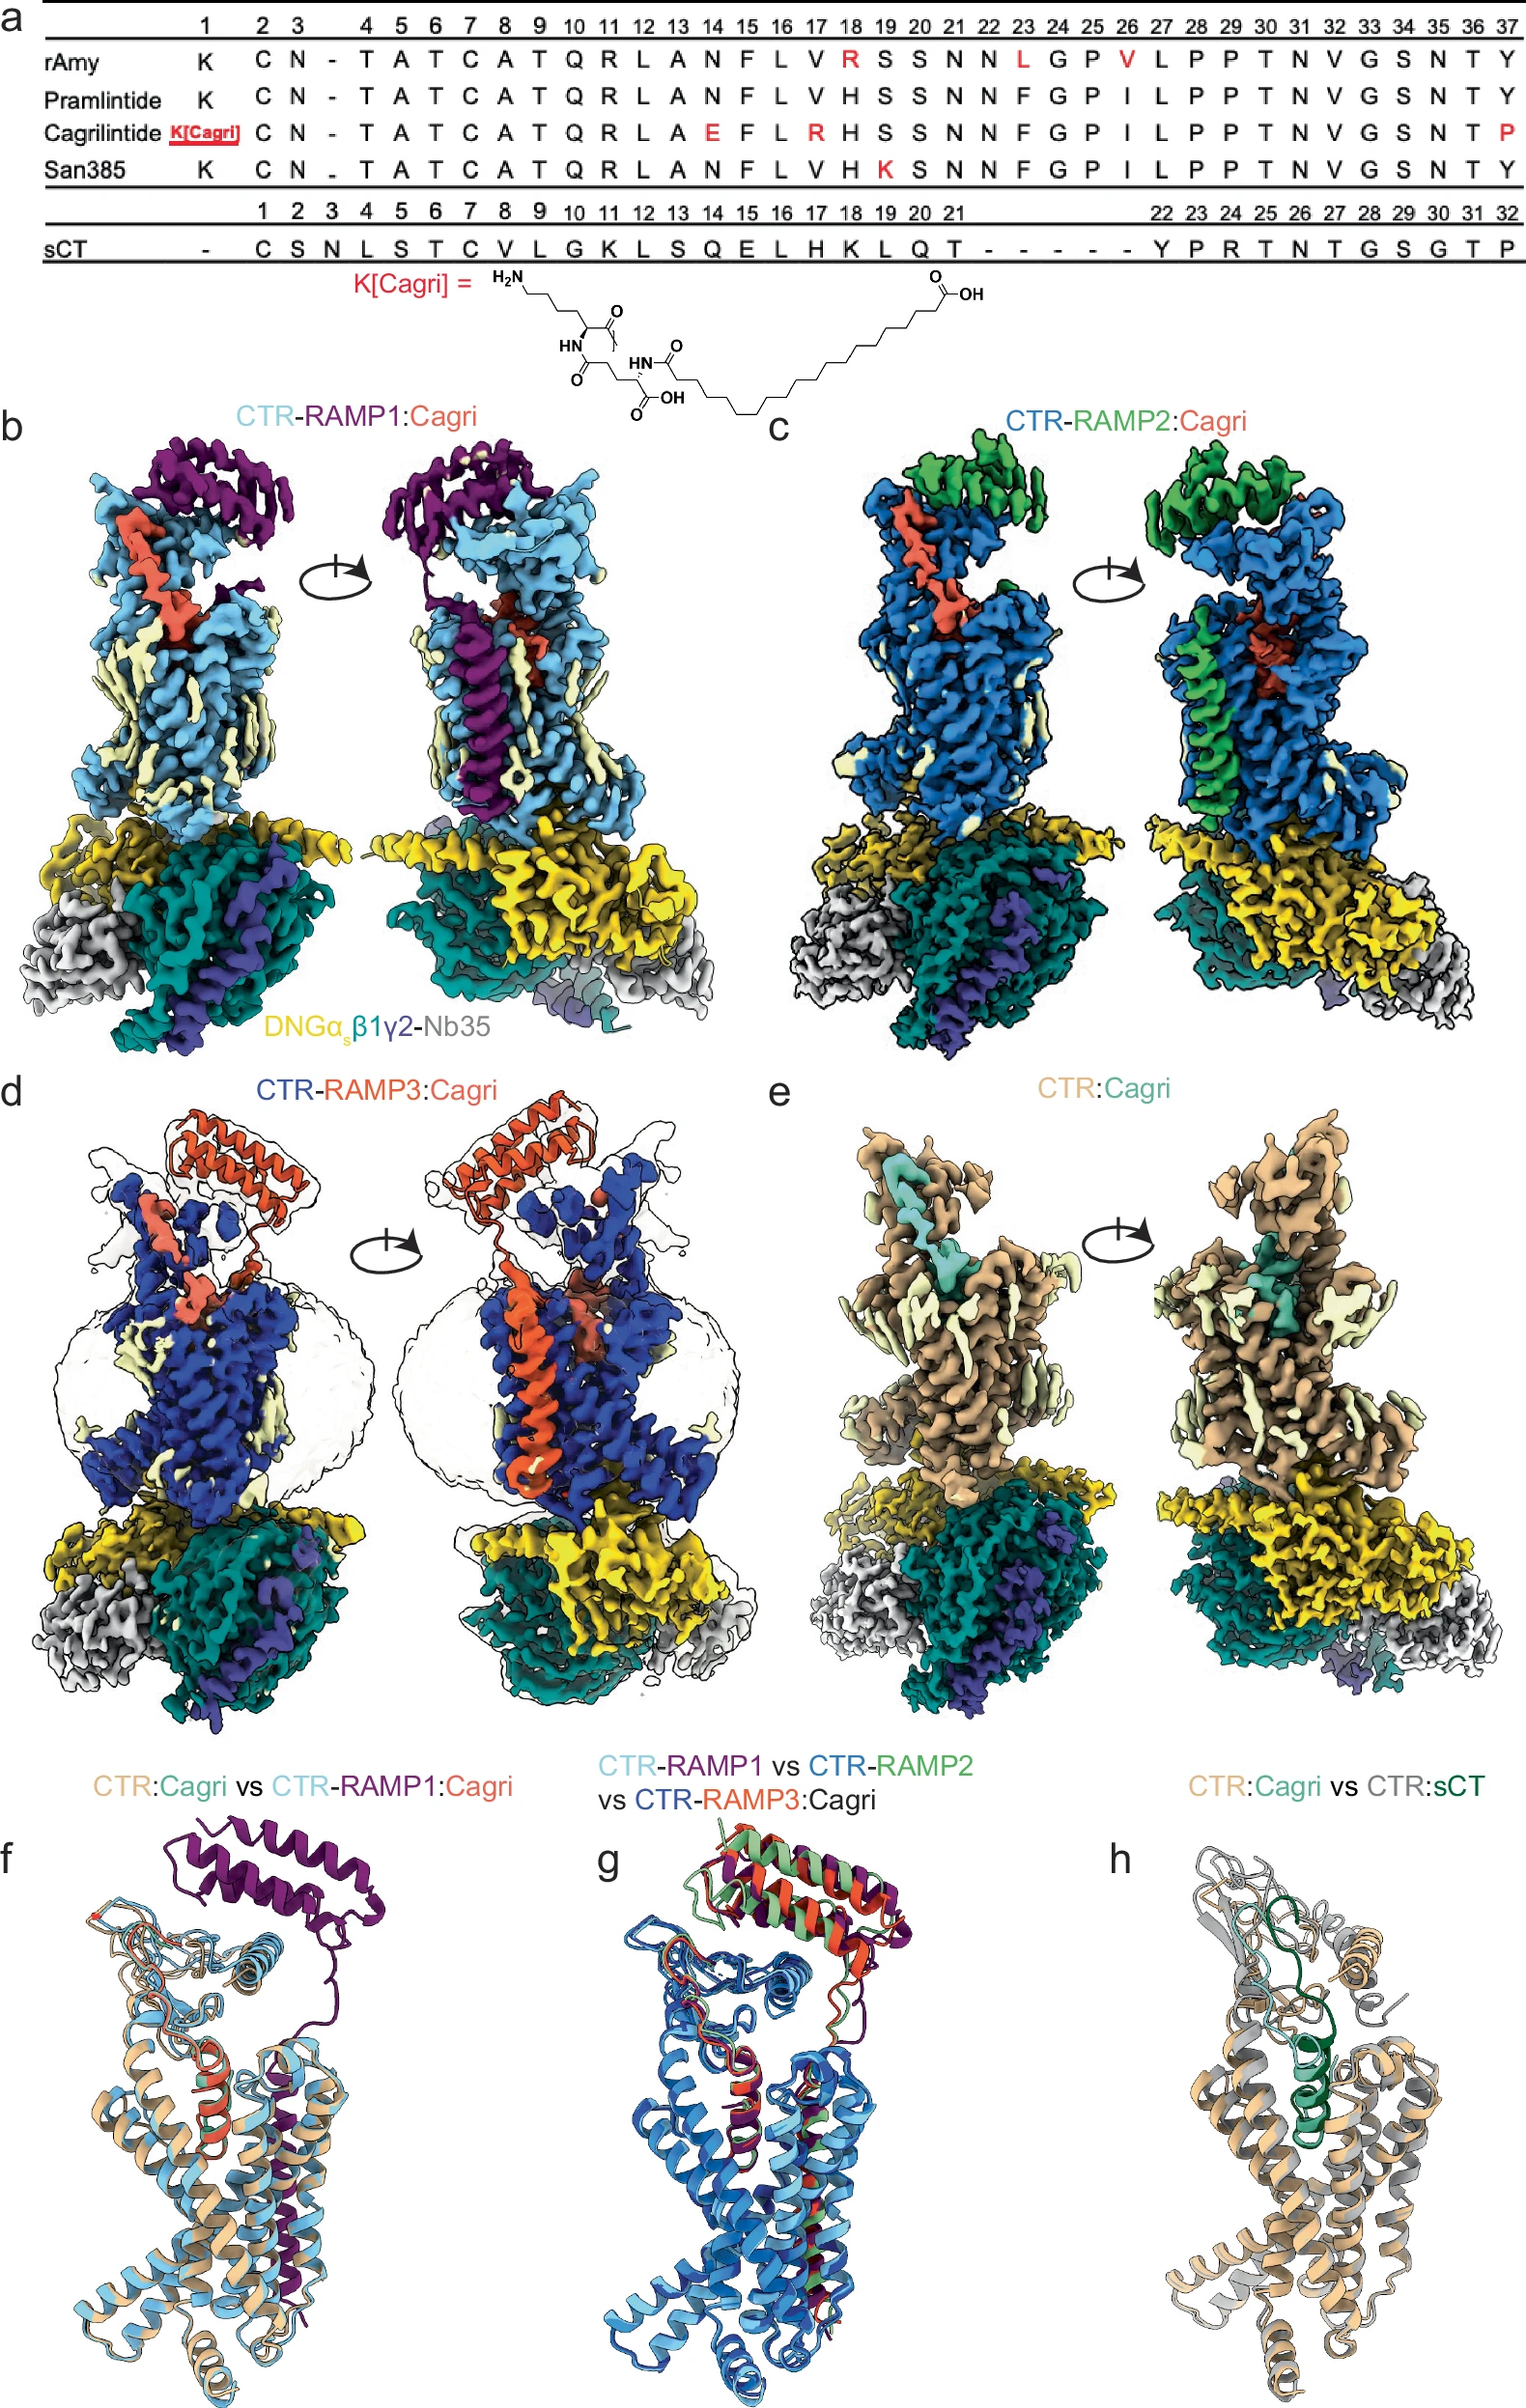
Fig. 3. Aminosyresekvensjustering og cryo-EM-strukturer af cagrilintid bundet til amylinreceptorer og calcitoninreceptoren i den citerede strukturelle undersøgelse.[6]
Kildefiguren viser cagrilintidsekvensen og lipidmodifikationen sammen med aktive, Gs-koblede AMY1R-, AMY2R-, AMY3R- og CTR-komplekser. Strukturel tilpasning og receptorkomponenter præsenteres som rapporteret af undersøgelsens forfattere.[6]
Forskningsbegrænsninger
Studierne opsummeret ovenfor bruger forskellige prækliniske og analytiske systemer, herunder gnavermodeller, ex vivo nyretubuli, transkriptomisk profilering og oprensede receptorkomplekser. Resultater fra disse systemer er ikke direkte udskiftelige. Cagrilintid-GLP-3-undersøgelsen evaluerede en kombination og kan derfor ikke bestemme det uafhængige bidrag fra cagrilintid til hvert rapporteret resultat.[4] Nyreundersøgelsen blev offentliggjort som et konferenceabstrakt med foreløbige ex vivo-resultater og evaluerede ikke langsigtet nyreakkumulering, klinisk sikkerhed eller humane nyreresultater.[5]
Cagrilintid er en modificeret amylinanalog, hvorimod nativ amylin er kendt for sin tilbøjelighed til at aggregere under nogle biologiske forhold. Strukturel modifikation af cagrilintid blev til dels designet til at reducere fibrillering, men de undersøgelser, der citeres her, fastslår ikke den langsigtede sikkerhed, farmakokinetik eller kliniske ydeevne af uafhængigt leveret forskningsmateriale. Fortolkning bør forblive bundet til den nøjagtige molekylære form, eksperimentelle model og undersøgelsesbetingelser rapporteret i hver publikation.[1,5,6]
COCER Peptides præsenterer Cagrilintide udelukkende til laboratorieforskning og analytisk brug. Det er ikke beregnet til human eller veterinær brug. Dette COCER-peptidmateriale er ikke et FDA-godkendt lægemiddelprodukt. Forskningen beskrevet ovenfor opsummerer resultater rapporteret i tredjepartspublikationer og er ikke en erklæring om klinisk effekt, sikkerhed, diagnose, behandling, forebyggelse eller en brugsanvisning.


