


|


1 Kits (10 Fläschchen)
| Menge: | |
|---|---|
▎ Kisspeptin- Struktur
Quelle: PubChem |
Sequenz:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNNNSFGLRF Summenformel 258CHNO40179: 78 Molekulargewicht: 5857 g/mol PubChem-CID: 71306396 Synonyme: Protein KISS-1; Kisspeptine |
▎ Kisspeptin -Forschung
Molekularer Hintergrund
Kisspeptin-10 (KP-10) ist ein 10 Aminosäuren langes C-terminales Fragment des von KISS1 abgeleiteten Kisspeptin-Vorläufers. Seine Aminosäuresequenz ist Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2) und es bindet den G-Protein-gekoppelten Rezeptor KISS1R. PubChem listet menschliches Kisspeptin-10 unter der CID 25240297 mit der Summenformel C63H83N17O14 und einem Molekulargewicht von etwa 1302,4 g/mol.[1,8]
Forschungsfortschritt
Zhangsong Wu und Kollegen bestimmten Kryo-EM-Strukturen von KISS1R-Gq- und KISS1R-Gi-Komplexen, die an den synthetischen Agonisten TAK448 gebunden sind, zusammen mit einem KISS1R-Gq-Komplex, der an endogenes KP54 gebunden ist. Funktionelle Tests in derselben Studie zeigten, dass KISS1R zusätzlich zum etablierten Gq/11-Signalweg an den Gi/o-Signalweg koppeln kann. Die Autoren berichteten über strukturelle Unterschiede in den extrazellulären und intrazellulären Schleifen des Rezeptors sowie in der Gα-Untereinheit-Schnittstelle, die möglicherweise zur G-Protein-Kopplungsselektivität beitragen. Diese Strukturstudie verwendete KP54 und TAK448 anstelle von KP-10 als gebundene Liganden.[2]
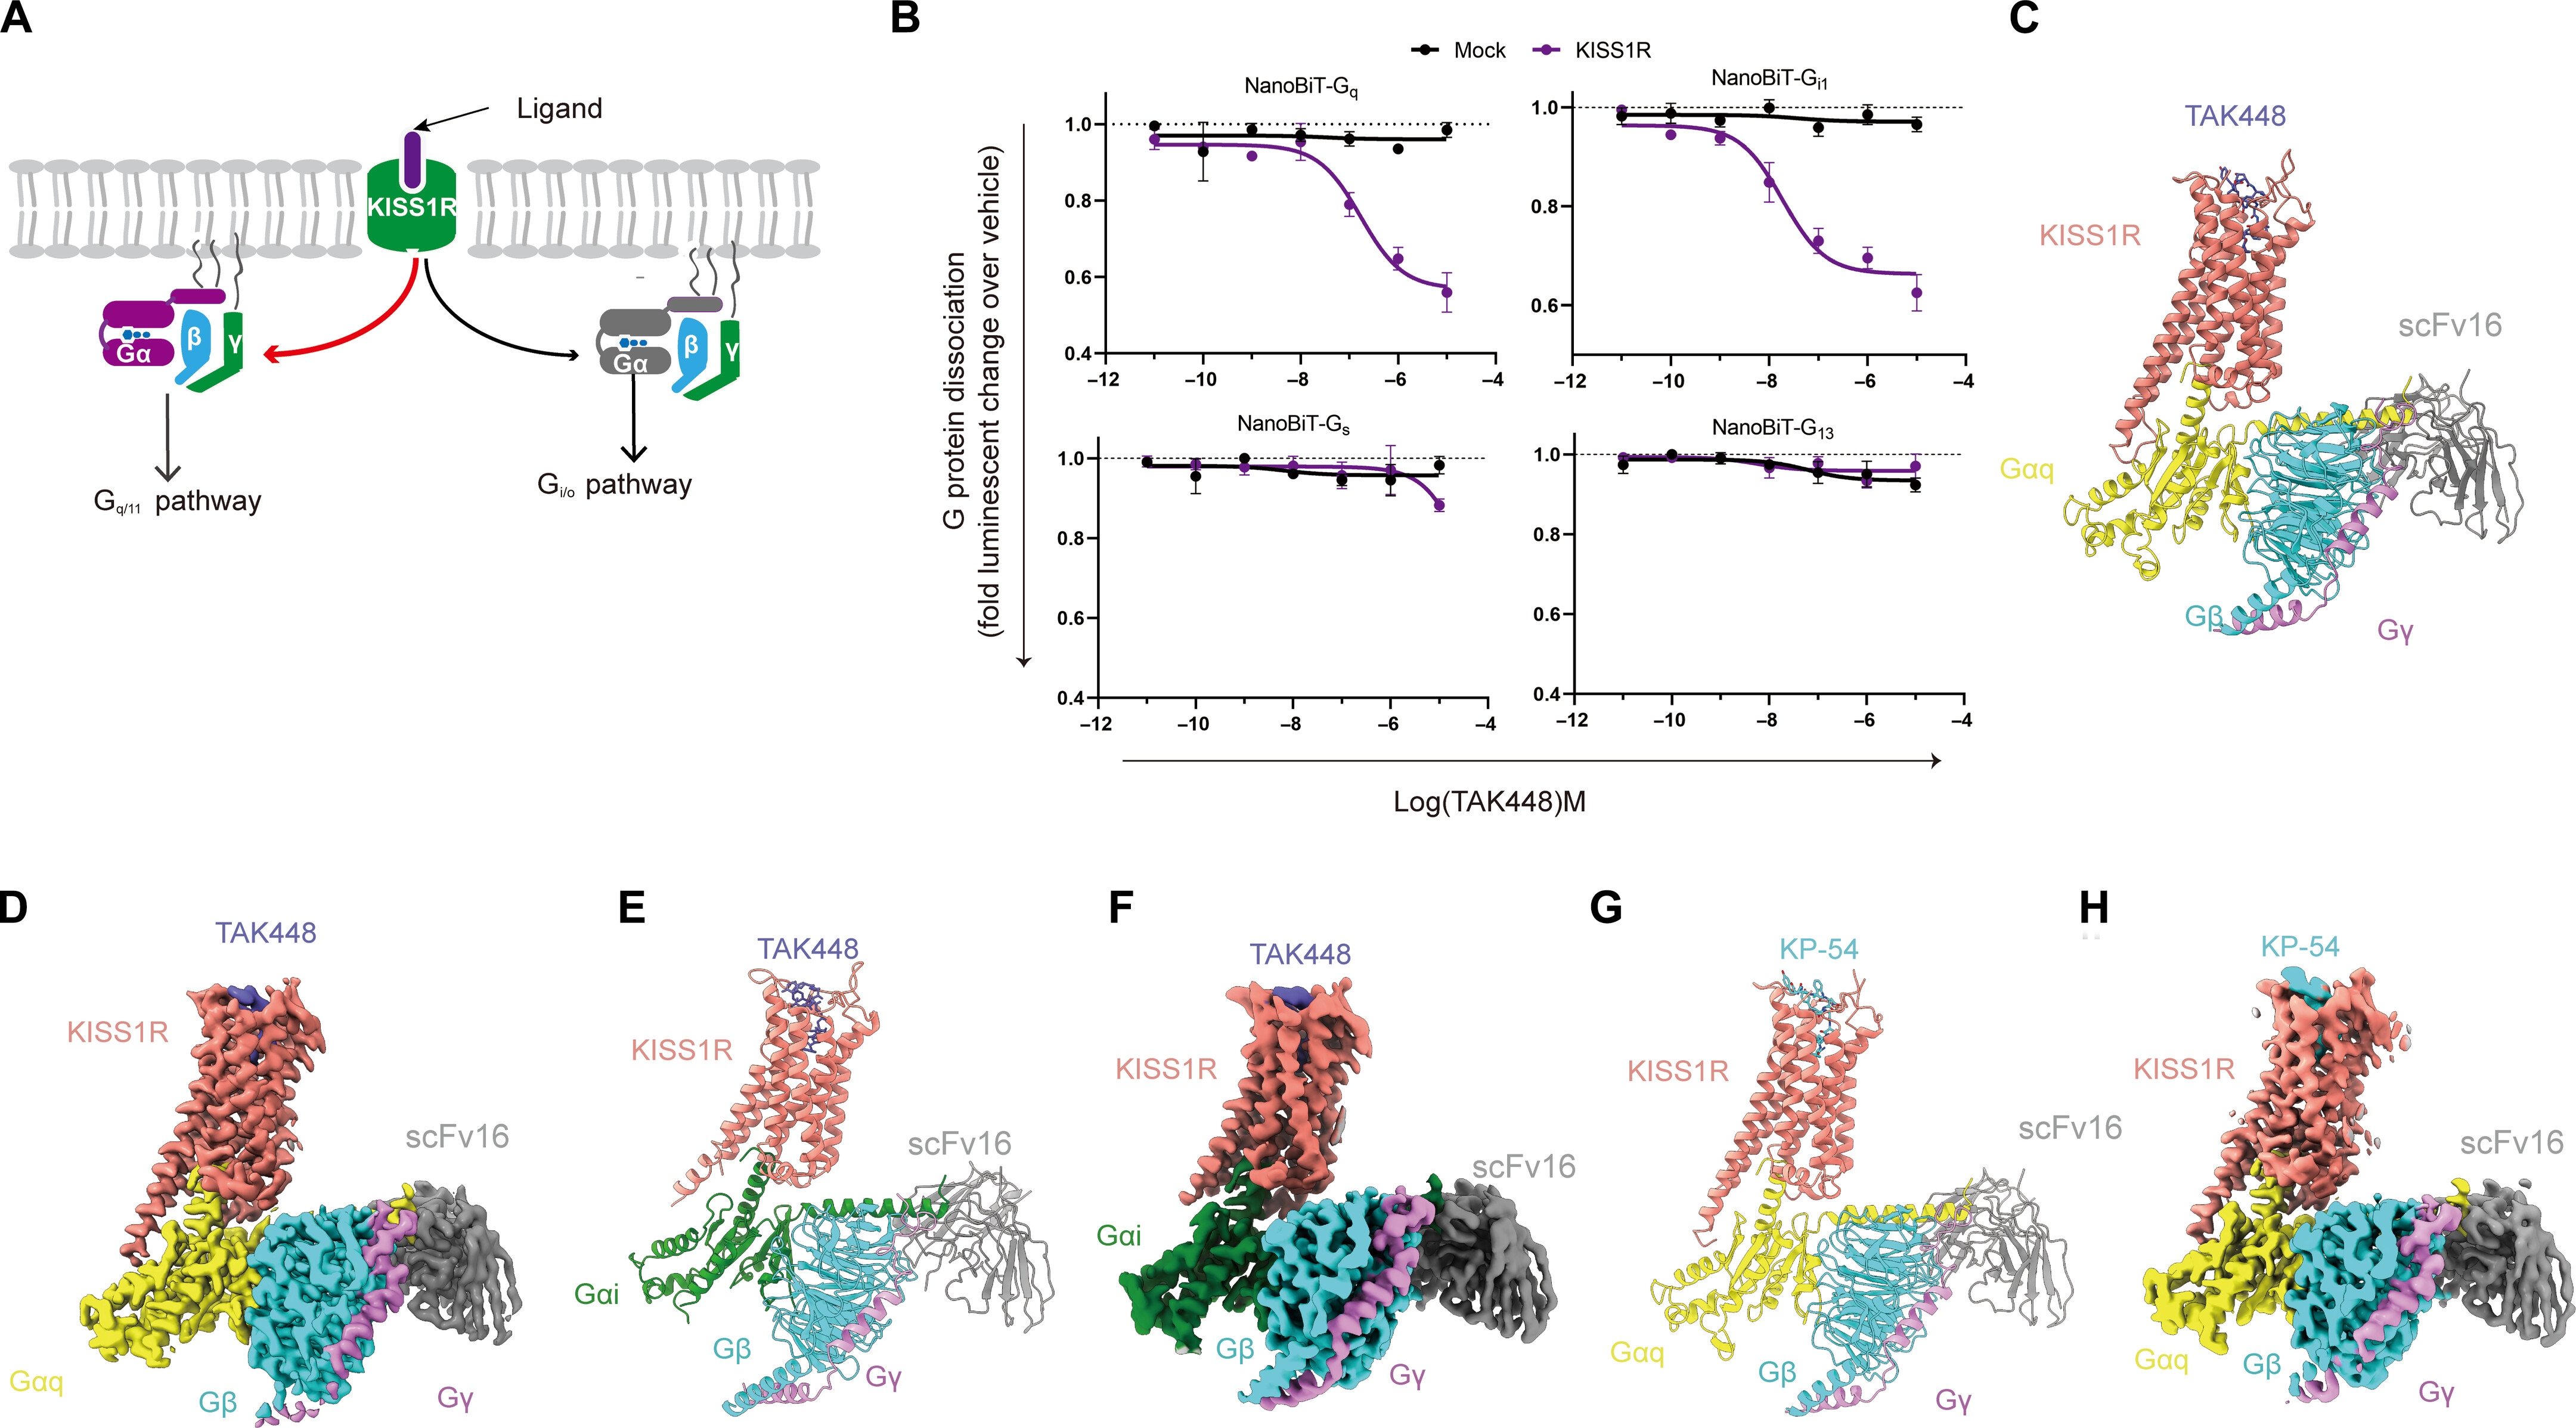
Abb. 1. In der zitierten Studie wurden Kryo-EM-Strukturen von KISS1R-G-Proteinkomplexen mit TAK448 und KP54 beschrieben.[2]
(A) Schematische Darstellung der in der Quellenstudie untersuchten KISS1R-G-Protein-Kopplung. (B) NanoBiT-G-Protein-Dissoziationstests für die angegebenen G-Protein-Mitglieder nach TAK448-Exposition. (CH) Kryo-EM-Modelle und Karten der Komplexe TAK448-KISS1R-Gq, TAK448-KISS1R-Gi und KP54-KISS1R-Gq. Experimentelle Bedingungen und statistische Details sind in der Originalveröffentlichung angegeben.[2]
Jenny Clarkson und Allan Herbison untersuchten die postnatale Entwicklung von Kisspeptin-Neuronenpopulationen und ihre Projektionen auf GnRH-Neuronen bei Mäusen. Mithilfe eines Antiserums gegen Maus-Kisspeptin-10 identifizierten sie Kisspeptin-immunreaktive Populationen in der anteroventralen periventrikulären/präoptischen periventrikulären Region, dem dorsomedialen Hypothalamus und dem Nucleus arcuatus. Die Autoren berichteten über einen deutlichen weiblich-dominanten Unterschied in der Anzahl von AVPV/PeN-Kisspeptin-Neuronen und beobachteten enge Appositionen zwischen Kisspeptin-Fasern und GnRH-Neuronenzellkörpern, die während der postnatalen Entwicklung entstehen. Diese Arbeit charakterisierte die endogene neuronale Expression und Entwicklung und nicht die Auswirkungen eines von außen zugeführten KP-10-Materials.[3]
Alexander S. Kauffman und Kollegen verwendeten erwachsene Wildtyp-Mäuse (WT) und GPR54/KISS1R-Knockout-Mäuse (KO), um die Rolle der Kisspeptin-Rezeptor-Signalisierung bei sexuell dimorphem Verhalten und neuronaler Entwicklung zu untersuchen. Hormon-ersetzte GPR54-KO-Männchen und -Frauen behielten ihr geschlechtstypisches Kopulationsverhalten bei, während Unterschiede in der Präferenz für olfaktorische Partner und in mehreren sexuell dimorphen neuronalen Merkmalen beobachtet wurden. Die Autoren kamen zu dem Schluss, dass die GPR54-Signalisierung für das Kopulationsverhalten von Erwachsenen unter den verwendeten Hormonersatzbedingungen nicht erforderlich war, aber an der Entwicklung ausgewählter sexuell dimorpher Merkmale beteiligt war.[4]
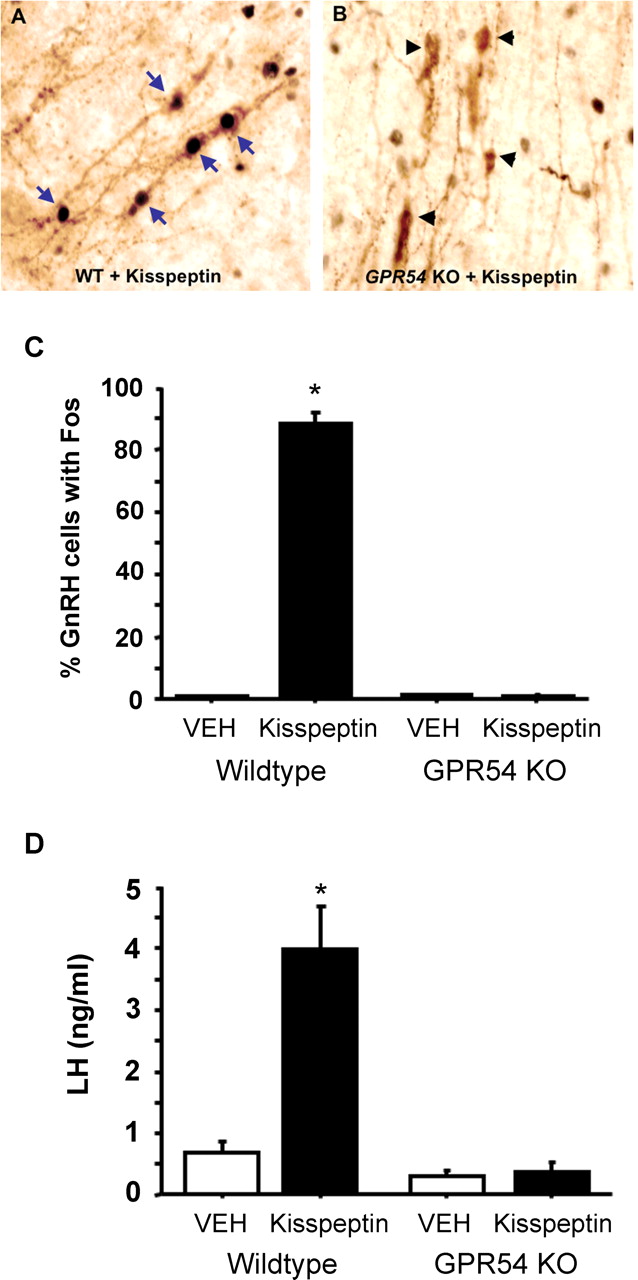
Abb. 2. GnRH-Neuron-Fos-Immunreaktivität und Plasma-LH-Messungen nach intrazerebroventrikulärer Kisspeptin-Exposition bei männlichen WT- und GPR54-KO-Mäusen.[4]
*p < 0,05 im Vergleich zur mit Vehikel behandelten WT-Gruppe, wie in der ursprünglichen Studie berichtet.[4]
Oscar González-Flores und Kollegen untersuchten die intrazerebroventrikuläre Kisspeptin-Exposition bei ovarektomierten Ratten, die mit Östradiolbenzoat grundiert wurden. Die Autoren maßen den Lordosequotienten und die Intensität des Lordosereflexes und verwendeten dann den KISS1R-Antagonisten Kiss-234, den Progesteronrezeptorantagonisten RU486 und den GnRH-1-Rezeptorantagonistenantagonisten, um die Rezeptorbeteiligung zu untersuchen. Die Kisspeptin-Exposition war im Rattenmodell mit höheren Lordosewerten verbunden, während die Vorbehandlung mit Antagonisten die Reaktion zu ausgewählten Zeitpunkten reduzierte. Die Ergebnisse unterstützten die Beteiligung von KISS1R-, Progesteron-Rezeptor- und GnRH-Rezeptor-Signalen unter den Bedingungen der Studie.[5]
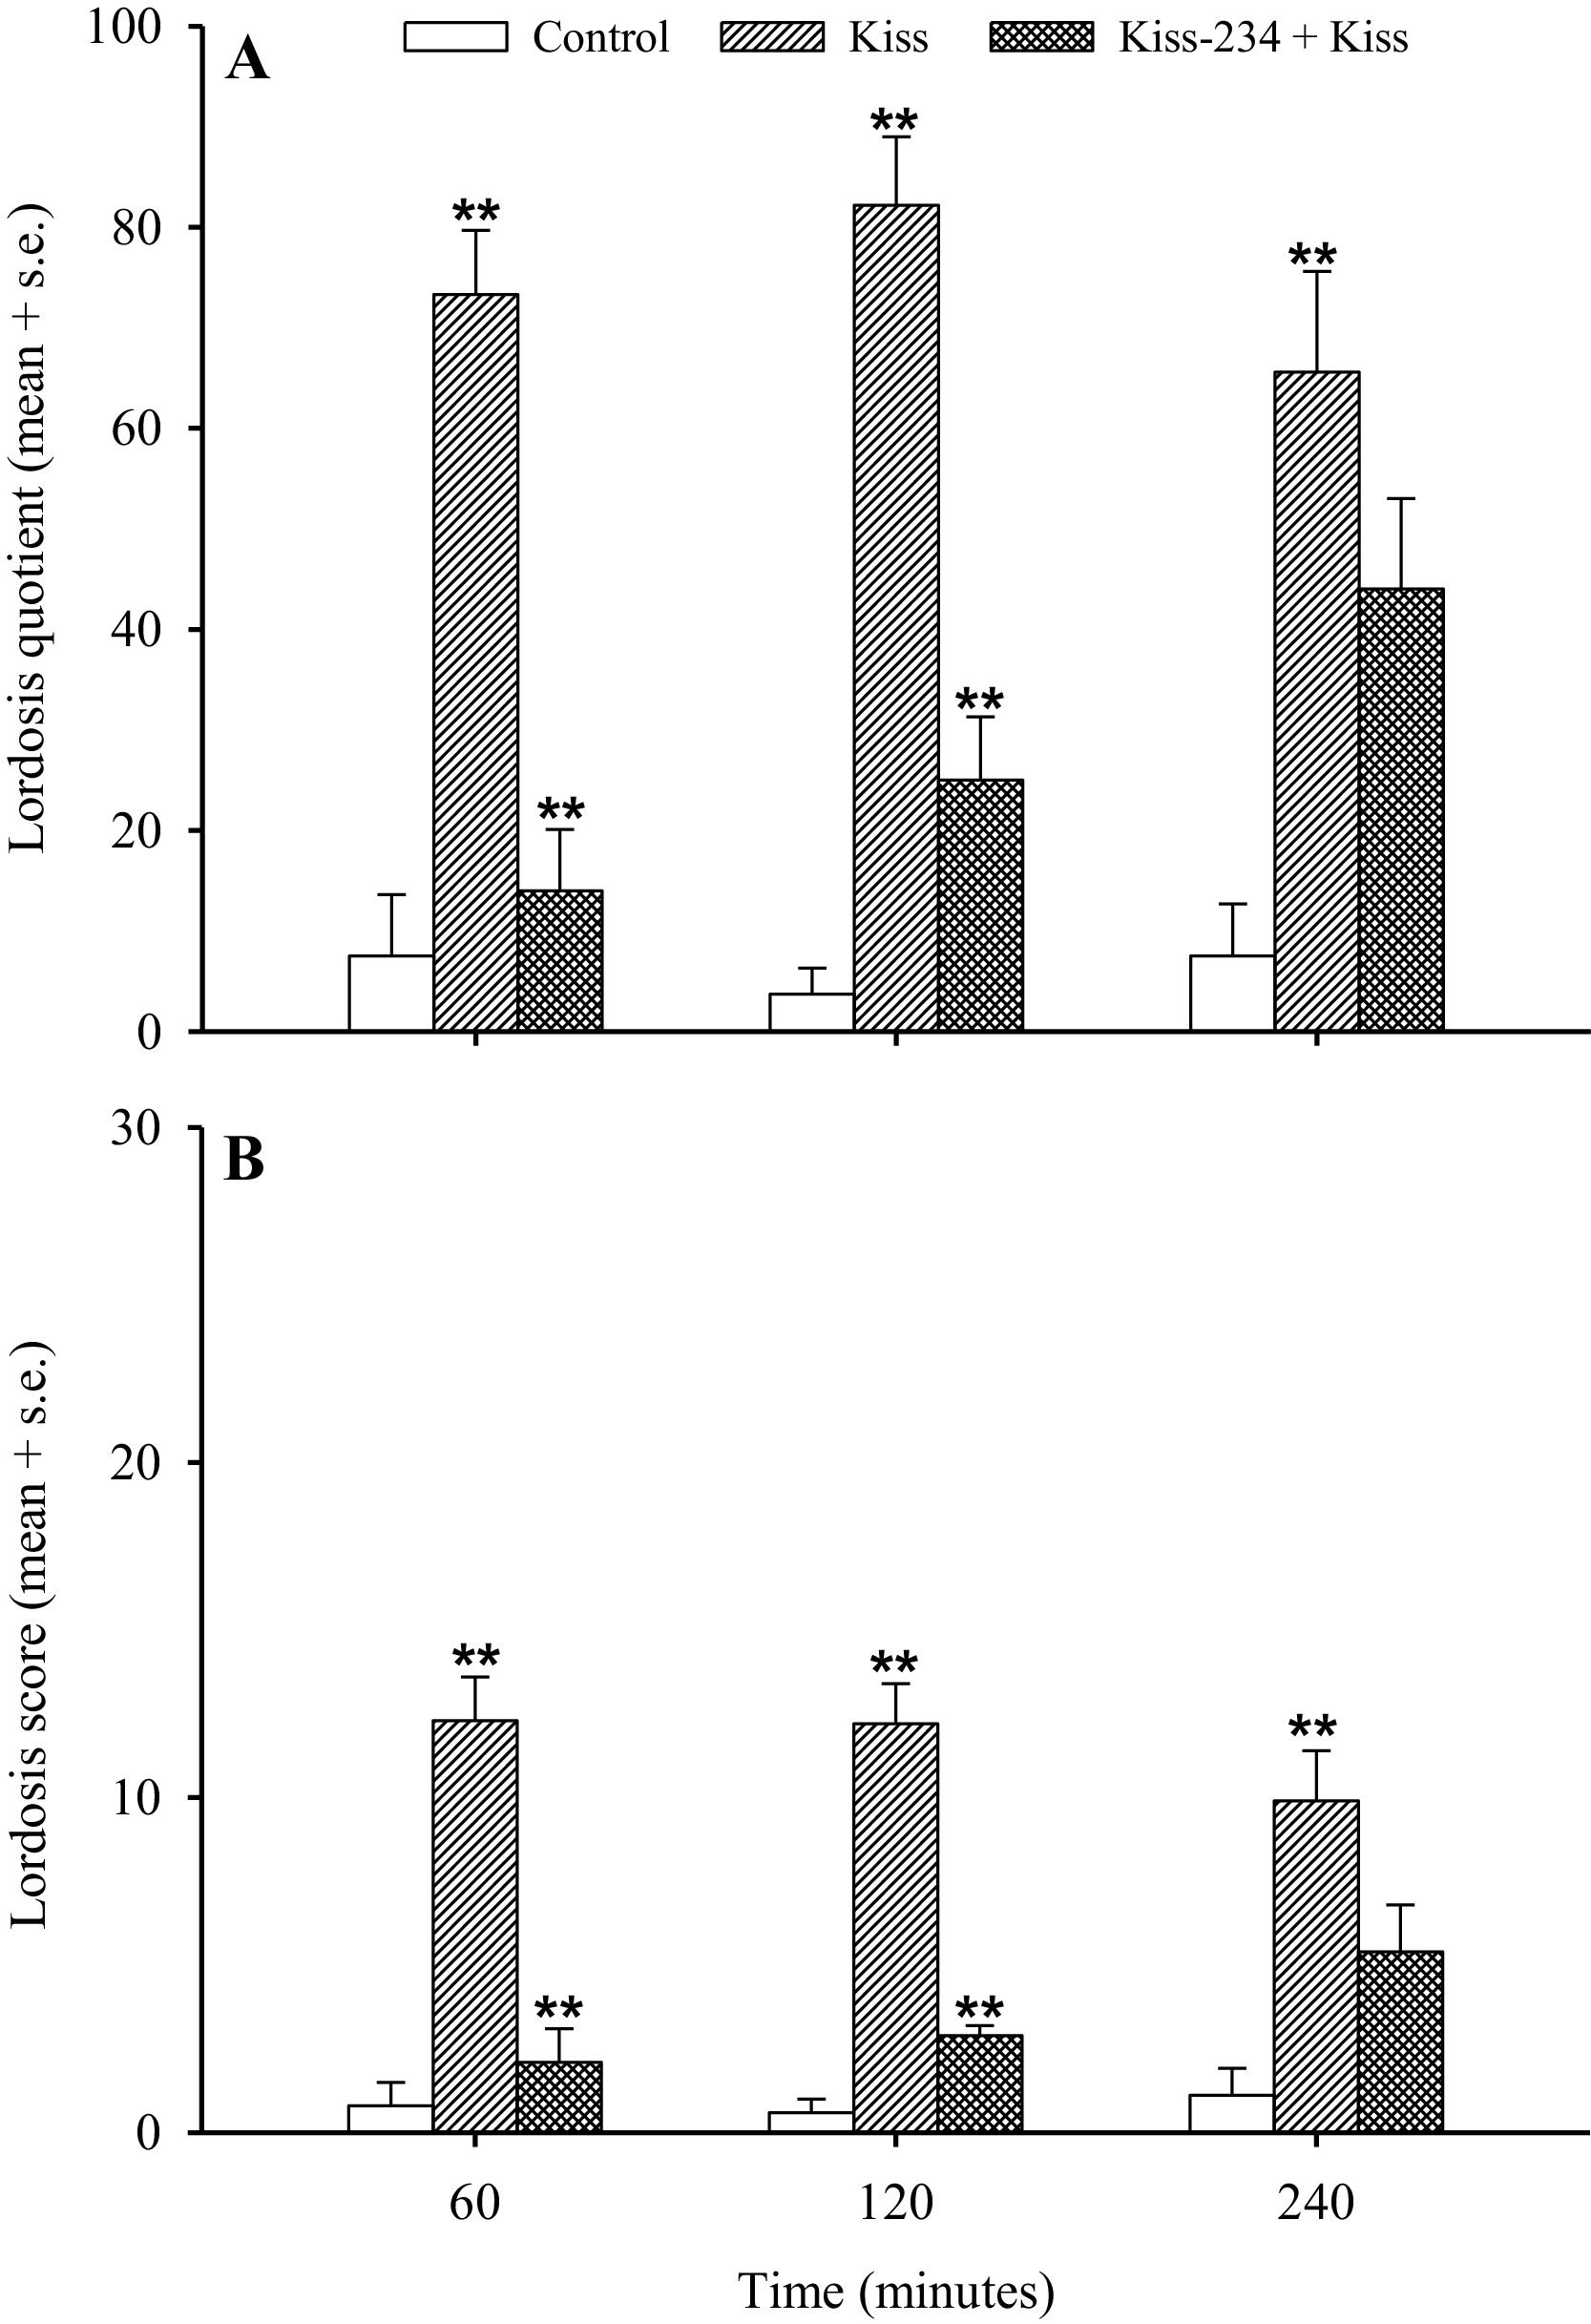
Abb.3. Lordosemessungen wurden nach Kisspeptin-Exposition mit oder ohne den KISS1R-Antagonisten Kiss-234 bei ovarektomierten Ratten gemeldet.[5]
In der Quellenstudie wurden Kisspeptin- und Kontrollgruppen verglichen und die Wirkung der Kiss-234-Vorbehandlung auf den Lordosequotienten und die Intensität des Lordosereflexes bewertet. Gruppengrößen, Studiendosen, Zeitpunkte und statistische Vergleiche werden in der Originalveröffentlichung angegeben.[5]
Suvi T. Ruohonen und Kollegen erzeugten Mäuse mit oozytenselektiver Deletion von Gpr54/Kiss1r, indem sie eine Gdf9-Cre-Linie mit einer Gpr54-LoxP-Linie kreuzten. Die resultierenden OoGpr54-/-Mäuse wurden über mehrere postnatale Alter hinweg phänotypischen, histologischen, hormonellen und molekularen Analysen unterzogen. Die Autoren berichteten über einen normalen Pubertätsbeginn, aber mit zunehmendem Alter fortschreitendes Ovulationsversagen, einschließlich histologischer Veränderungen und veränderter Genexpressionsprofile der Eierstöcke. Da in dieser Studie die Deletion des Rezeptors anstelle der Verabreichung eines Kisspeptin-Peptids verwendet wurde, betreffen ihre Ergebnisse die biologische Rolle der KISS1R-Signalübertragung in den Eierstöcken und stellen keine direkte KP-10-Expositionsstudie dar.[6]
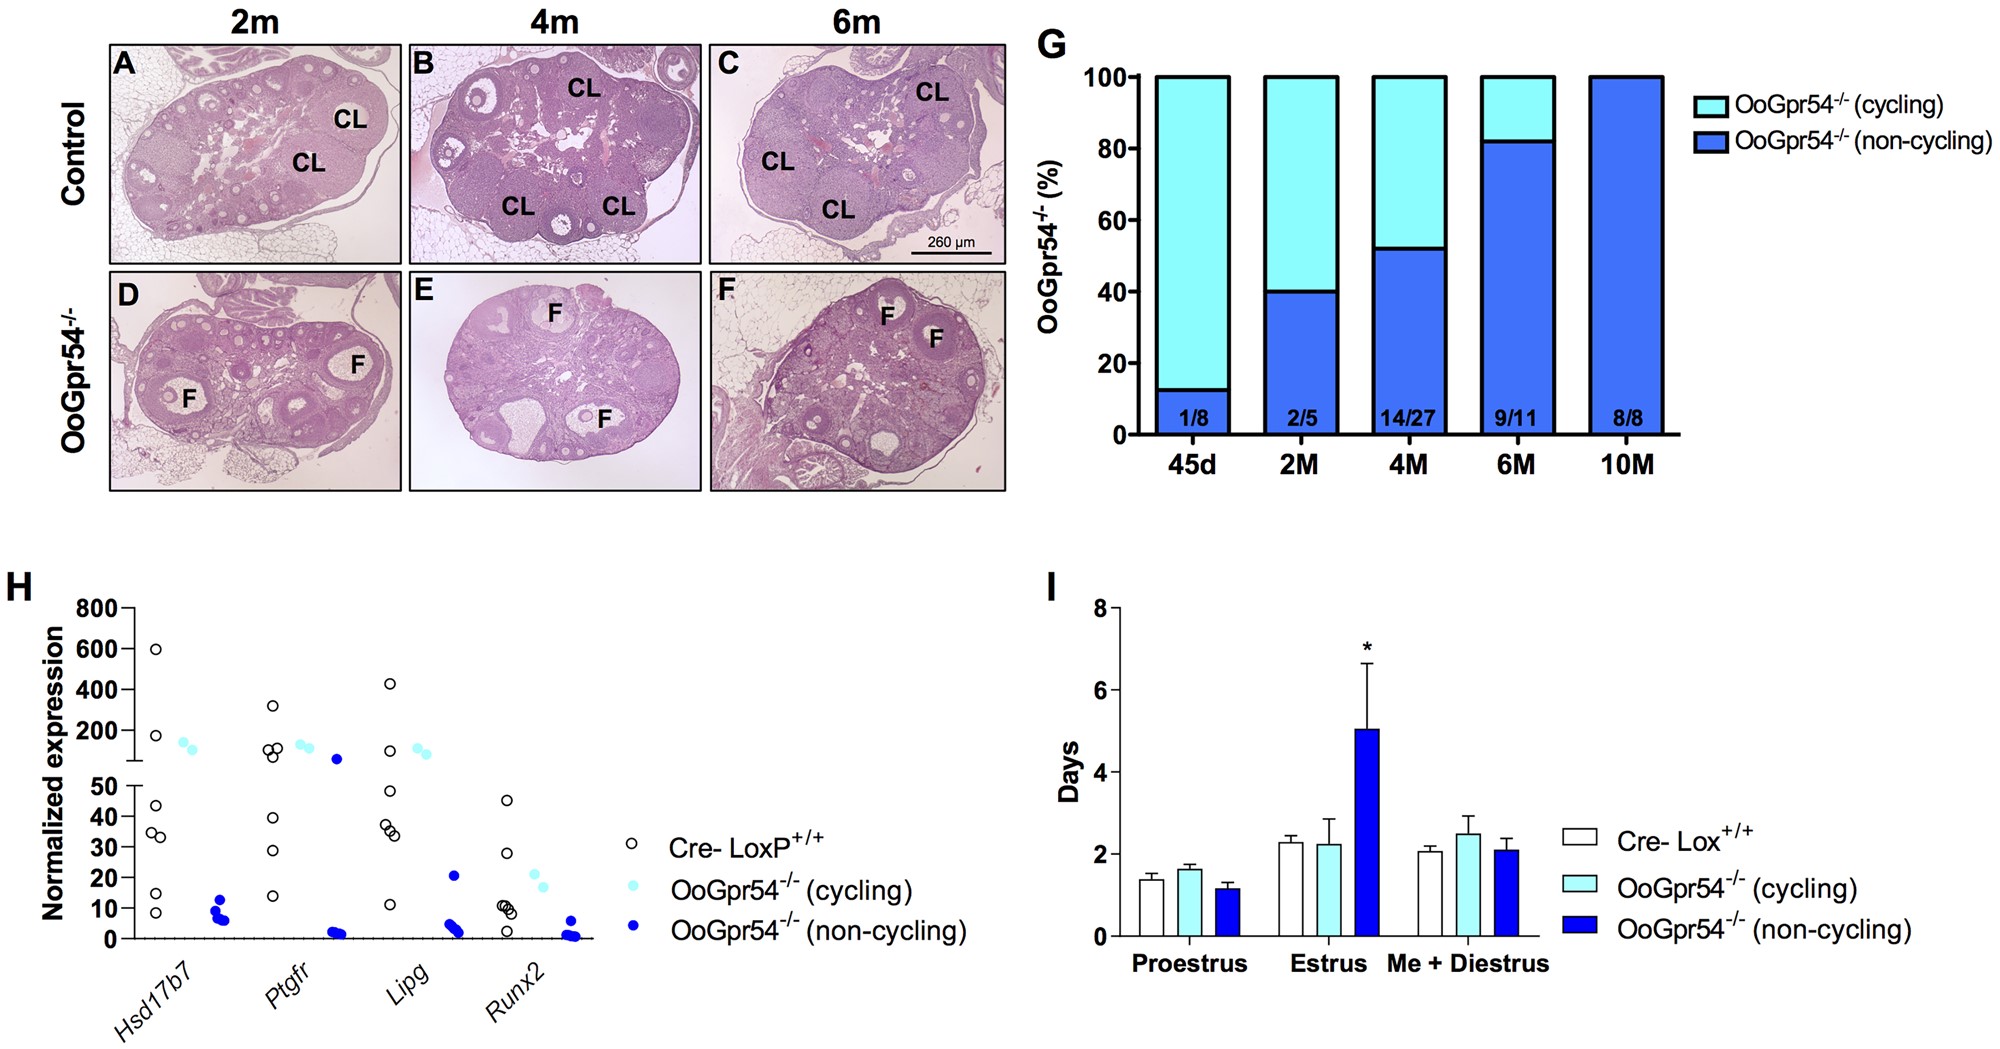
Abb. 4. Progressive ovulatorische Veränderungen wurden bei Mäusen mit oozytenselektiver Gpr54/Kiss1r-Deletion berichtet.[6]
Panels (AF) zeigen repräsentative Eierstockhistologie von Kontroll- und OoGpr54-/-Mäusen im angegebenen Alter. Panel (G) fasst den Anteil der OoGpr54-/−-Weibchen ohne Corpora lutea zusammen, Panel (H) präsentiert ausgewählte RNA-Sequenzierungsergebnisse und Panel (I) zeigt Brunstzyklusmessungen. Gruppengrößen und statistische Methoden werden in der Originalveröffentlichung angegeben.[6]
Forschungsbeschränkungen
Die oben zusammengefassten Studien bewerten nicht alle die gleiche molekulare Form von Kisspeptin. Der KISS1-Vorläufer kann zu mehreren bioaktiven Peptiden verarbeitet werden, darunter KP54, KP14, KP13 und KP10, die das gleiche C-terminale Decapeptid haben, sich jedoch in Länge und pharmakokinetischem Verhalten unterscheiden. Die Wu-Studie verwendete KP54 und TAK448, während andere zitierte Arbeiten endogene Kisspeptin-Signalisierung, Rezeptor-Knockout-Modelle oder Kisspeptin-Präparate untersuchten, die nicht als direkte Vergleiche mit einem kommerziellen KP-10-Forschungsmaterial konzipiert waren.[2,3,4,6,7]
KISS1R ist ein Protein-gekoppelter Rezeptor der Klasse AG und vor allem für die Gq/11-Signalübertragung bekannt, obwohl neuere strukturelle und funktionelle Arbeiten auch die Kopplung an Gi/o unter bestimmten experimentellen Bedingungen unterstützen.[2] Unterschiede in der Peptidisoform, der Rezeptorexpression, der Spezies, dem Gewebekontext, dem Expositionsweg und dem Versuchsaufbau können die beobachtete Reaktion beeinflussen. Ergebnisse aus Maus- und Rattenmodellen sollten daher an das genaue Peptid, das Rezeptormodell und die experimentellen Bedingungen gebunden bleiben, die in jeder Veröffentlichung beschrieben werden.[2,7]
COCER Peptides präsentiert Kisspeptin-10 ausschließlich für Laborforschung und analytische Zwecke. Es ist nicht für den menschlichen oder veterinärmedizinischen Gebrauch bestimmt. Die oben beschriebene Forschung fasst Ergebnisse aus Veröffentlichungen Dritter zusammen und stellt keine Aussage über klinische Wirksamkeit, Sicherheit, Diagnose, Behandlung, Prävention oder Gebrauchsanweisung dar.


