

|
1kits (10 frascos)
| Quantidade: | |
|---|---|
▎ da Kisspeptina Estrutura
Fonte: PubChem |
Sequência:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF Fórmula molecular: C 258H 401N 79O78 Peso molecular: 5857 g/mol CID da PubChem:71306396 Sinônimos: Proteína KISS-1 ; Kisseptinas |
▎ sobre Kisspeptina Pesquisa
Fundo molecular
Kisspeptina-10 (KP-10) é um fragmento C-terminal de 10 aminoácidos do precursor da kisspeptina derivado do KISS1. Sua sequência de aminoácidos é Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2) e se liga ao receptor acoplado à proteína G KISS1R. PubChem lista Kisspeptina-10 humana sob CID 25240297, com a fórmula molecular C63H83N17O14 e um peso molecular de aproximadamente 1302,4 g/mol.[1,8]
Progresso da pesquisa
Zhangsong Wu e colegas determinaram estruturas crio-EM dos complexos KISS1R-Gq e KISS1R-Gi ligados ao agonista sintético TAK448, juntamente com um complexo KISS1R-Gq ligado ao KP54 endógeno. Ensaios funcionais no mesmo estudo indicaram que o KISS1R pode se acoplar à via Gi/o além da via Gq/11 estabelecida. Os autores relataram diferenças estruturais nas alças extracelulares e intracelulares do receptor e na interface da subunidade Gα que podem contribuir para a seletividade do acoplamento da proteína G. Este estudo estrutural utilizou KP54 e TAK448 em vez de KP-10 como ligantes ligados.[2]
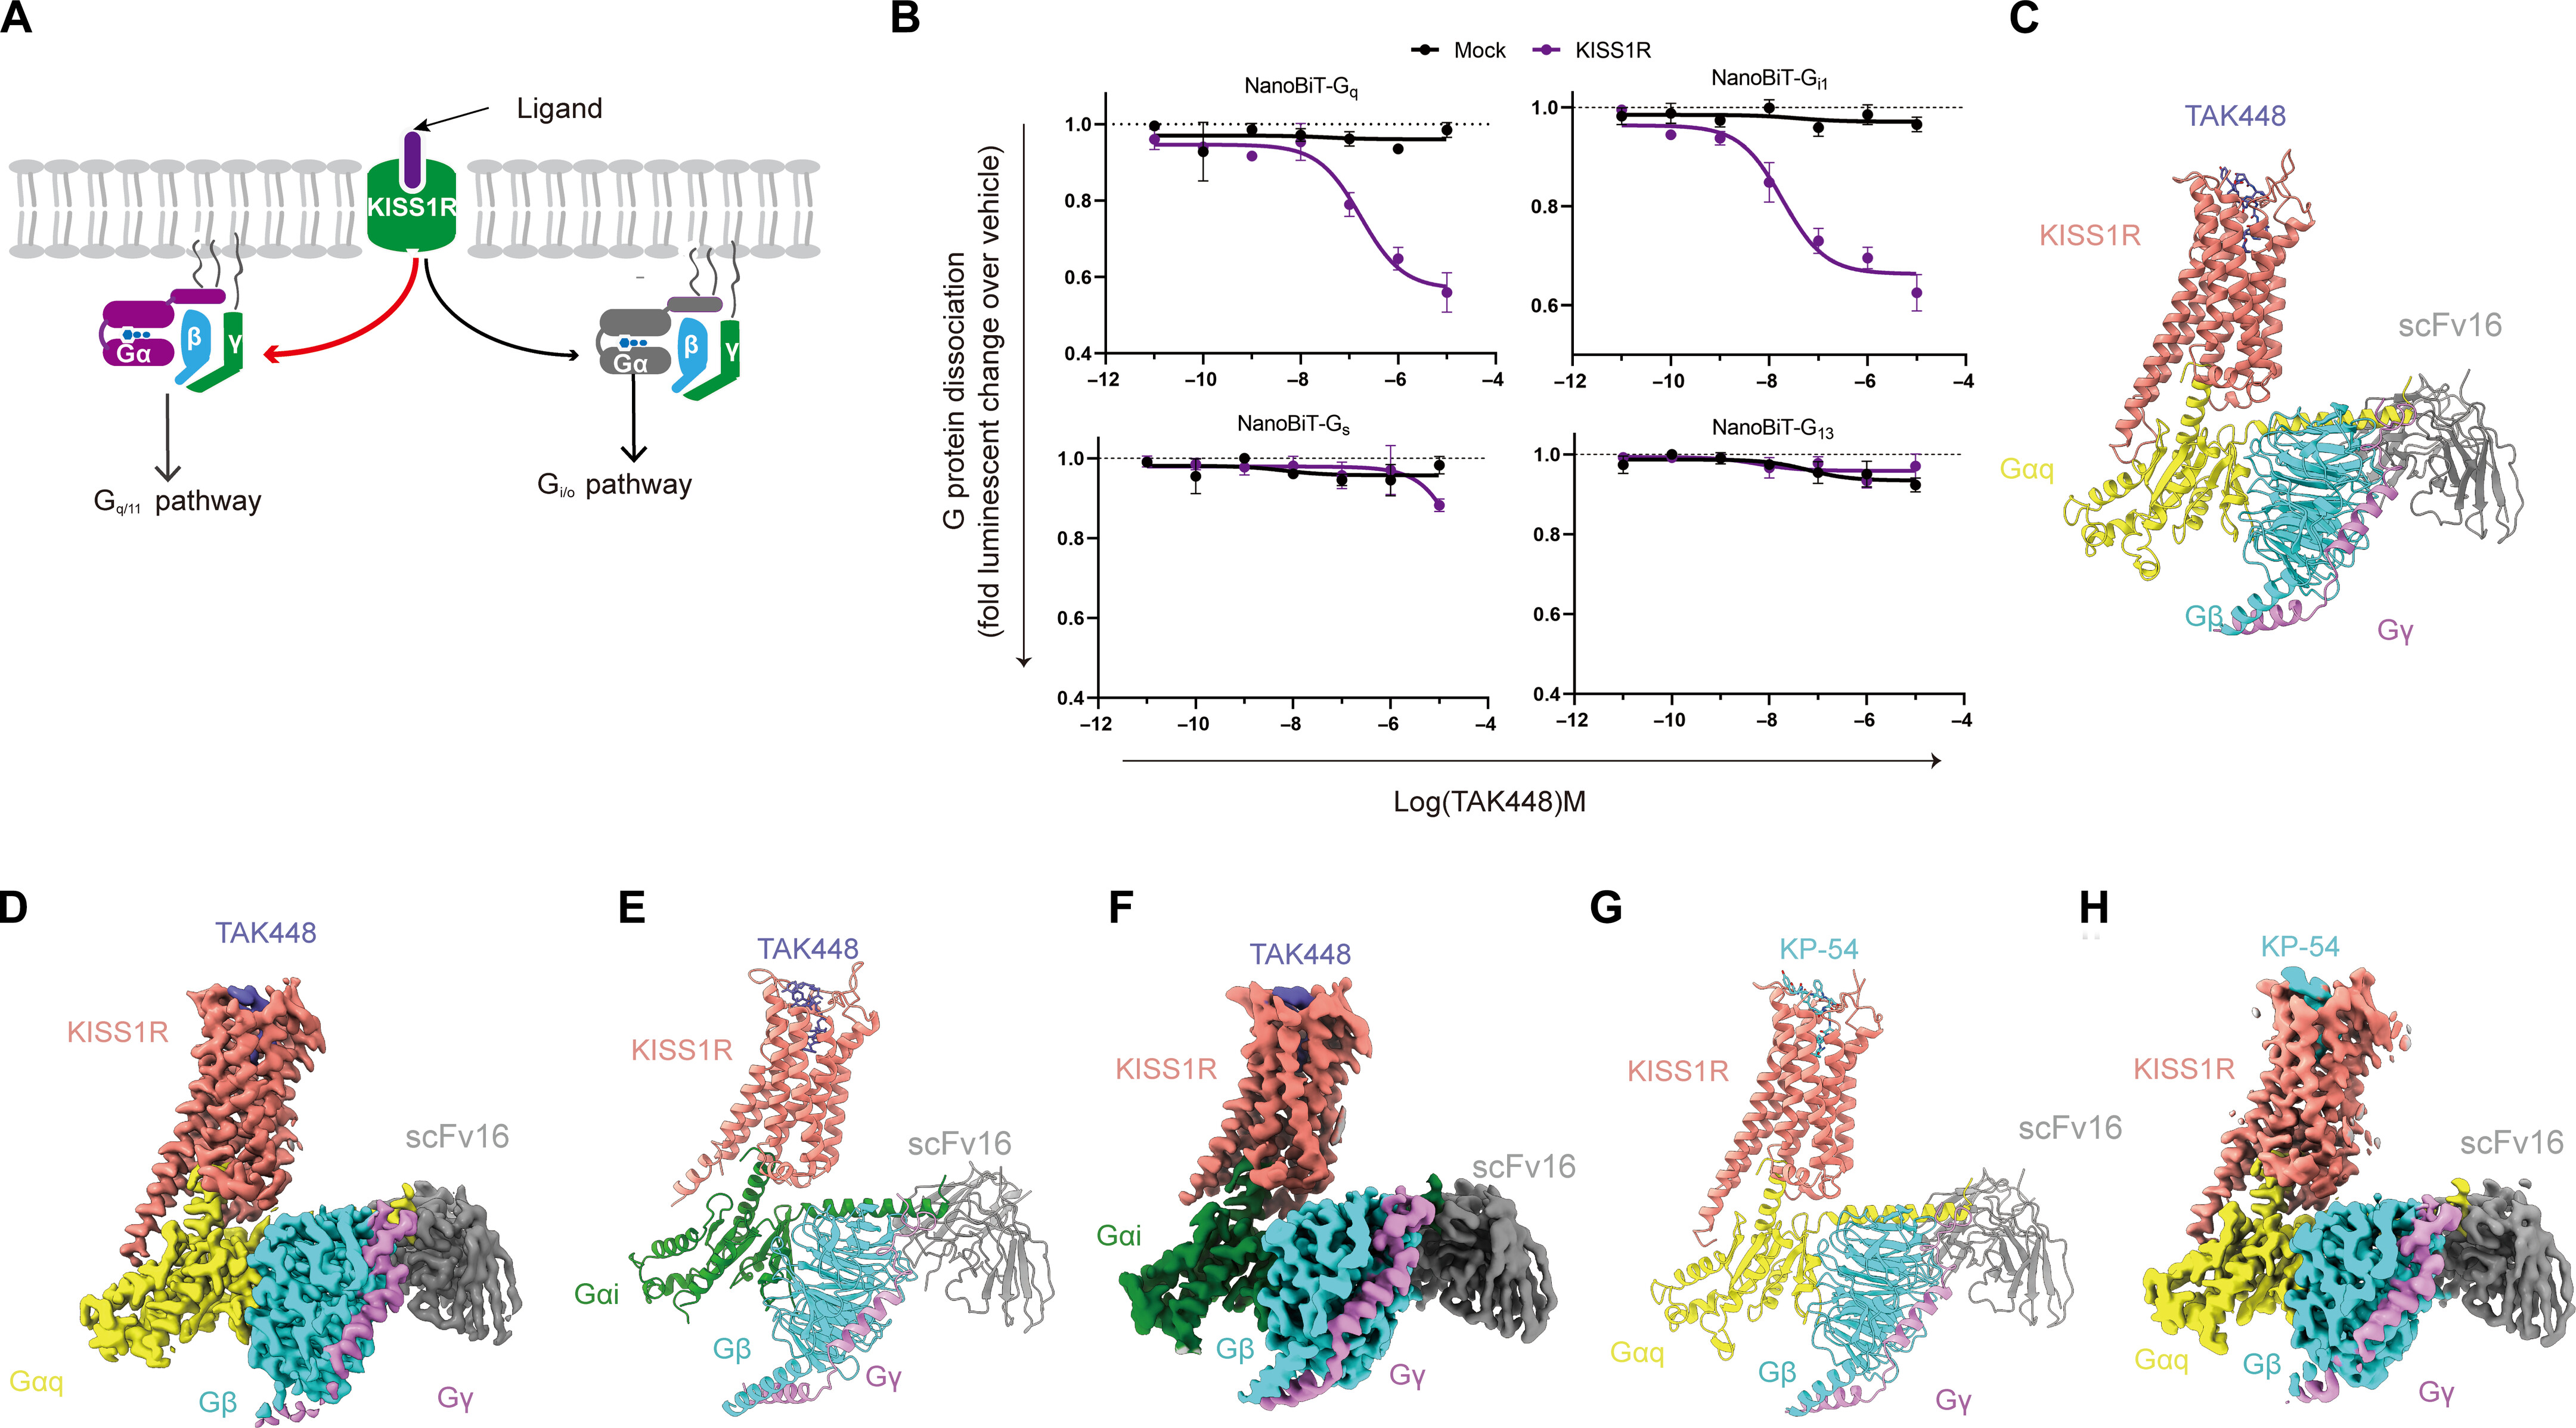
Figura 1. Estruturas Cryo-EM de complexos de proteínas KISS1R-G relatadas com TAK448 e KP54 no estudo citado.[2]
(A) Representação esquemática do acoplamento da proteína G KISS1R examinado no estudo de origem. (B) Ensaios de dissociação da proteína G NanoBiT para os membros da proteína G indicados após exposição ao TAK448. (CH) Modelos Cryo-EM e mapas dos complexos TAK448-KISS1R-Gq, TAK448-KISS1R-Gi e KP54-KISS1R-Gq. As condições experimentais e os detalhes estatísticos são relatados na publicação original.[2]
Jenny Clarkson e Allan Herbison estudaram o desenvolvimento pós-natal de populações de neurônios de kisspeptina e suas projeções para neurônios GnRH em camundongos. Usando um anti-soro criado contra a Kisspeptina-10 de camundongo, eles identificaram populações imunorreativas à Kisspeptina na região periventricular anteroventral/periventricular pré-óptica, no hipotálamo dorsomedial e no núcleo arqueado. Os autores relataram uma diferença marcante entre mulheres dominantes no número de neurônios de kisspeptina AVPV / PeN e observaram aposições estreitas entre fibras de kisspeptina e corpos celulares de neurônios GnRH emergentes durante o desenvolvimento pós-natal. Este trabalho caracterizou a expressão e o desenvolvimento neuronal endógeno, em vez dos efeitos de um material KP-10 fornecido externamente.[3]
Alexander S. Kauffman e colegas usaram camundongos adultos de tipo selvagem (WT) e knockout GPR54 / KISS1R (KO) para examinar o papel da sinalização do receptor de kisspeptina no comportamento sexualmente dimórfico e no desenvolvimento neural. Homens e mulheres GPR54 KO com reposição hormonal mantiveram o comportamento copulatório típico do sexo, enquanto diferenças foram observadas na preferência do parceiro olfativo e em vários traços neurais sexualmente dimórficos. Os autores concluíram que a sinalização GPR54 não era necessária para o comportamento copulatório adulto sob as condições de reposição hormonal utilizadas, mas estava envolvida no desenvolvimento de características sexualmente dimórficas selecionadas.[4]
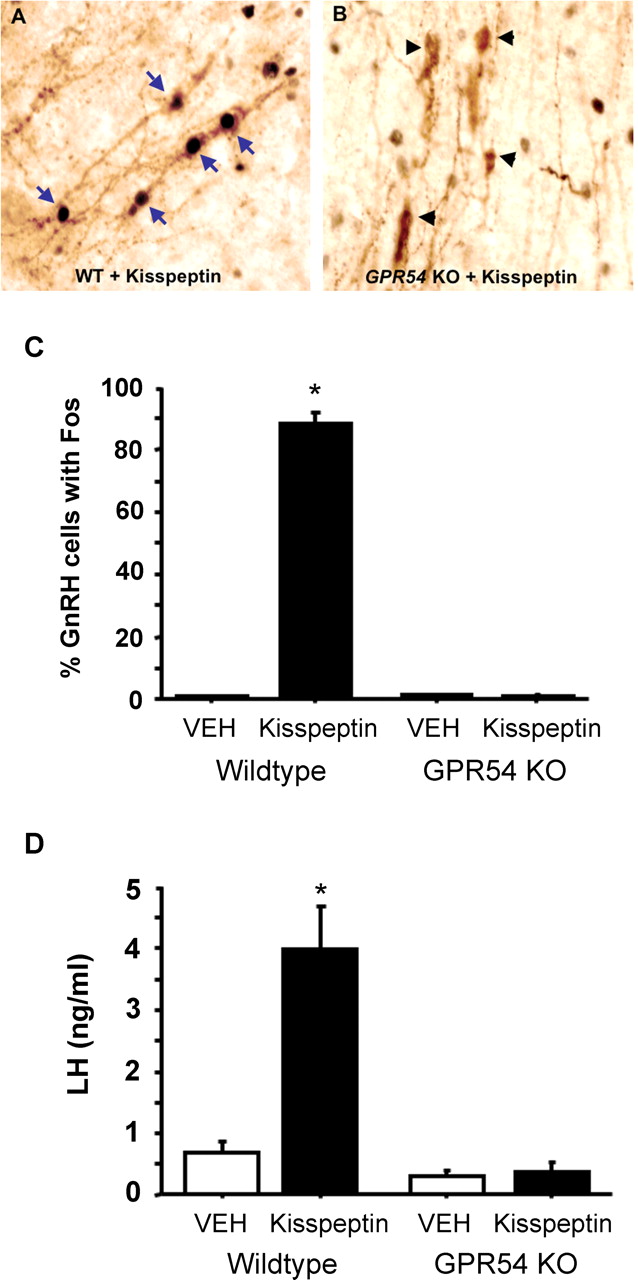
Figura 2. Imunorreatividade Fos do neurônio GnRH e medições de LH plasmático relatadas após exposição intracerebroventricular à kisspeptina em camundongos machos WT e GPR54 KO.[4]
*p < 0,05 versus grupo WT tratado com veículo, conforme relatado no estudo original.[4]
Oscar González-Flores e colegas examinaram a exposição intracerebroventricular à kisspeptina em ratas ovariectomizadas preparadas com benzoato de estradiol. Os autores mediram o quociente de lordose e a intensidade do reflexo de lordose e então usaram o antagonista KISS1R Kiss-234, o antagonista do receptor de progesterona RU486 e o antide antagonista do receptor GnRH-1 para examinar o envolvimento do receptor. A exposição à Kisspeptina foi associada a medidas de lordose mais elevadas no modelo de rato, enquanto o pré-tratamento com antagonistas reduziu a resposta em momentos selecionados. As descobertas apoiaram o envolvimento do KISS1R, do receptor de progesterona e da sinalização do receptor de GnRH nas condições do estudo.[5]
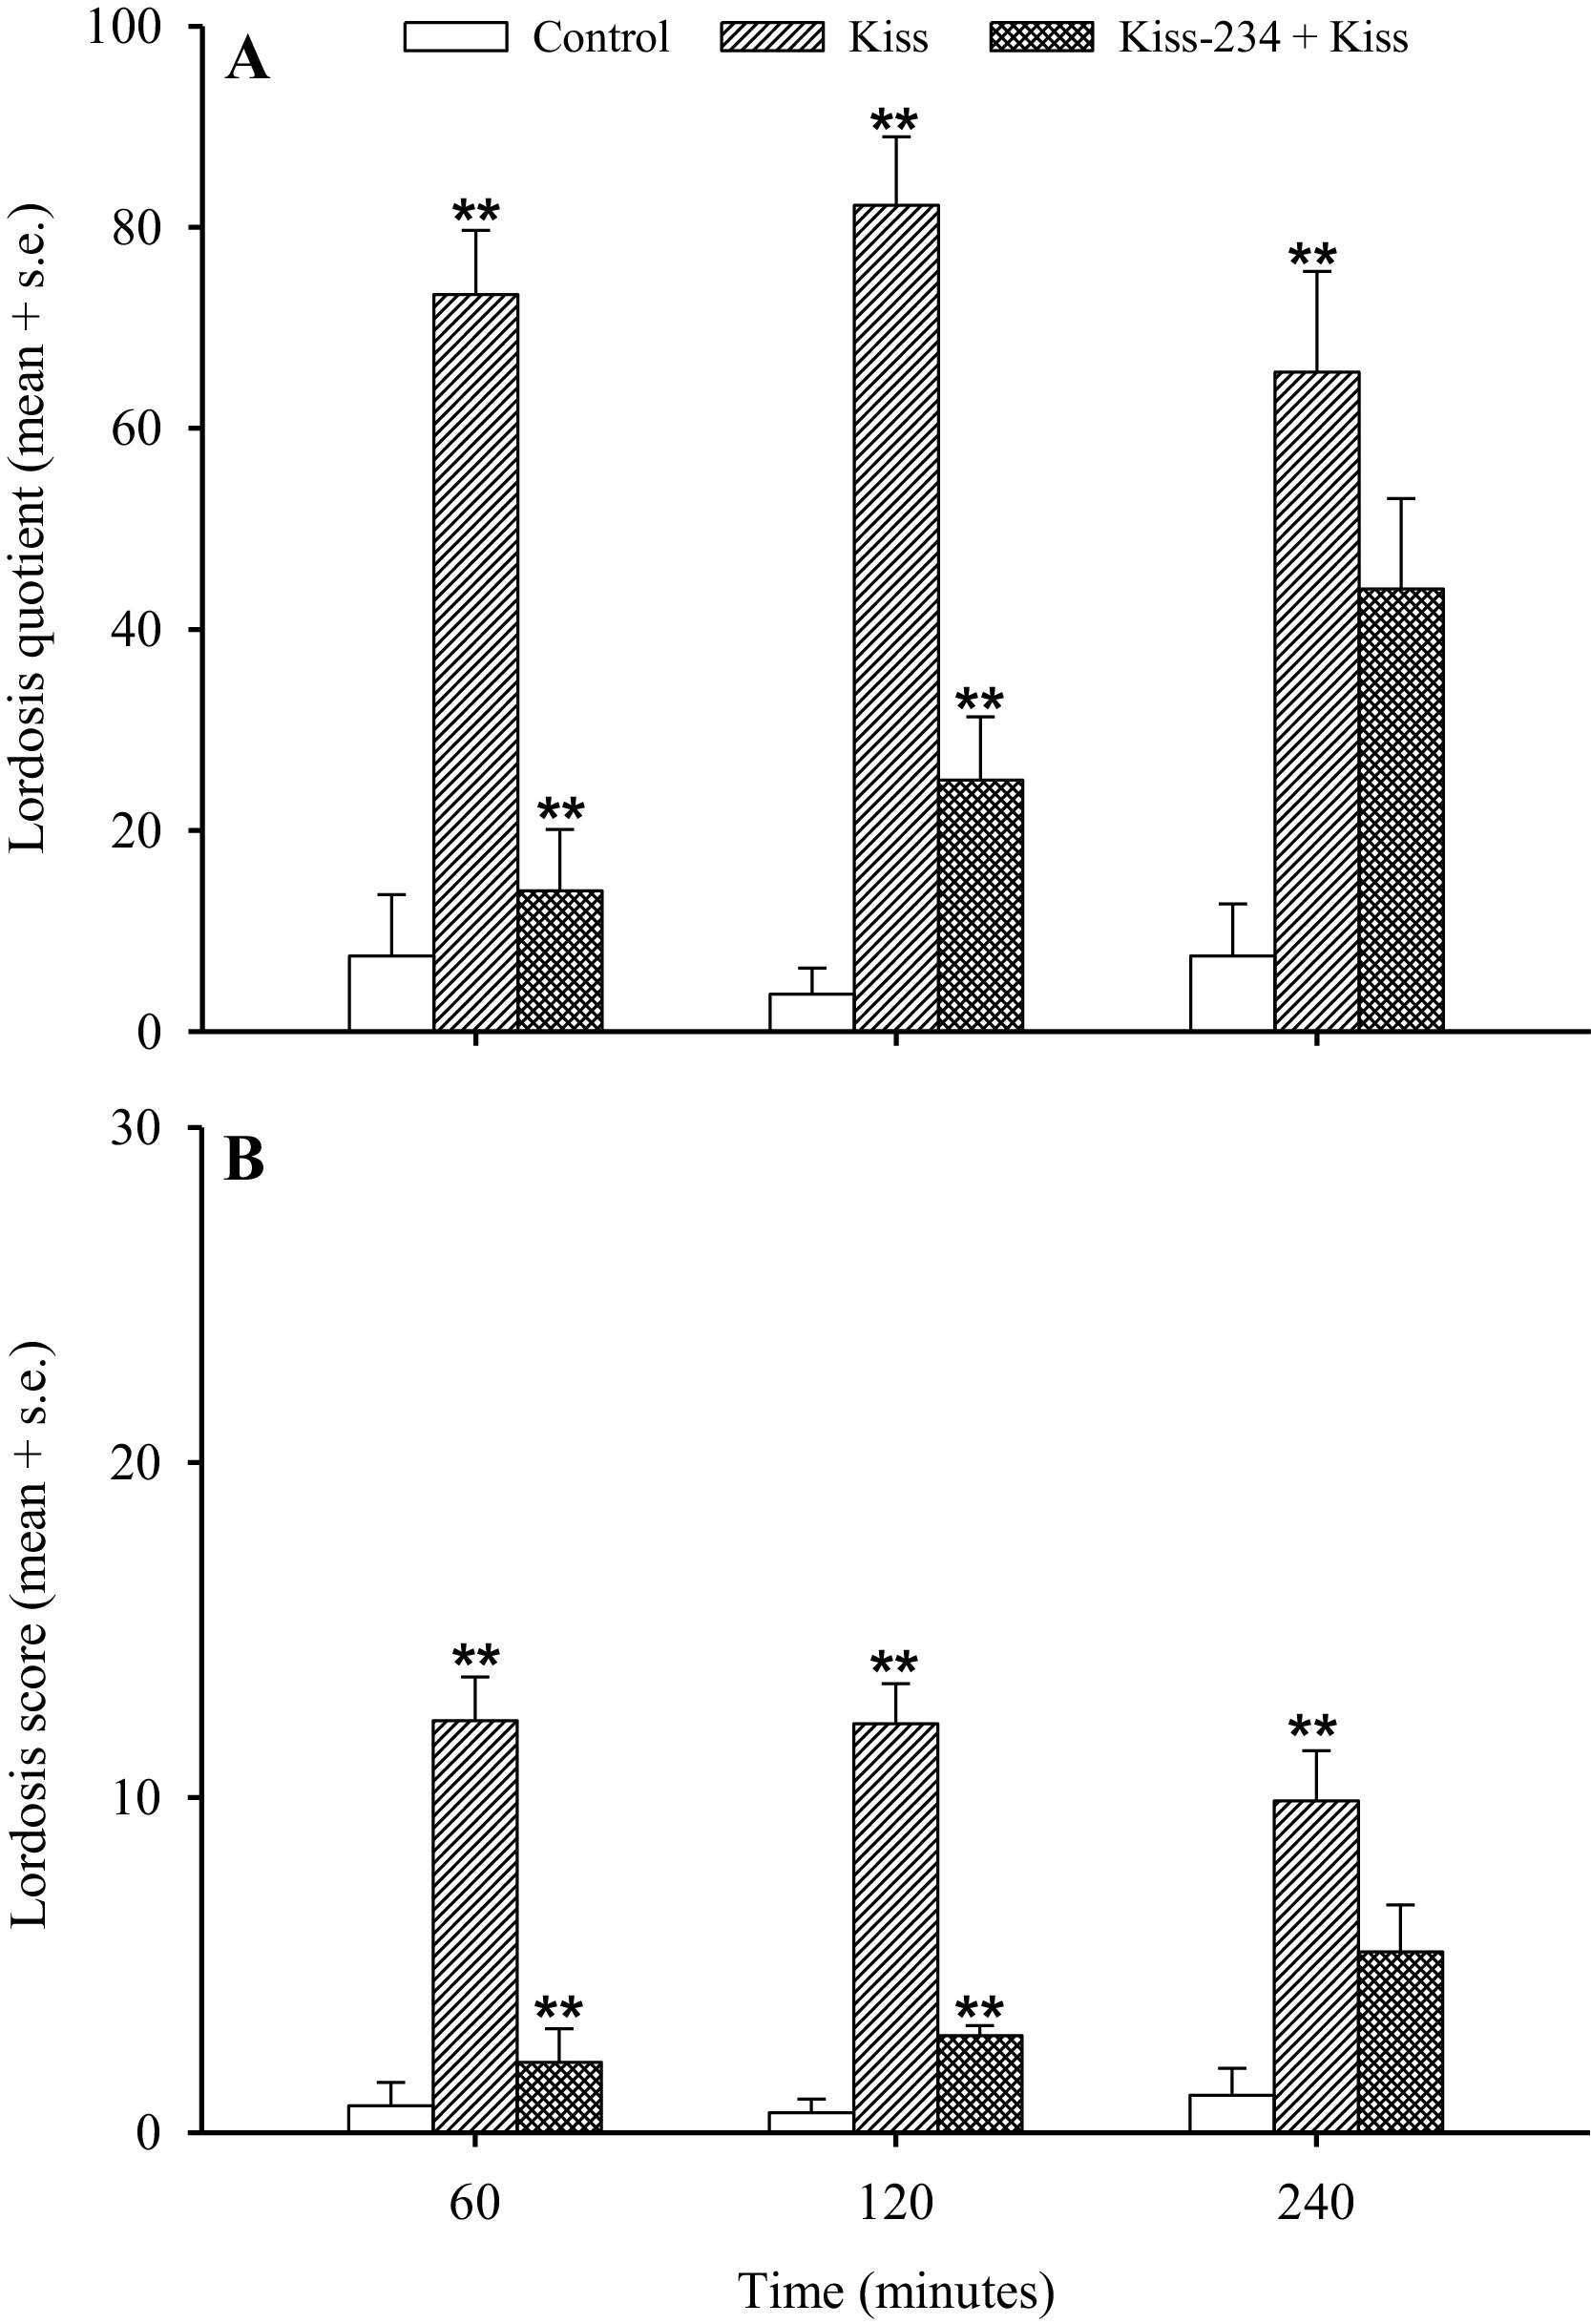
Fig3. Medições de lordose relatadas após exposição à kisspeptina com ou sem o antagonista do KISS1R Kiss-234 em ratas ovariectomizadas.[5]
O estudo original comparou os grupos kisspeptina e controle e avaliou o efeito do pré-tratamento Kiss-234 no quociente de lordose e na intensidade do reflexo de lordose. Tamanhos de grupos, doses do estudo, momentos e comparações estatísticas são relatados na publicação original.[5]
Suvi T. Ruohonen e colegas geraram camundongos com deleção seletiva de oócitos de Gpr54/Kiss1r cruzando uma linha Gdf9-Cre com uma linha Gpr54 LoxP. Os camundongos OoGpr54 -/- resultantes foram submetidos a análises fenotípicas, histológicas, hormonais e moleculares em várias idades pós-natais. Os autores relataram início normal da puberdade, mas falha ovulatória progressiva com a idade, incluindo alterações histológicas e perfis alterados de expressão gênica ovariana. Como este estudo utilizou a deleção do receptor em vez da administração de um peptídeo de kisspeptina, suas descobertas dizem respeito ao papel biológico da sinalização KISS1R ovariana e não são um estudo de exposição direta ao KP-10.[6]
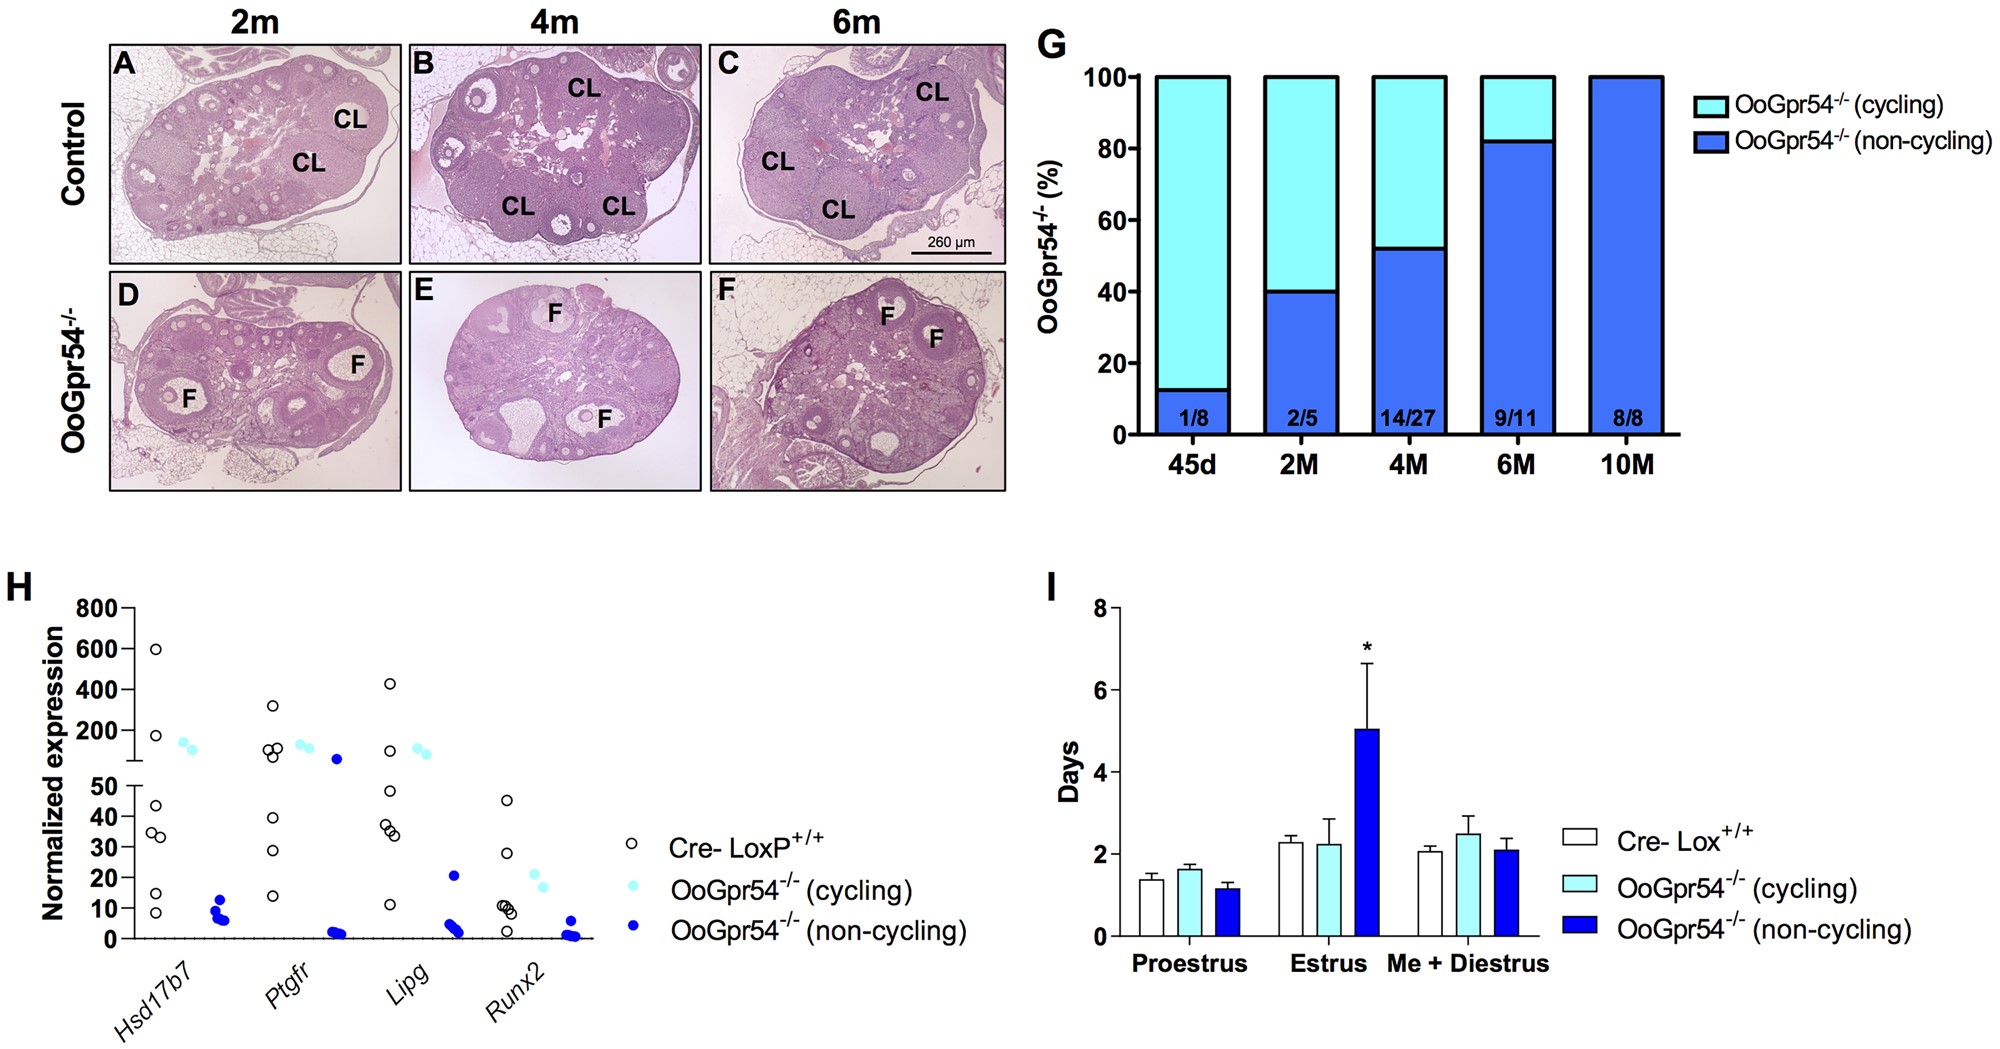
Figura 4. Alterações ovulatórias progressivas relatadas em camundongos com deleção Gpr54/Kiss1r seletiva para oócitos.[6]
Painéis (AF) mostram histologia ovariana representativa de camundongos controle e OoGpr54 -/- nas idades indicadas. O painel (G) resume a proporção de fêmeas OoGpr54 -/- sem corpos lúteos, o painel (H) apresenta resultados selecionados de sequenciamento de RNA e o painel (I) mostra medições do ciclo estral. Os tamanhos dos grupos e os métodos estatísticos são relatados na publicação original.[6]
Limitações de pesquisa
Nem todos os estudos resumidos acima avaliam a mesma forma molecular da kisspeptina. O precursor KISS1 pode ser processado em vários peptídeos bioativos, incluindo KP54, KP14, KP13 e KP10, que compartilham o mesmo decapeptídeo C-terminal, mas diferem em comprimento e comportamento farmacocinético. O estudo de Wu usou KP54 e TAK448, enquanto outros trabalhos citados examinaram a sinalização endógena de kisspeptina, modelos de knockout de receptor ou preparações de kisspeptina que não foram projetadas como comparações diretas de um material comercial de pesquisa KP-10.[2,3,4,6,7]
KISS1R é um receptor acoplado à proteína da classe AG e é mais conhecido pela sinalização Gq/11, embora trabalhos estruturais e funcionais recentes também apoiem o acoplamento a Gi/o sob condições experimentais específicas.[2] Diferenças na isoforma do peptídeo, expressão do receptor, espécie, contexto tecidual, via de exposição e desenho experimental podem influenciar a resposta observada. Os resultados de modelos de camundongos e ratos, portanto, devem permanecer vinculados ao peptídeo exato, ao modelo de receptor e às condições experimentais descritas em cada publicação.[2,7]
COCER Peptides apresenta Kisspeptin-10 exclusivamente para pesquisa laboratorial e uso analítico. Não se destina ao uso humano ou veterinário. A pesquisa descrita acima resume os resultados relatados em publicações de terceiros e não é uma declaração de eficácia clínica, segurança, diagnóstico, tratamento, prevenção ou uma instrução de uso.


