
▎キスペプチンの 構造
出典: PubChem |
シーケンス:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF 分子式: 258H 401NO79C 78 分子量: 5857 g/mol PubChem CID:71306396 同義語: タンパク質 KISS-1、キスペプチン |
▎キスペプチンの 研究
分子の背景
キスペプチン-10 (KP-10) は、KISS1 由来のキスペプチン前駆体の 10 アミノ酸の C 末端フラグメントです。そのアミノ酸配列は Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2) であり、G タンパク質共役受容体 KISS1R に結合します。 PubChem はヒト Kisspeptin-10 を CID 25240297 でリストしており、分子式は C63H83N17O14、分子量は約 1302.4 g/mol です。[1、8]
研究の進捗
Zhangsong Wuらは、合成アゴニストTAK448に結合したKISS1R-GqおよびKISS1R-Gi複合体と、内因性KP54に結合したKISS1R-Gq複合体のクライオEM構造を決定した。同じ研究の機能アッセイにより、KISS1R は確立された Gq/11 経路に加えて、Gi/o 経路にも共役できることが示されました。著者らは、Gタンパク質カップリング選択性に寄与する可能性がある、受容体の細胞外ループと細胞内ループ、およびGαサブユニット界面の構造的差異を報告した。この構造研究では、結合リガンドとして KP-10 ではなく KP54 と TAK448 を使用しました [2]。
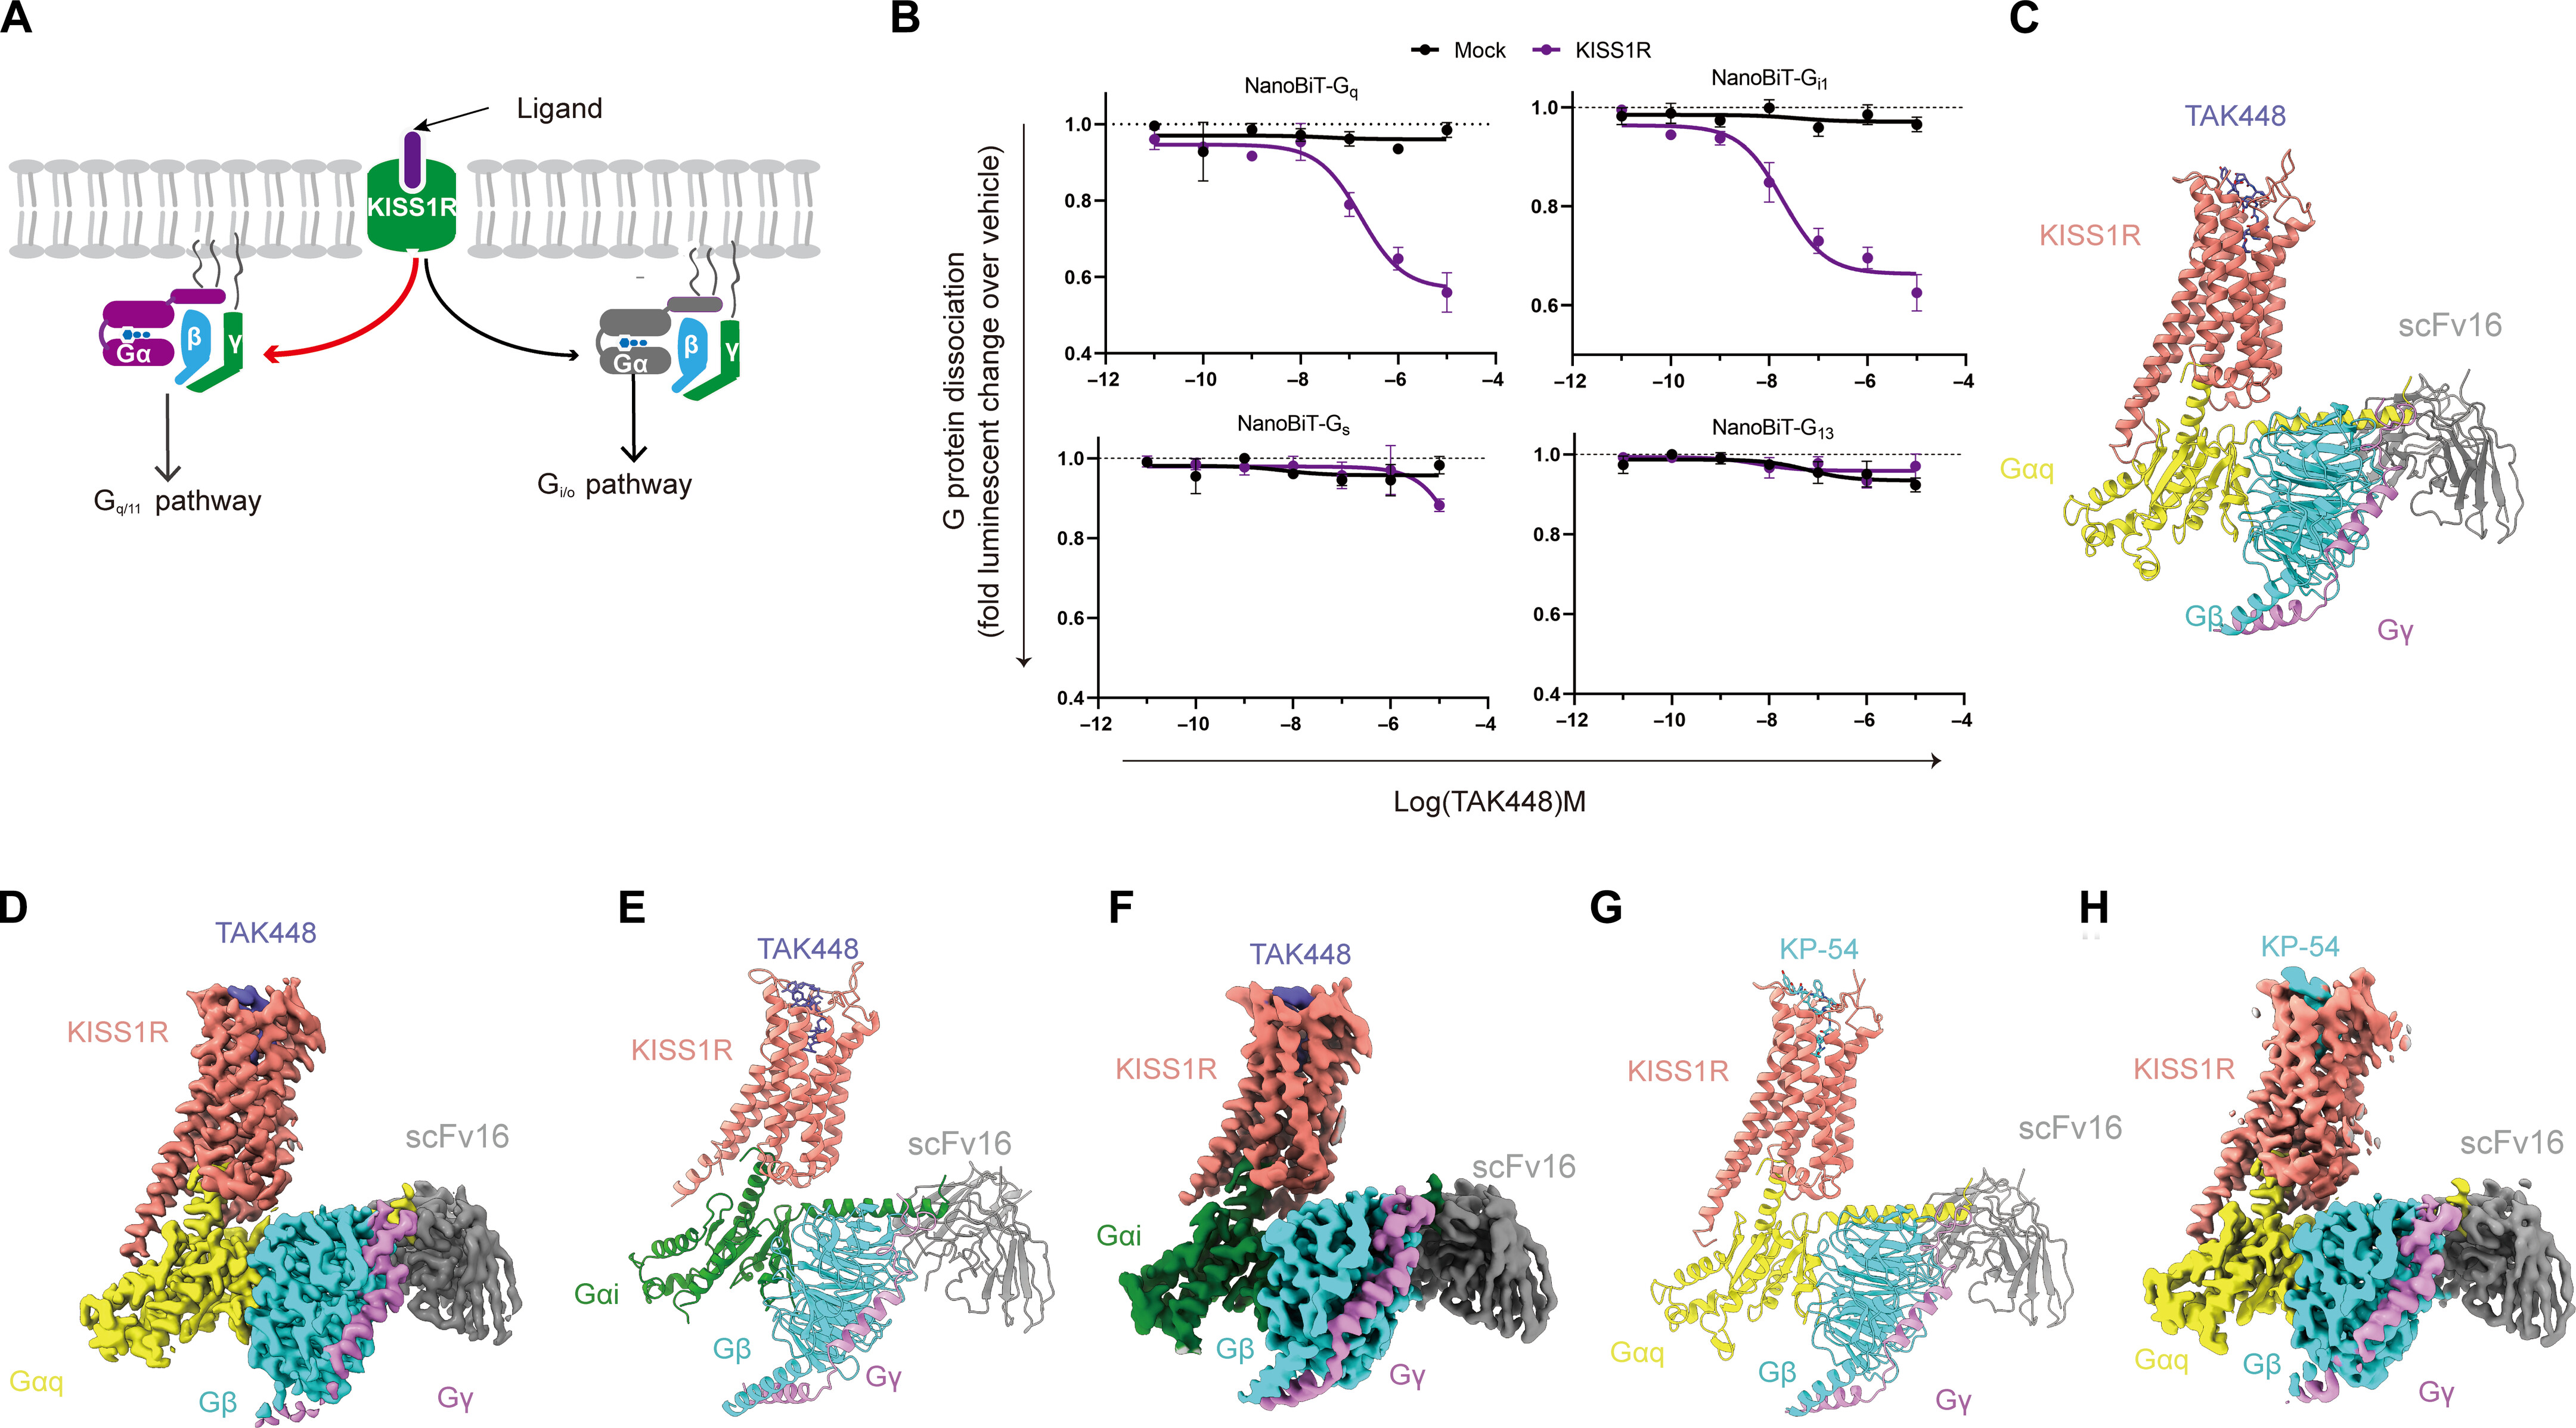
図1.引用された研究で TAK448 および KP54 を使用して報告された KISS1R-G タンパク質複合体のクライオ EM 構造。[2]
(A) ソース研究で調べた KISS1R G タンパク質カップリングの概略図。 (B) TAK448 曝露後の、指定された G タンパク質メンバーの NanoBiT G タンパク質解離アッセイ。 (CH) TAK448-KISS1R-Gq、TAK448-KISS1R-Gi、および KP54-KISS1R-Gq 複合体のクライオ EM モデルとマップ。実験条件と統計的詳細は、元の出版物で報告されています[2]。
Jenny Clarkson と Allan Herbison は、マウスのキスペプチン ニューロン集団の出生後の発達と、それらの GnRH ニューロンへの投影を研究しました。彼らは、マウスキスペプチン-10に対して産生された抗血清を使用して、前腹側心室周囲/視索前室周囲領域、視床下部背内側、および弓状核におけるキスペプチン免疫反応性集団を同定した。著者らは、AVPV/PeNキスペプチンニューロン数における顕著な女性優位の差異を報告し、出生後の発育中に出現するキスペプチン線維とGnRHニューロン細胞体との間の密接な並置を観察した。この研究は、外部から供給された KP-10 物質の効果ではなく、内因性のニューロンの発現と発達を特徴づけました。[3]
Alexander S. Kauffmanらは、成体の野生型(WT)マウスとGPR54/KISS1Rノックアウト(KO)マウスを用いて、性的二型行動と神経発達におけるキスペプチン受容体シグナル伝達の役割を調べた。ホルモン置換されたGPR54 KOの雄と雌は、典型的な性交行動を保持したが、嗅覚パートナーの好みやいくつかの性的二形性の神経形質には差異が観察された。著者らは、GPR54シグナル伝達は、使用されたホルモン置換条件下での成体の交尾行動には必要ではないが、選択された性的二形形質の発達に関与していると結論づけた[4]。
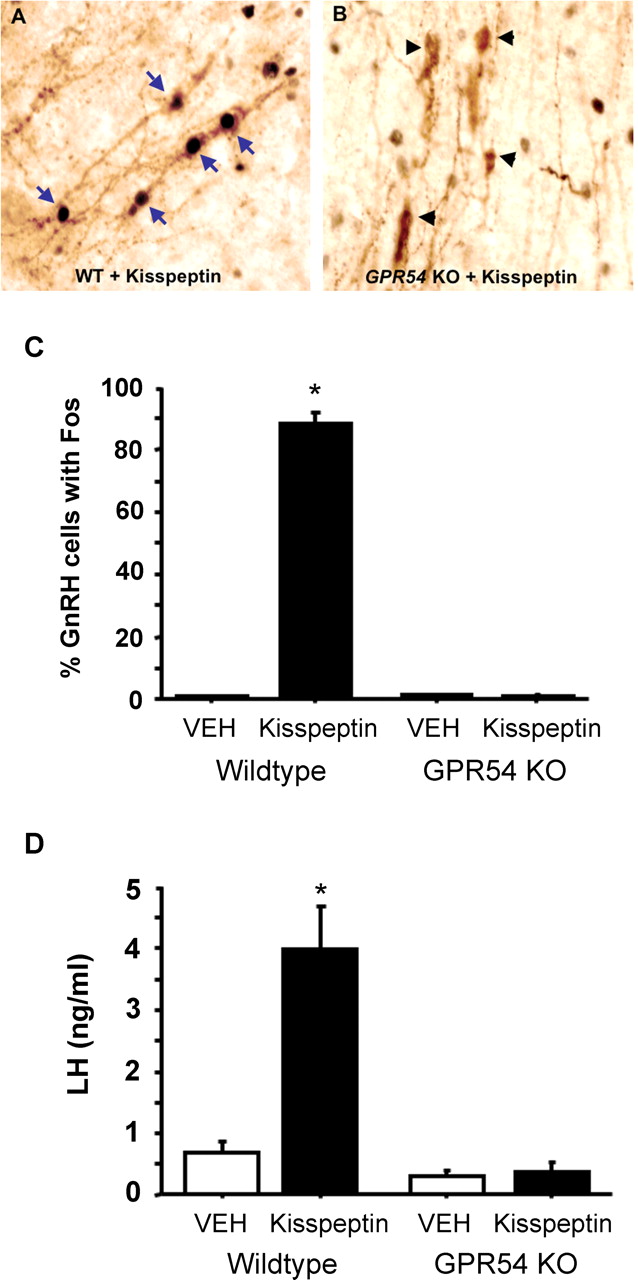
図2. WT および GPR54 KO 雄マウスにおける脳室内キスペプチン曝露後の GnRH ニューロン Fos 免疫反応性および血漿 LH 測定値が報告されています。[4]
*元の研究で報告されているように、ビヒクル処理 WT グループと比較して p < 0.05。[4]
Oscar González-Floresらは、安息香酸エストラジオールで初回刺激した卵巣摘出ラットの脳室内キスペプチン曝露を調べた。著者らは前彎指数と前弯反射強度を測定し、KISS1RアンタゴニストKiss-234、プロゲステロン受容体アンタゴニストRU486、およびGnRH-1受容体アンタゴニスト抗ドを使用して受容体の関与を調べた。キスペプチンへの曝露は、ラットモデルにおける前弯測定値の上昇と関連していましたが、アンタゴニストの前処理により、選択された時点での反応が減少しました。この発見は、研究条件下での KISS1R、プロゲステロン受容体、および GnRH 受容体のシグナル伝達の関与を裏付けました。 [5]
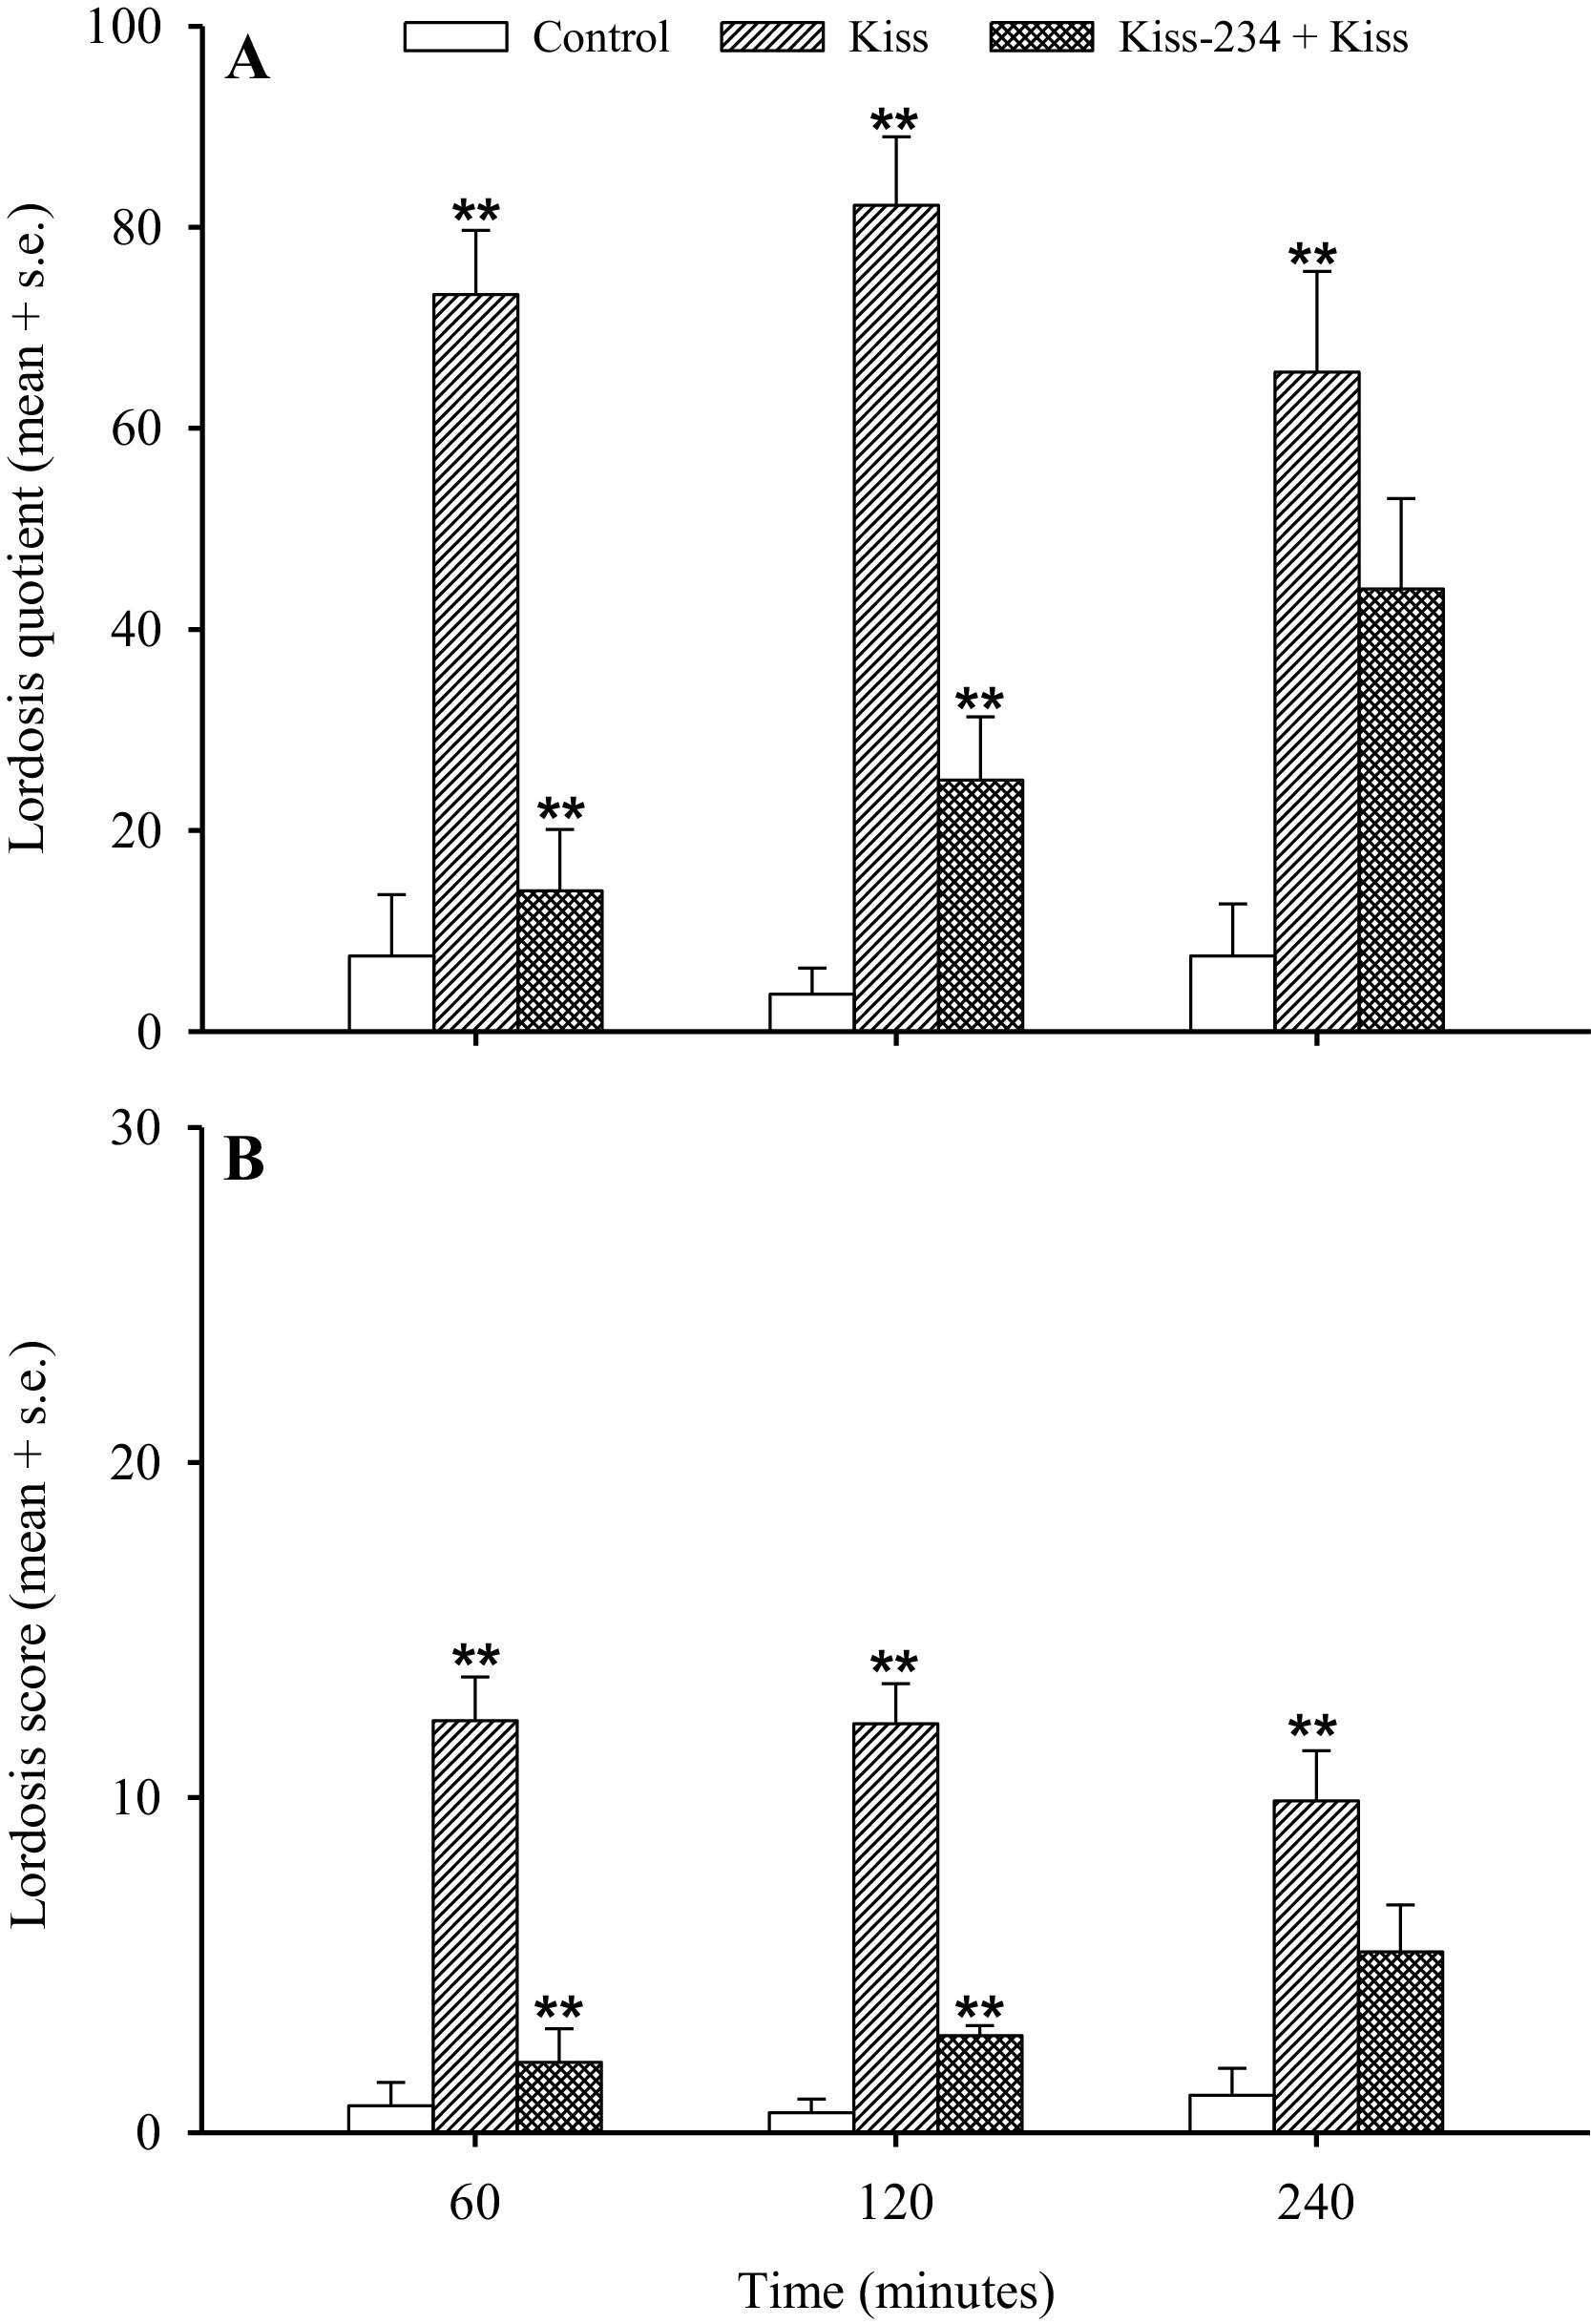
図3.卵巣摘出ラットにおける KISS1R アンタゴニスト Kiss-234 の有無にかかわらず、キスペプチンに曝露した後の前彎前弯測定値が報告されました。 [5]
ソース研究では、キスペプチンと対照群を比較し、前彎前弯指数と前弯反射強度に対する Kiss-234 前治療の効果を評価しました。グループの規模、研究用量、時点、および統計的比較は、元の出版物に報告されています。
Suvi T. Ruohonenらは、Gdf9-Cre系統とGpr54 LoxP系統を交配することにより、Gpr54/Kiss1rを卵母細胞選択的に欠失させたマウスを作製した。得られた OoGpr54-/- マウスは、出生後のいくつかの年齢にわたって表現型、組織学的、ホルモン、および分子の分析を受けました。著者らは、思春期の発症は正常であるが、組織学的変化や卵巣の遺伝子発現プロファイルの変化など、年齢とともに進行性の排卵障害が起こることを報告した。この研究はキスペプチンペプチドの投与ではなく受容体欠失を使用したため、その発見は卵巣KISS1Rシグナル伝達の生物学的役割に関するものであり、KP-10への直接曝露研究ではありません。
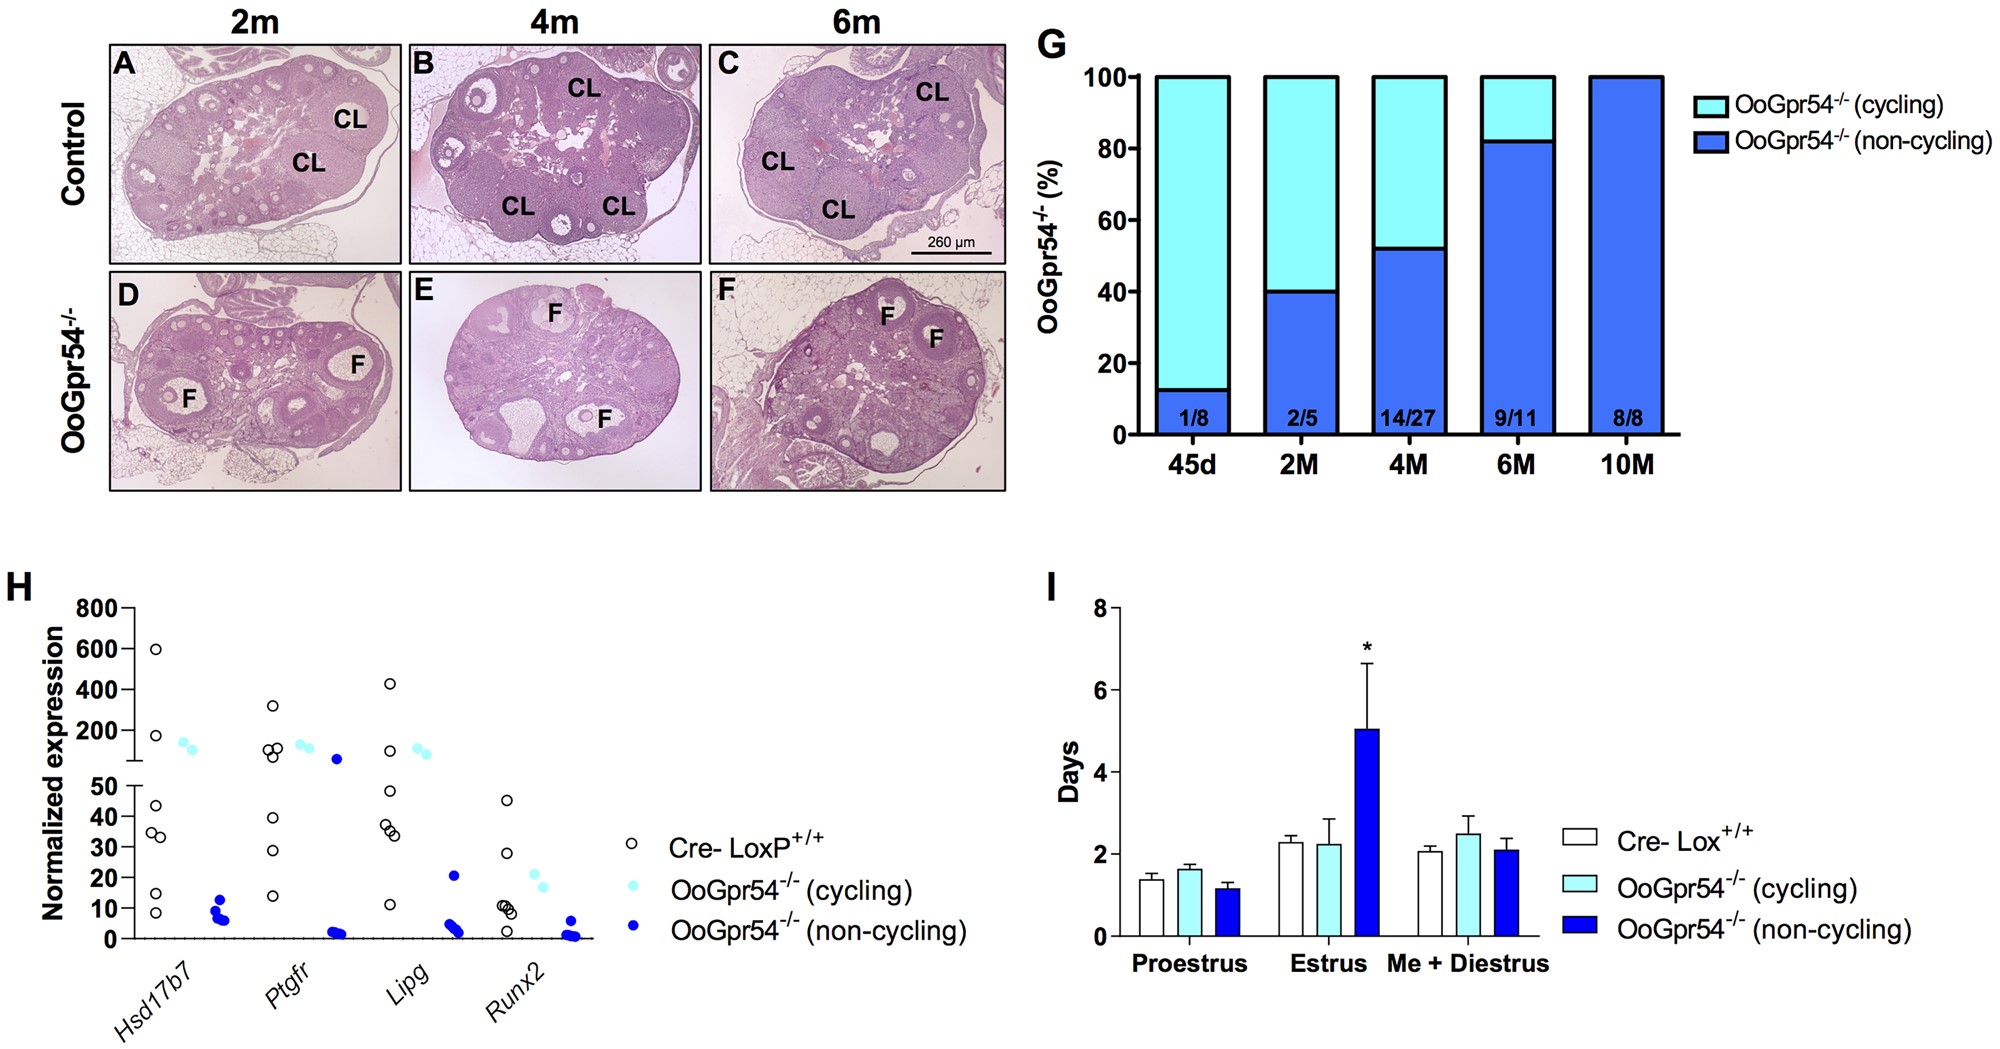
図4.卵母細胞選択的 Gpr54/Kiss1r 欠失マウスにおいて、排卵の進行性変化が報告されています。 [6]
パネル(A~F)は、示された年齢の対照マウスおよびOoGpr54-/-マウスからの代表的な卵巣組織学を示す。パネル(G)は黄体を持たないOoGpr54-/-雌の割合をまとめ、パネル(H)は選択されたRNA配列決定結果を示し、パネル(I)は発情周期測定を示す。グループの規模と統計手法は、元の出版物で報告されています。[6]
研究の限界
上記に要約した研究は、すべてが同じキスペプチン分子形態を評価しているわけではありません。 KISS1 前駆体は、同じ C 末端デカペプチドを共有しますが、長さと薬物動態学的挙動が異なる、KP54、KP14、KP13、および KP10 を含むいくつかの生理活性ペプチドに加工できます。 Wu 研究では KP54 および TAK448 が使用されましたが、他の引用研究では、内因性キスペプチンシグナル伝達、受容体ノックアウトモデル、または市販の KP-10 研究材料の直接比較として設計されていないキスペプチン調製物が検討されました。[2、3、4、6、7]。
KISS1R はクラス AG タンパク質共役受容体であり、Gq/11 シグナル伝達で最もよく知られていますが、最近の構造的および機能的研究により、特定の実験条件下での Gi/o への共役も裏付けられています [2]。ペプチドアイソフォーム、受容体発現、種、組織状況、曝露経路、および実験計画の違いが、観察される反応に影響を与える可能性があります。したがって、マウスおよびラットモデルの結果は、各出版物に記載されている正確なペプチド、受容体モデル、および実験条件に関連付けられたままである必要があります。
COCER Peptides は、実験室での研究および分析用途のみを目的として Kisspeptin-10 を提供しています。人間や動物への使用を目的としたものではありません。上記の研究は、第三者の出版物で報告された結果を要約したものであり、臨床効果、安全性、診断、治療、予防、または使用説明を表明するものではありません。


