

|
1 kits (10 flacons)
| Quantité: | |
|---|---|
▎ de la kisspeptine Structure
Source : PubChem |
Séquence : GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF Formule moléculaire : C 258H 401N 79O78 Poids moléculaire : 5857 g/mol CID PubChem:71306396 Synonymes : Protéine KISS-1 ; Kisspeptines |
▎ sur la kisspeptine Recherche
Contexte moléculaire
La Kisspeptine-10 (KP-10) est un fragment C-terminal de 10 acides aminés du précurseur de la kisspeptine dérivé de KISS1. Sa séquence d'acides aminés est Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2), et elle se lie au récepteur couplé à la protéine G KISS1R. PubChem répertorie la Kisspeptine-10 humaine sous le CID 25240297, avec la formule moléculaire C63H83N17O14 et un poids moléculaire d'environ 1 302,4 g/mol.[1,8]
Progrès de la recherche
Zhangsong Wu et ses collègues ont déterminé les structures cryo-EM des complexes KISS1R-Gq et KISS1R-Gi liés à l'agoniste synthétique TAK448, ainsi qu'un complexe KISS1R-Gq lié au KP54 endogène. Les tests fonctionnels de la même étude ont indiqué que KISS1R peut se coupler à la voie Gi/o en plus de la voie Gq/11 établie. Les auteurs ont rapporté des différences structurelles dans les boucles extracellulaires et intracellulaires des récepteurs et dans l'interface de la sous-unité Gα qui pourraient contribuer à la sélectivité du couplage de la protéine G. Cette étude structurale a utilisé KP54 et TAK448 plutôt que KP-10 comme ligands liés.[2]
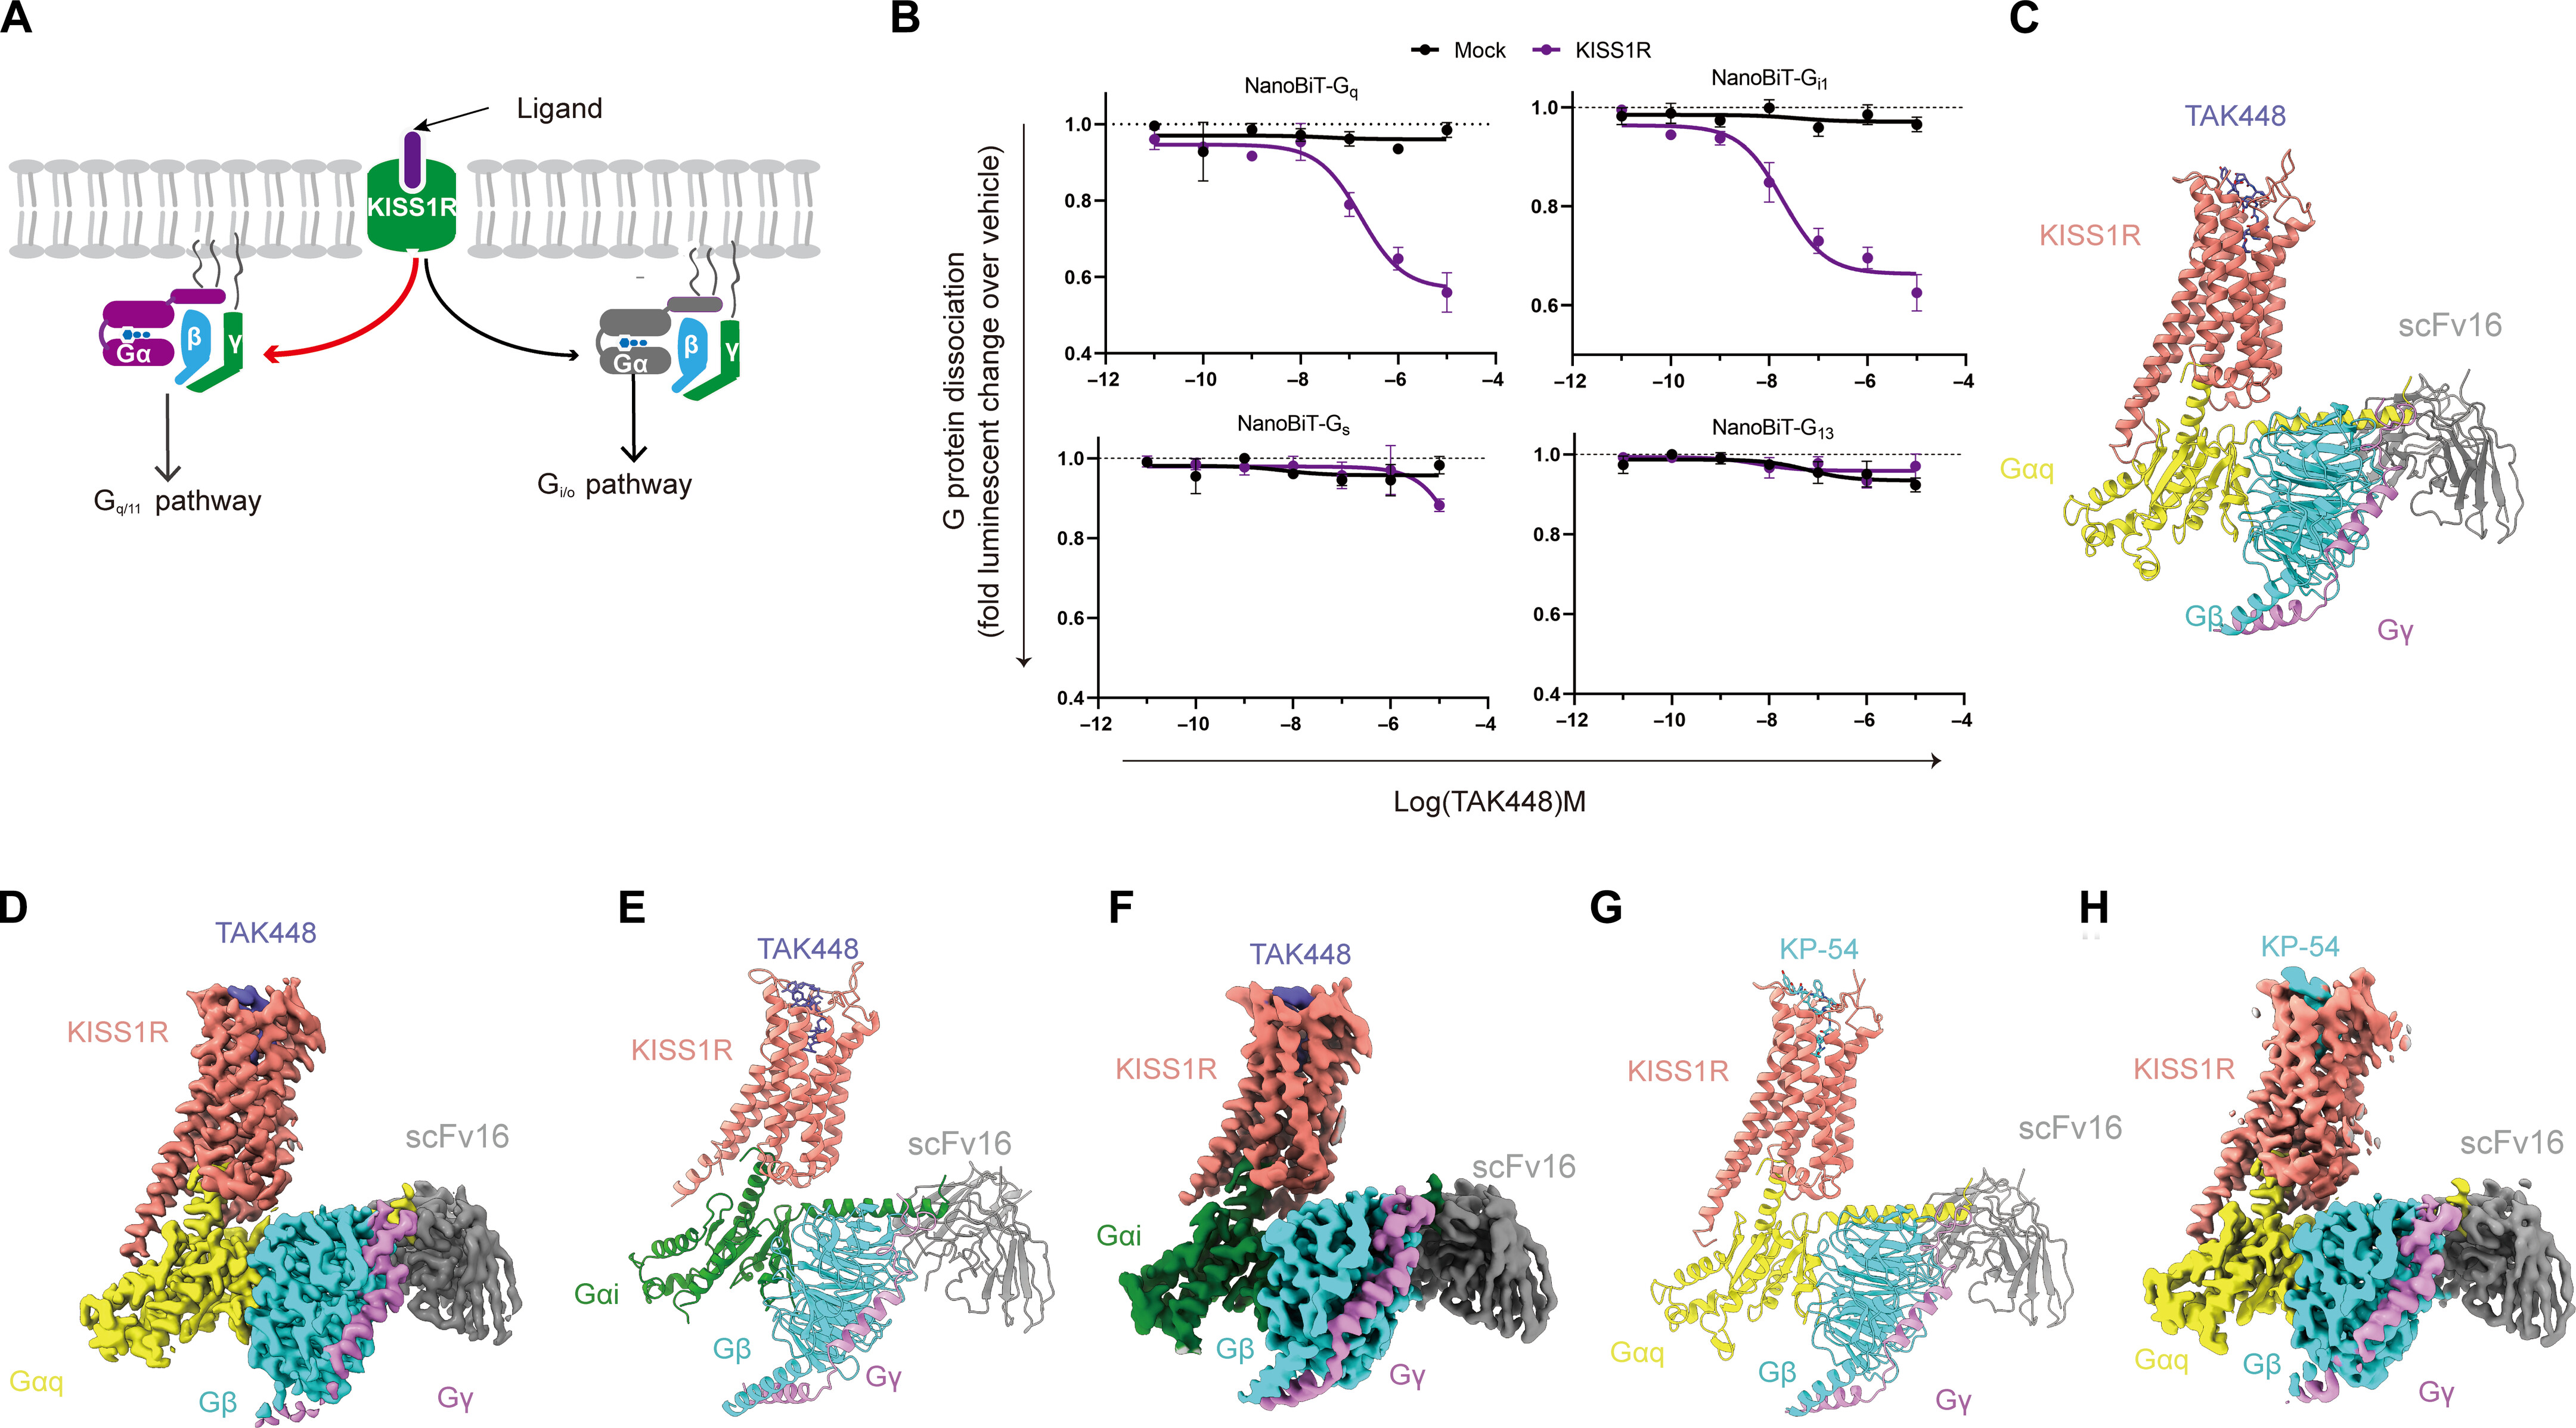
Fig1. Structures cryo-EM des complexes protéiques KISS1R-G rapportées avec TAK448 et KP54 dans l'étude citée.[2]
(A) Représentation schématique du couplage de la protéine G KISS1R examiné dans l’étude source. (B) Tests de dissociation de la protéine G NanoBiT pour les membres de la protéine G indiqués après l’exposition au TAK448. (CH) Modèles Cryo-EM et cartes des complexes TAK448-KISS1R-Gq, TAK448-KISS1R-Gi et KP54-KISS1R-Gq. Les conditions expérimentales et les détails statistiques sont rapportés dans la publication originale.[2]
Jenny Clarkson et Allan Herbison ont étudié le développement postnatal des populations de neurones à kisspeptine et leurs projections sur les neurones à GnRH chez la souris. À l’aide d’un antisérum produit contre la kisspeptine-10 de souris, ils ont identifié des populations immunoréactives à la kisspeptine dans la région périventriculaire antéroventrale/périventriculaire préoptique, l’hypothalamus dorsomédial et le noyau arqué. Les auteurs ont rapporté une différence marquée chez les femmes dans le nombre de neurones de la kisspeptine AVPV/PeN et ont observé des appositions étroites entre les fibres de kisspeptine et les corps cellulaires des neurones GnRH émergeant au cours du développement postnatal. Ce travail a caractérisé l'expression et le développement neuronaux endogènes plutôt que les effets d'un matériau KP-10 fourni de manière externe.[3]
Alexander S. Kauffman et ses collègues ont utilisé des souris adultes de type sauvage (WT) et knock-out GPR54/KISS1R (KO) pour examiner le rôle de la signalisation des récepteurs de la kisspeptine dans le comportement sexuellement dimorphique et le développement neuronal. Les mâles et les femelles GPR54 KO remplacés par l'hormone ont conservé un comportement copulatoire typique du sexe, tandis que des différences ont été observées dans la préférence olfactive du partenaire et dans plusieurs traits neuronaux sexuellement dimorphes. Les auteurs ont conclu que la signalisation GPR54 n'était pas nécessaire pour le comportement copulatoire des adultes dans les conditions de remplacement hormonal utilisées, mais qu'elle était impliquée dans le développement de traits sélectionnés de dimorphisme sexuel.[4]
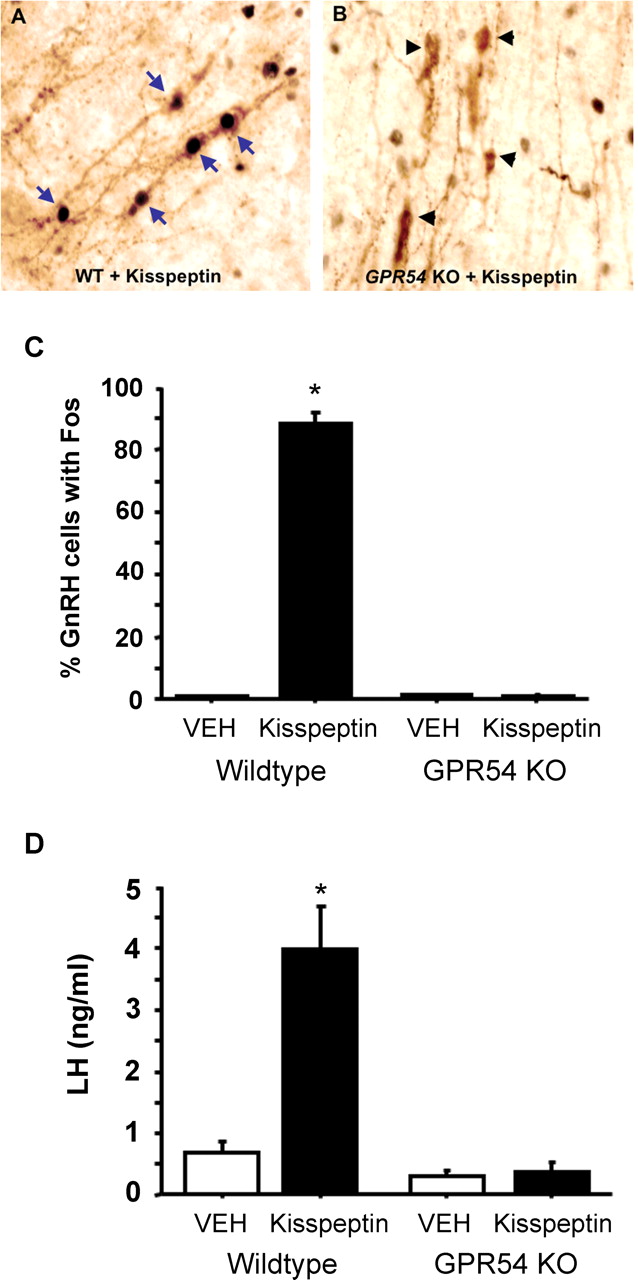
Fig2. Mesures de l'immunoréactivité Fos du neurone GnRH et de la LH plasmatique rapportées après une exposition intracérébroventriculaire à la kisspeptine chez des souris mâles WT et GPR54 KO.[4]
*p < 0,05 par rapport au groupe WT traité avec le véhicule, comme indiqué dans l'étude originale.[4]
Oscar González-Flores et ses collègues ont examiné l'exposition intracérébroventriculaire à la kisspeptine chez des rats ovariectomisés amorcés avec du benzoate d'estradiol. Les auteurs ont mesuré le quotient de lordose et l'intensité du réflexe de lordose, puis ont utilisé l'antagoniste de KISS1R Kiss-234, l'antagoniste du récepteur de la progestérone RU486 et l'antide antagoniste du récepteur GnRH-1 pour examiner l'implication du récepteur. L'exposition à la kisspeptine était associée à des mesures de lordose plus élevées dans le modèle de rat, tandis que le prétraitement par antagoniste réduisait la réponse à des moments sélectionnés. Les résultats soutiennent l'implication de la signalisation KISS1R, des récepteurs de la progestérone et des récepteurs de la GnRH dans les conditions de l'étude.[5]
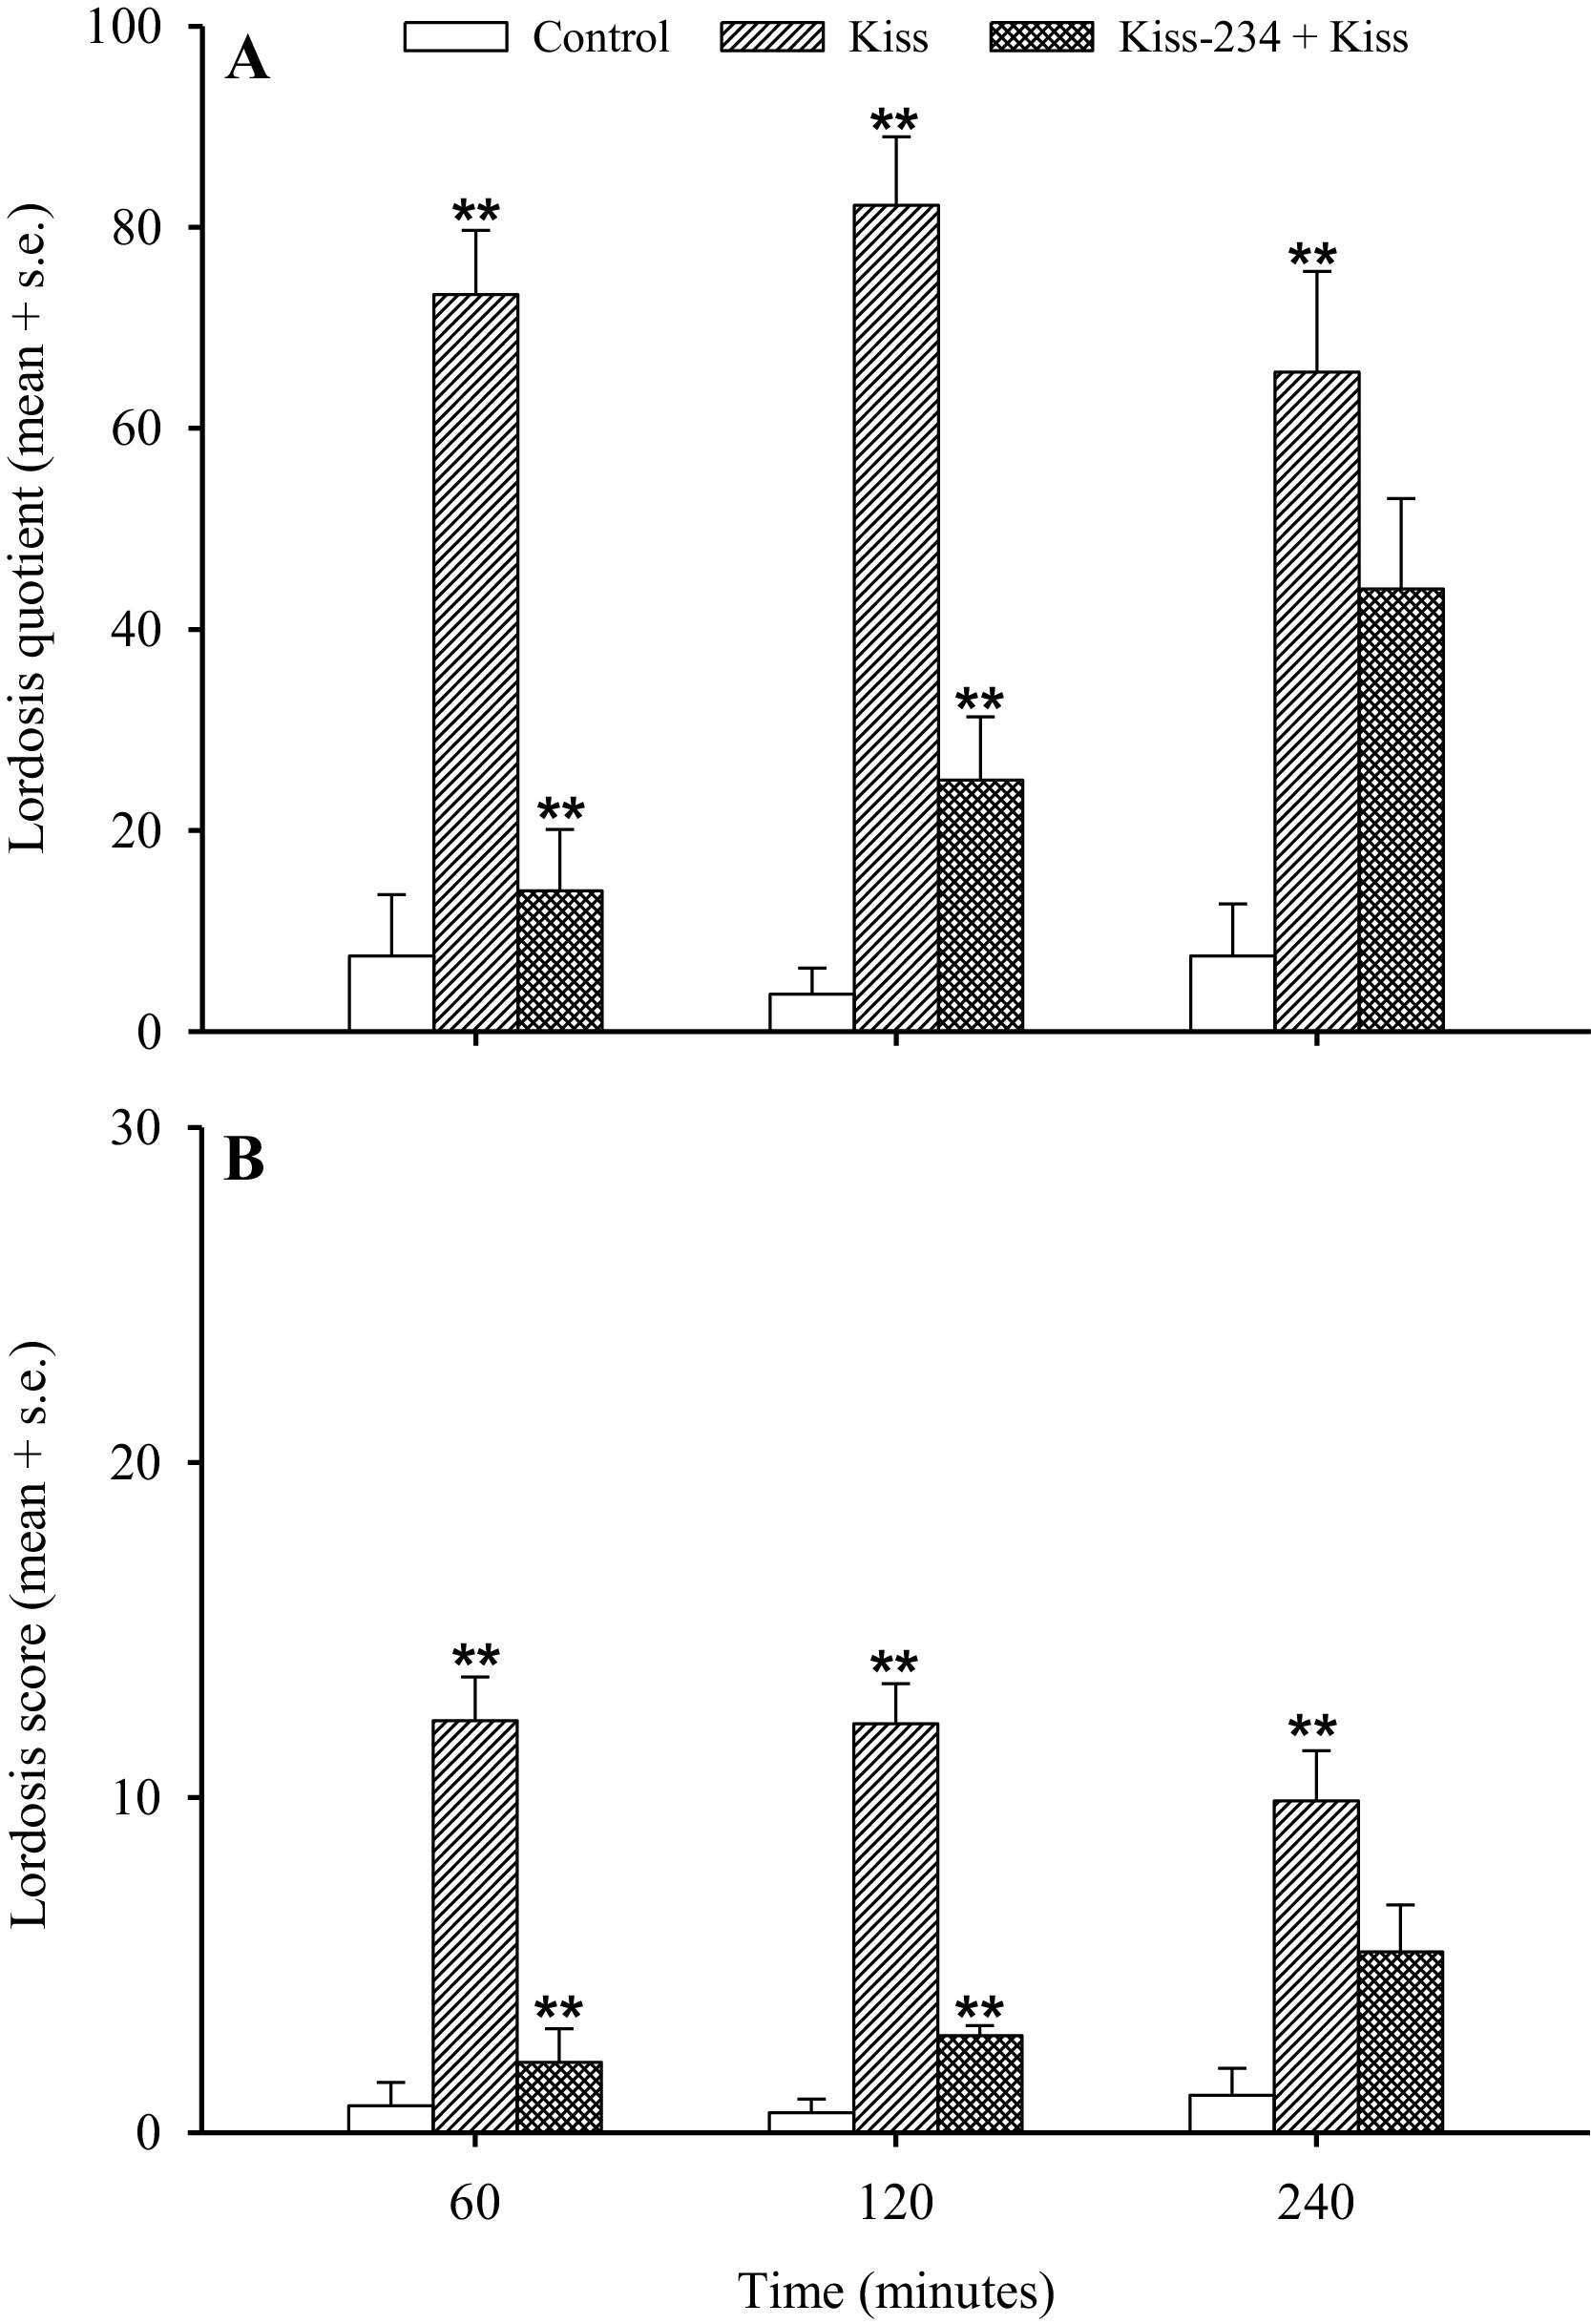
Fig3. Mesures de lordose rapportées après exposition à la kisspeptine avec ou sans l'antagoniste de KISS1R Kiss-234 chez des rats ovariectomisés.[5]
L'étude source a comparé la kisspeptine et les groupes témoins et a évalué l'effet du prétraitement Kiss-234 sur le quotient de lordose et l'intensité du réflexe de lordose. La taille des groupes, les doses d'étude, les moments et les comparaisons statistiques sont rapportés dans la publication originale.[5]
Suvi T. Ruohonen et ses collègues ont généré des souris avec une suppression sélective des ovocytes de Gpr54/Kiss1r en croisant une lignée Gdf9-Cre avec une lignée Gpr54 LoxP. Les souris OoGpr54−/− résultantes ont subi des analyses phénotypiques, histologiques, hormonales et moléculaires sur plusieurs âges postnatals. Les auteurs ont signalé un début de puberté normal mais une insuffisance ovulatoire progressive avec l'âge, y compris des changements histologiques et des profils d'expression génique ovarienne altérés. Étant donné que cette étude a utilisé la suppression du récepteur plutôt que l'administration d'un peptide de kisspeptine, ses résultats concernent le rôle biologique de la signalisation ovarienne KISS1R et ne constituent pas une étude d'exposition directe au KP-10.[6]
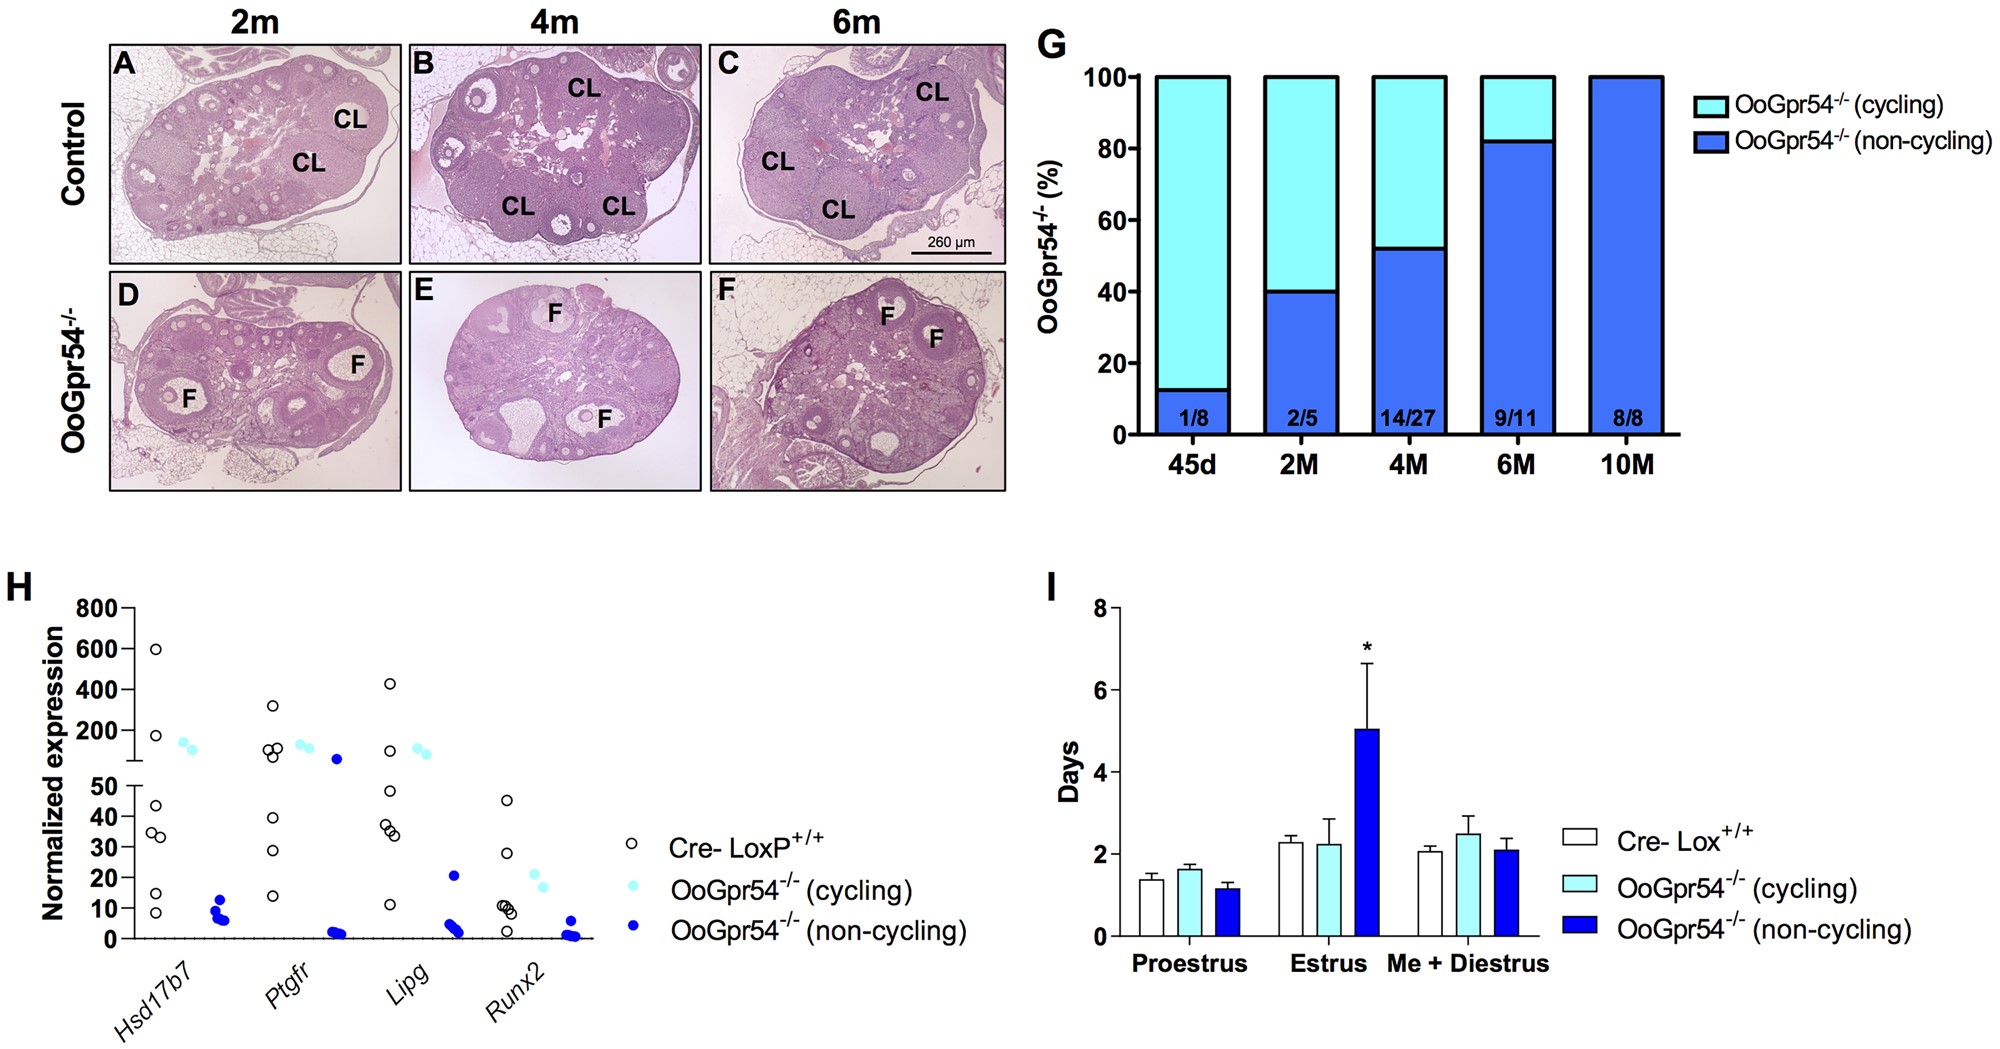
Fig4. Modifications ovulatoires progressives signalées chez des souris présentant une délétion sélective des ovocytes Gpr54/Kiss1r.[6]
Les panneaux (AF) montrent une histologie ovarienne représentative des souris témoins et OoGpr54−/− aux âges indiqués. Le panneau (G) résume la proportion de femelles OoGpr54−/− sans corps jaunes, le panneau (H) présente certains résultats de séquençage d'ARN et le panneau (I) montre les mesures du cycle œstral. La taille des groupes et les méthodes statistiques sont indiquées dans la publication originale.[6]
Limites de la recherche
Les études résumées ci-dessus n’évaluent pas toutes la même forme moléculaire de la kisspeptine. Le précurseur KISS1 peut être transformé en plusieurs peptides bioactifs, notamment KP54, KP14, KP13 et KP10, qui partagent le même décapeptide C-terminal mais diffèrent par leur longueur et leur comportement pharmacocinétique. L'étude Wu a utilisé KP54 et TAK448, tandis que d'autres travaux cités ont examiné la signalisation endogène de la kisspeptine, des modèles d'inactivation des récepteurs ou des préparations de kisspeptine qui n'étaient pas conçues comme des comparaisons directes d'un matériel de recherche commercial KP-10.[2,3,4,6,7]
KISS1R est un récepteur couplé aux protéines de classe AG et est surtout connu pour la signalisation Gq/11, bien que des travaux structurels et fonctionnels récents soutiennent également le couplage à Gi/o dans des conditions expérimentales spécifiques.[2] Les différences dans l'isoforme du peptide, l'expression du récepteur, l'espèce, le contexte tissulaire, la voie d'exposition et la conception expérimentale peuvent influencer la réponse observée. Les résultats des modèles de souris et de rat doivent donc rester liés au peptide exact, au modèle de récepteur et aux conditions expérimentales décrits dans chaque publication.[2,7]
COCER Peptides présente Kisspeptin-10 uniquement pour la recherche en laboratoire et l'utilisation analytique. Il n'est pas destiné à un usage humain ou vétérinaire. La recherche décrite ci-dessus résume les résultats rapportés dans des publications tierces et ne constitue pas une déclaration d'efficacité clinique, de sécurité, de diagnostic, de traitement, de prévention ou une instruction d'utilisation.


