

|
1 sarja (10 injektiopulloa)
| Määrä: | |
|---|---|
▎ Kisspeptin rakenne
Lähde: PubChem |
Järjestys:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF Molekyylikaava: C 258H 401N 79O78 Molekyylipaino: 5857 g/mol PubChem CID: 71306396 Synonyymit: Proteiini KISS-1; Kisspeptiinit |
▎ Kisspeptin Research
Molekyylinen tausta
Kisspeptiini-10 (KP-10) on KISS1-peräisen kisspeptiiniprekursorin 10-aminohapon C-terminaalinen fragmentti. Sen aminohapposekvenssi on Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2), ja se sitoo G-proteiiniin kytkettyä reseptoria KISS1R. PubChem listaa ihmisen kisspeptiini-10:n CID-tunnuksella 25240297, jonka molekyylikaava on C63H83N17O14 ja jonka molekyylipaino on noin 1302,4 g/mol.[1,8]
Tutkimuksen edistyminen
Zhangsong Wu ja kollegat määrittelivät synteettiseen agonistiin TAK448 sitoutuneiden KISS1R-Gq- ja KISS1R-Gi-kompleksien kryo-EM-rakenteet sekä endogeeniseen KP54:ään sitoutuneen KISS1R-Gq-kompleksin. Saman tutkimuksen toiminnalliset määritykset osoittivat, että KISS1R voi kytkeytyä Gi/o-reittiin vakiintuneen Gq/11-reitin lisäksi. Kirjoittajat raportoivat rakenteellisista eroista reseptorin solunulkoisissa ja solunsisäisissä silmukoissa ja Ga-alayksikön rajapinnassa, jotka voivat myötävaikuttaa G-proteiinin kytkeytymisen selektiivisyyteen. Tässä rakennetutkimuksessa käytettiin KP54:ää ja TAK448:aa KP-10:n sijasta sitoutuneina ligandeina.[2]
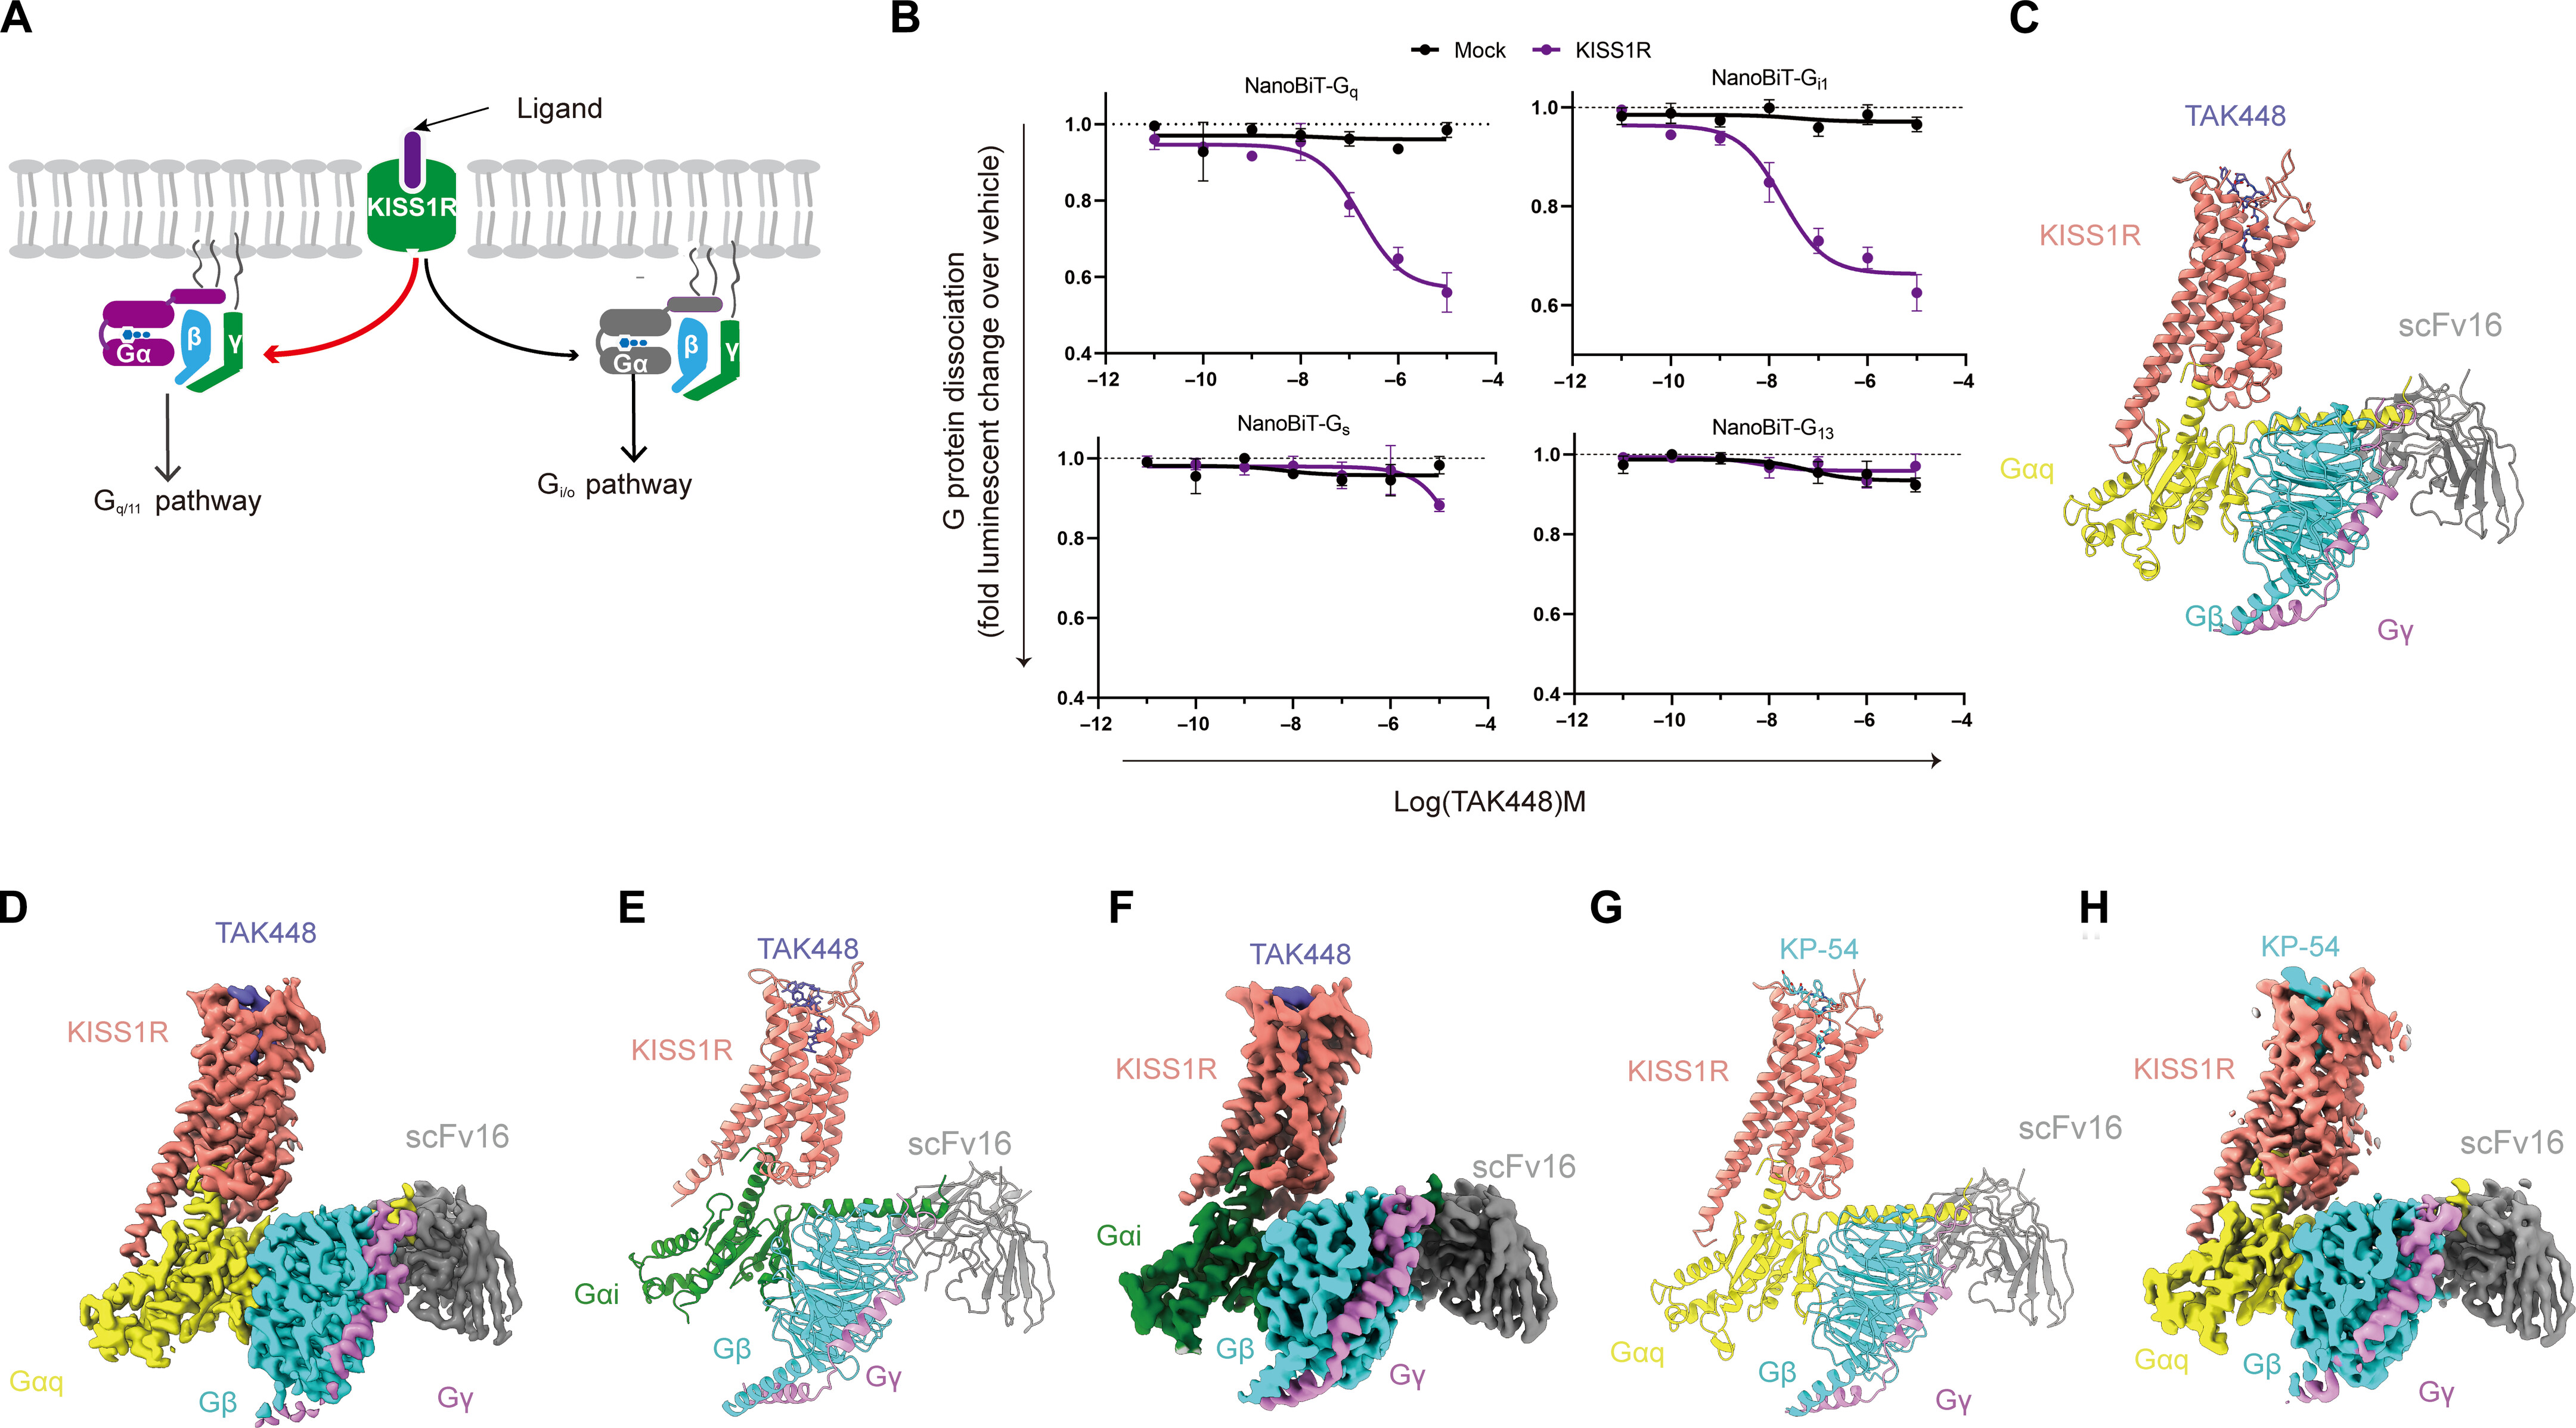
Kuva 1. Mainitussa tutkimuksessa raportoidut KISS1R-G-proteiinikompleksien kryo-EM-rakenteet TAK448:n ja KP54:n kanssa.[2]
(A) Lähdetutkimuksessa tutkitun KISS1R:n G-proteiinikytkennän kaavamainen esitys. (B) NanoBiT G-proteiinin dissosiaatiomääritykset osoitetuille G-proteiinijäsenille TAK448-altistuksen jälkeen. (CH) TAK448-KISS1R-Gq-, TAK448-KISS1R-Gi- ja KP54-KISS1R-Gq-kompleksien kryo-EM-mallit ja kartat. Koeolosuhteet ja tilastotiedot on raportoitu alkuperäisessä julkaisussa.[2]
Jenny Clarkson ja Allan Herbison tutkivat kisspeptiinin neuronipopulaatioiden synnytyksen jälkeistä kehitystä ja niiden ennusteita GnRH-hermosoluihin hiirillä. Käyttämällä hiiren kisspeptiini-10:tä vastaan kehitettyä antiseerumia he tunnistivat kisspeptiini-immunoreaktiivisia populaatioita anteroventraalisella periventrikulaarisella/preoptisella periventrikulaarisella alueella, dorsomediaalisessa hypotalamuksessa ja kaareutuvassa ytimessä. Kirjoittajat raportoivat huomattavasta naisdominoivasta erosta AVPV/PeN-kisspeptiinin hermosolujen lukumäärässä ja havaitsivat läheisiä yhteenliittymiä kisspeptiinikuitujen ja GnRH-hermosolujen välillä, jotka ilmaantuivat postnataalisen kehityksen aikana. Tämä työ luonnehti endogeenistä hermosolujen ilmentymistä ja kehitystä pikemminkin kuin ulkoisesti toimitetun KP-10-materiaalin vaikutuksia.[3]
Alexander S. Kauffman ja kollegat käyttivät aikuisia villityypin (WT) ja GPR54/KISS1R-poistohiiriä (KO) tutkiakseen kisspeptiinireseptorisignaloinnin roolia seksuaalisesti dimorfisessa käyttäytymisessä ja hermoston kehityksessä. Hormonilla korvatut GPR54 KO -urokset ja -naaraat säilyttivät sukupuoleen tyypillisen parittelukäyttäytymisen, kun taas eroja havaittiin hajukumppanien mieltymyksissä ja useissa seksuaalisesti dimorfisissa hermopiirteissä. Kirjoittajat päättelivät, että GPR54-signalointia ei vaadittu aikuisen parittelukäyttäytymiseen käytetyissä hormonikorvausolosuhteissa, mutta se osallistui valittujen seksuaalisesti dimorfisten piirteiden kehittymiseen.[4]
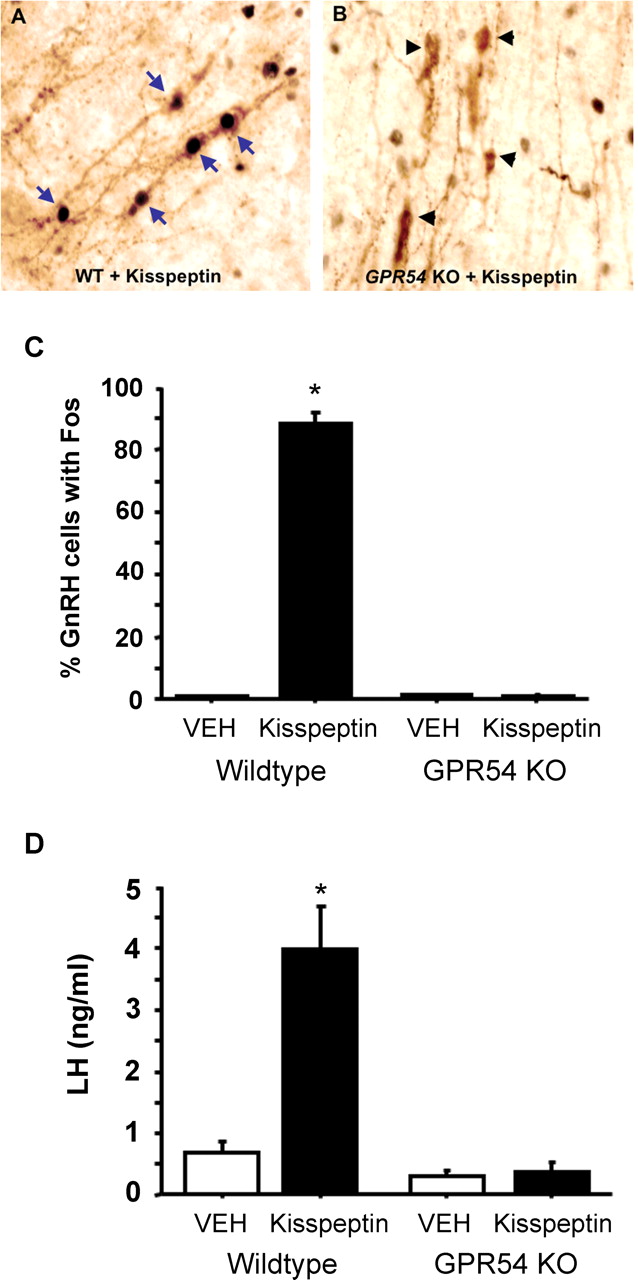
Kuva 2. GnRH-neuroni Fos-immunoreaktiivisuus ja plasman LH-mittaukset raportoitu intraserebroventrikulaarisen kisspeptiinialtistuksen jälkeen WT- ja GPR54 KO -uroshiirillä.[4]
*p < 0,05 verrattuna vehikkelillä hoidettuun WT-ryhmään, kuten alkuperäisessä tutkimuksessa raportoitiin.[4]
Oscar González-Flores ja kollegat tutkivat intraserebroventrikulaarista kisspeptiinialtistusta rotilla, joilta oli poistettu munasarjat ja jotka oli käsitelty estradiolibentsoaatilla. Kirjoittajat mittasivat lordoosiosuuden ja lordoosirefleksin intensiteetin ja käyttivät sitten KISS1R-antagonistia Kiss-234:ää, progesteronireseptorin antagonistia RU486:ta ja GnRH-1-reseptoriantagonistia reseptorin osallistumisen tutkimiseen. Kisspeptiinialtistus liittyi korkeampiin lordoosimittauksiin rottamallissa, kun taas antagonisti esikäsittely vähensi vastetta valittuina ajankohtina. Löydökset tukivat KISS1R:n, progesteronireseptorin ja GnRH-reseptorisignaloinnin osallistumista tutkimuksen olosuhteissa.[5]
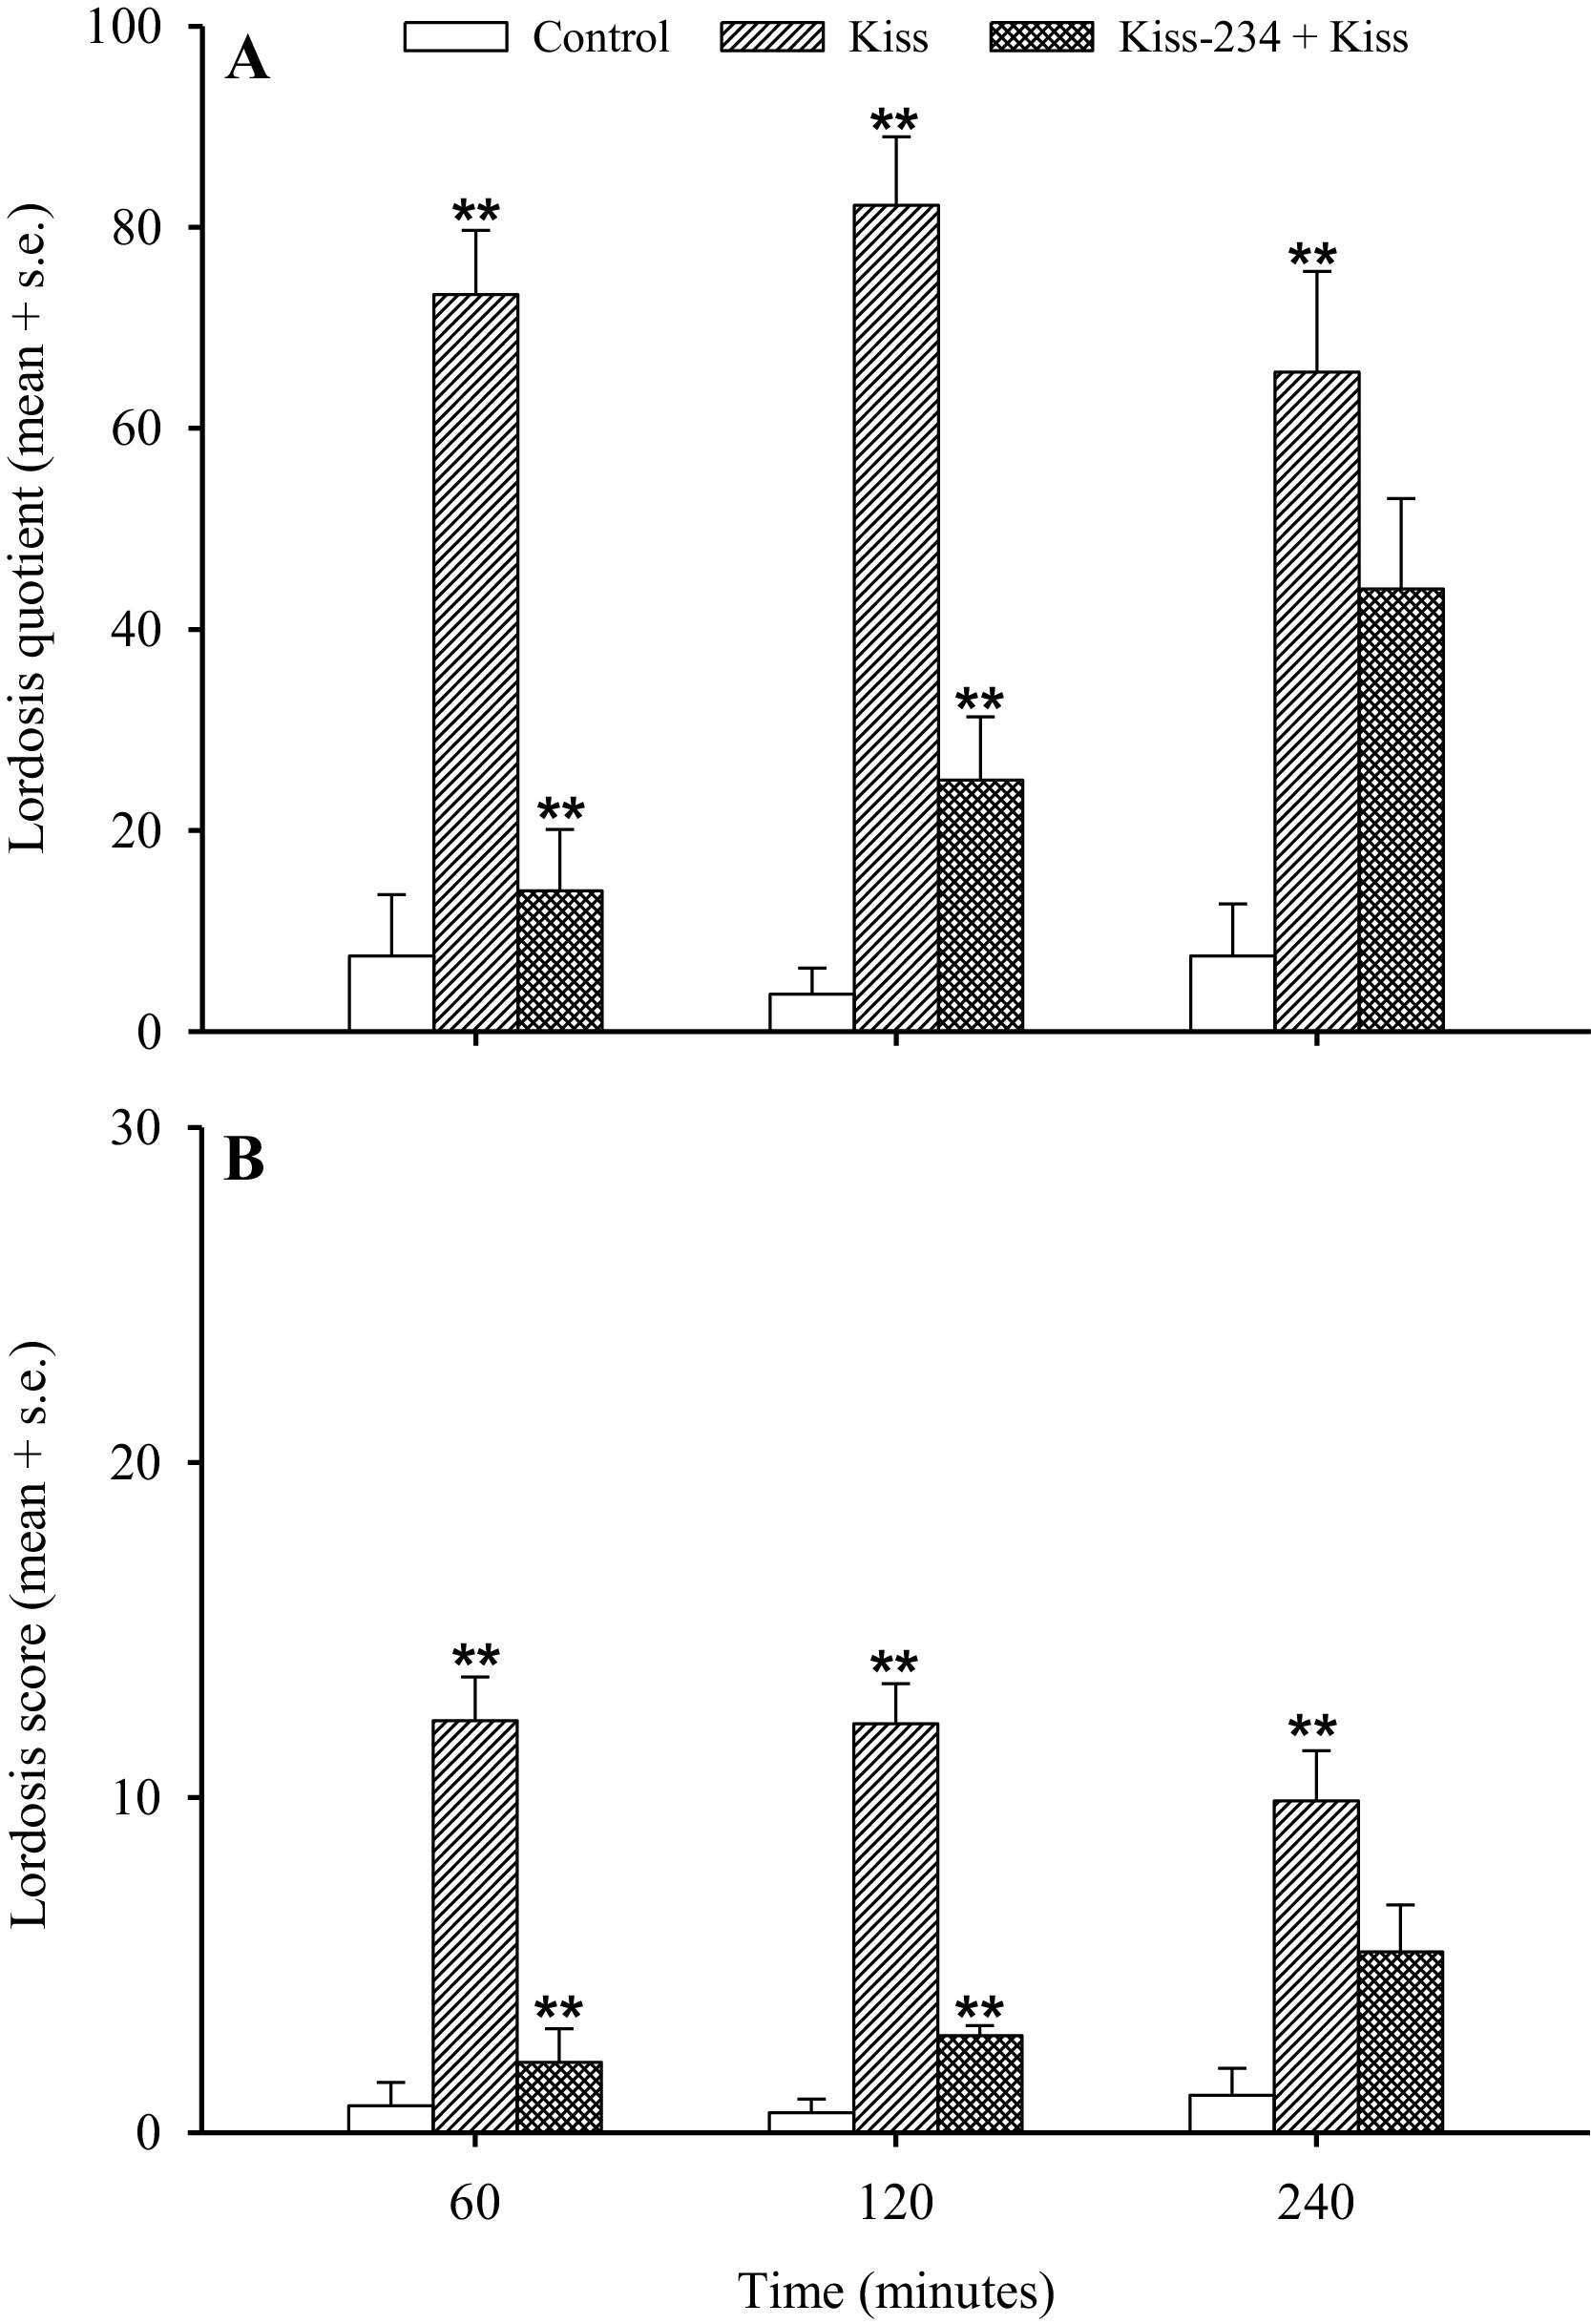
Kuva 3. Lordoosimittaukset, jotka on raportoitu kisspeptiinille altistuksen jälkeen KISS1R-antagonisti Kiss-234:n kanssa tai ilman sitä rotilla, joilta on poistettu munasarjat.[5]
Lähdetutkimuksessa verrattiin kisspeptiiniä ja kontrolliryhmiä sekä arvioitiin Kiss-234-esihoidon vaikutusta lordoosiosaan ja lordoosirefleksin intensiteettiin. Ryhmäkoot, tutkimusannokset, ajankohdat ja tilastolliset vertailut on raportoitu alkuperäisessä julkaisussa.[5]
Suvi T. Ruohonen ja kollegat loivat hiiriä, joilla oli munasoluselektiivinen Gpr54/Kiss1r-deleetio risteyttämällä Gdf9-Cre-linja Gpr54 LoxP-linjan kanssa. Tuloksena oleville OoGpr54-/--hiirille tehtiin fenotyyppiset, histologiset, hormonaaliset ja molekyylianalyysit useissa postnataalisissa iässä. Kirjoittajat raportoivat normaalista murrosiän alkamisesta, mutta etenevän ovulaation epäonnistumisesta iän myötä, mukaan lukien histologiset muutokset ja muuttuneet munasarjojen geeniekspressioprofiilit. Koska tässä tutkimuksessa käytettiin reseptorin deleetiota kisspeptiinipeptidin antamisen sijaan, sen havainnot koskevat munasarjojen KISS1R-signaloinnin biologista roolia eivätkä ole suora KP-10-altistustutkimus.[6]
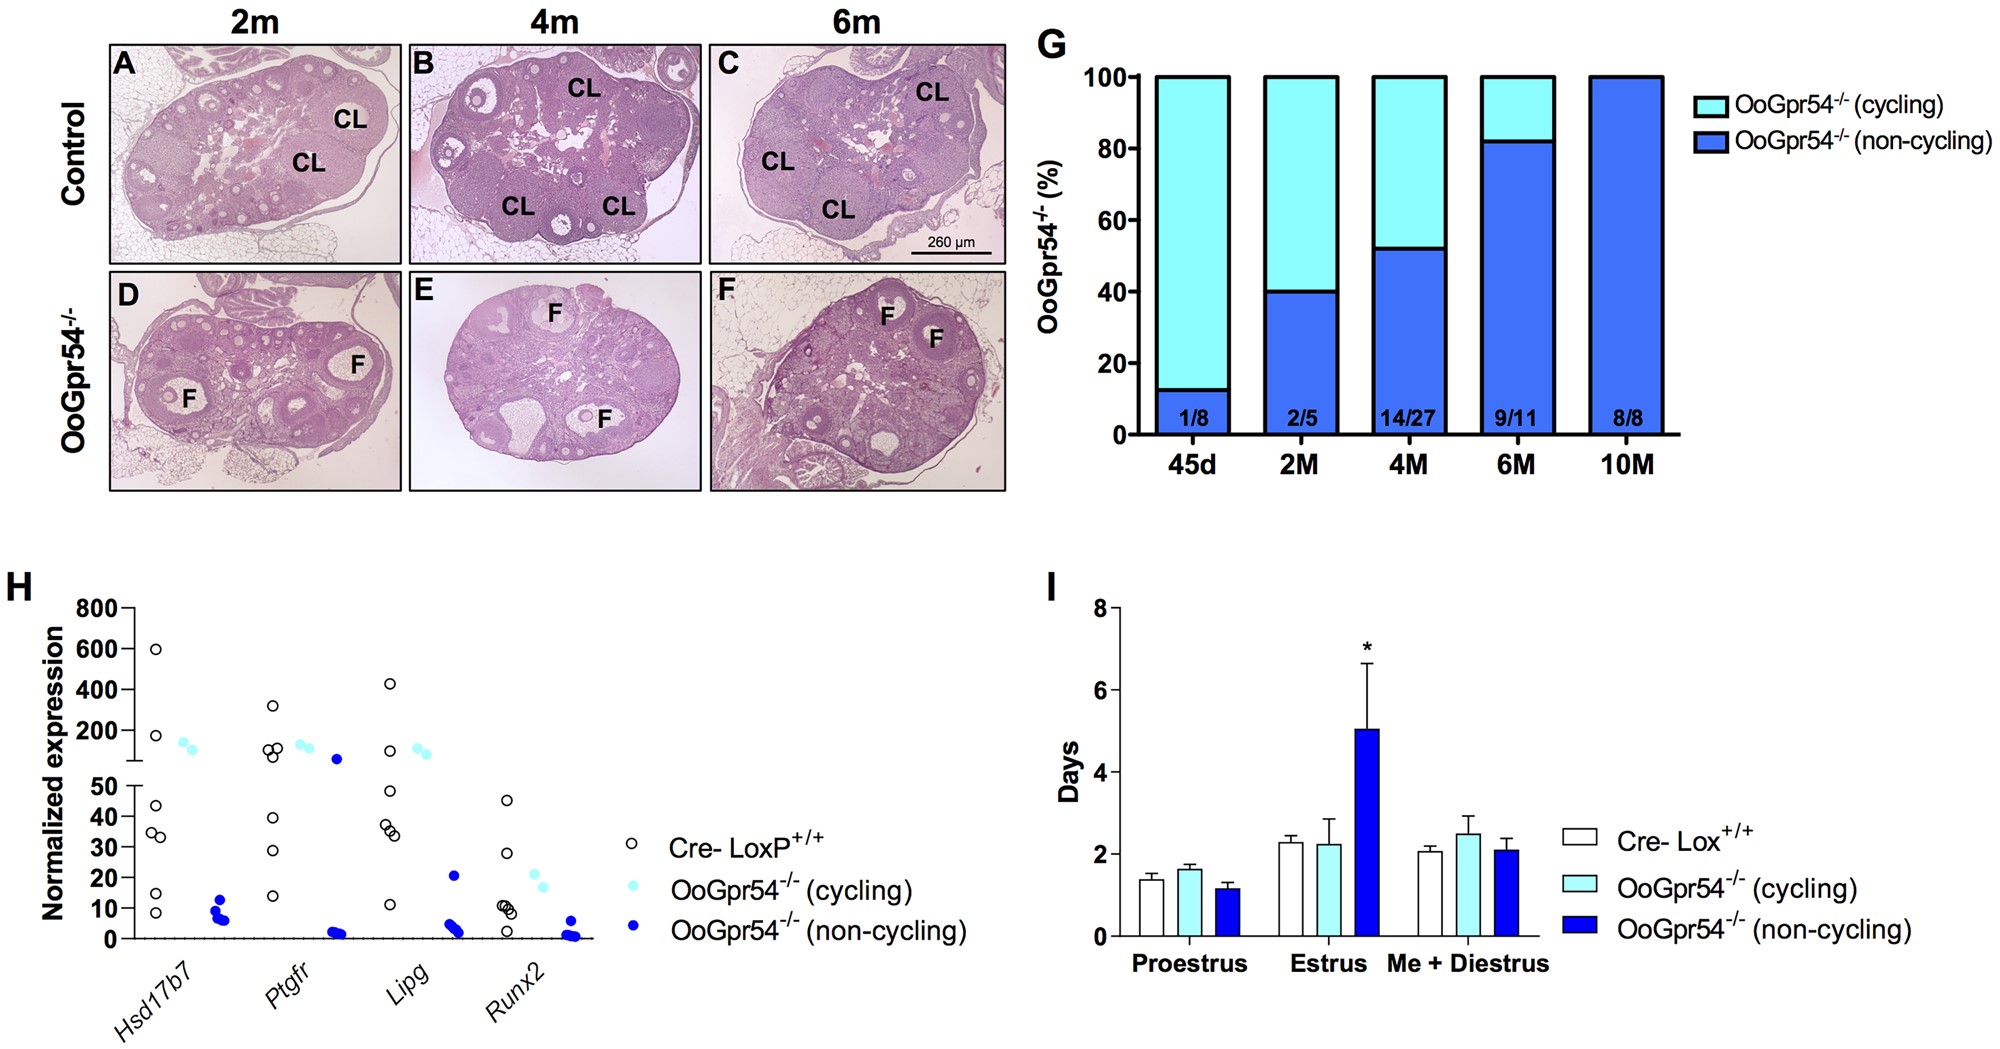
Kuva 4. Progressiivisia ovulaatiomuutoksia on raportoitu hiirillä, joilla on munasoluselektiivinen Gpr54/Kiss1r-deleetio.[6]
Paneeleissa (AF) näkyy edustava munasarjojen histologia kontrolli- ja OoGpr54-/--hiiristä ilmoitetuissa iässä. Paneeli (G) esittää yhteenvedon OoGpr54−/− -naaraiden osuudesta, joilla ei ole keltasolua, paneeli (H) esittää valitut RNA-sekvensointilöydökset ja paneeli (I) näyttää kiimakierron mittaukset. Ryhmäkoot ja tilastolliset menetelmät on raportoitu alkuperäisessä julkaisussa.[6]
Tutkimuksen rajoitukset
Yllä esitetyt tutkimukset eivät kaikki arvioi samaa kisspeptiinin molekyylimuotoa. KISS1-prekursori voidaan prosessoida useiksi bioaktiivisiksi peptideiksi, mukaan lukien KP54, KP14, KP13 ja KP10, joilla on sama C-terminaalinen dekapeptidi, mutta jotka eroavat pituudeltaan ja farmakokineettiseltä käyttäytymiseltään. Wu-tutkimuksessa käytettiin KP54:ää ja TAK448:aa, kun taas muissa siteeratuissa töissä tutkittiin endogeenistä kisspeptiinin signalointia, reseptorin knockout-malleja tai kisspeptiinivalmisteita, joita ei suunniteltu suoriksi vertailuiksi kaupalliseen KP-10-tutkimusmateriaaliin.[2,3,4,6,7]
KISS1R on luokan AG proteiiniin kytketty reseptori, ja se tunnetaan parhaiten Gq/11-signalointistaan, vaikka viimeaikaiset rakenteelliset ja toiminnalliset työt tukevat myös Gi/o-kytkentää tietyissä koeolosuhteissa.[2] Erot peptidin isoformissa, reseptorin ilmentymisessä, lajissa, kudoskontekstissa, altistusreitissä ja kokeellisessa suunnittelussa voivat vaikuttaa havaittuun vasteeseen. Hiiri- ja rottamalleista saatujen tulosten tulisi siksi pysyä sidottuina kussakin julkaisussa kuvattuihin täsmällisiin peptideihin, reseptorimalliin ja koeolosuhteisiin.[2,7]
COCER Peptides esittelee Kisspeptin-10:tä vain laboratoriotutkimukseen ja analyyttiseen käyttöön. Sitä ei ole tarkoitettu ihmis- tai eläinlääkintäkäyttöön. Yllä kuvattu tutkimus tiivistää kolmansien osapuolien julkaisuissa raportoidut havainnot, eikä se ole lausunto kliinisestä tehosta, turvallisuudesta, diagnoosista, hoidosta, ehkäisystä tai käyttöohjeesta.


