

|
1kits(10 vials)
| Dami: | |
|---|---|
▎ ng Kisspeptin Istraktura
Pinagmulan: PubChem |
Sequence:GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF Molecular Formula: C 258H 401N 79O78 Molekular na Bigat: 5857 g/mol PubChem CID:71306396 Mga kasingkahulugan: Protein KISS-1;Kisspeptins |
▎ sa Kisspeptin Pananaliksik
Molekular na Background
Ang Kisspeptin-10 (KP-10) ay isang 10-amino-acid C-terminal fragment ng kisspeptin precursor na nagmula sa KISS1. Ang pagkakasunud-sunod ng amino acid nito ay Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2), at ito ay nagbubuklod sa G protein-coupled receptor na KISS1R. Inililista ng PubChem ang Kisspeptin-10 ng tao sa ilalim ng CID 25240297, na may molecular formula na C63H83N17O14 at isang molekular na timbang na humigit-kumulang 1302.4 g/mol.[1,8]
Ang Progreso ng Pananaliksik
Zhangsong Wu at mga kasamahan ay natukoy ang mga cryo-EM na istruktura ng KISS1R-Gq at KISS1R-Gi complex na nakatali sa synthetic agonist TAK448, kasama ang isang KISS1R-Gq complex na nakatali sa endogenous KP54. Ang mga functional assay sa parehong pag-aaral ay nagpahiwatig na ang KISS1R ay maaaring mag-asawa sa Gi/o pathway bilang karagdagan sa itinatag na Gq/11 pathway. Ang mga may-akda ay nag-ulat ng mga pagkakaiba sa istruktura sa mga receptor na extracellular at intracellular na mga loop at sa interface ng Gα-subunit na maaaring mag-ambag sa pagpili ng pagkabit ng G-protein. Ginamit ng structural study na ito ang KP54 at TAK448 sa halip na KP-10 bilang mga bound ligand.[2]
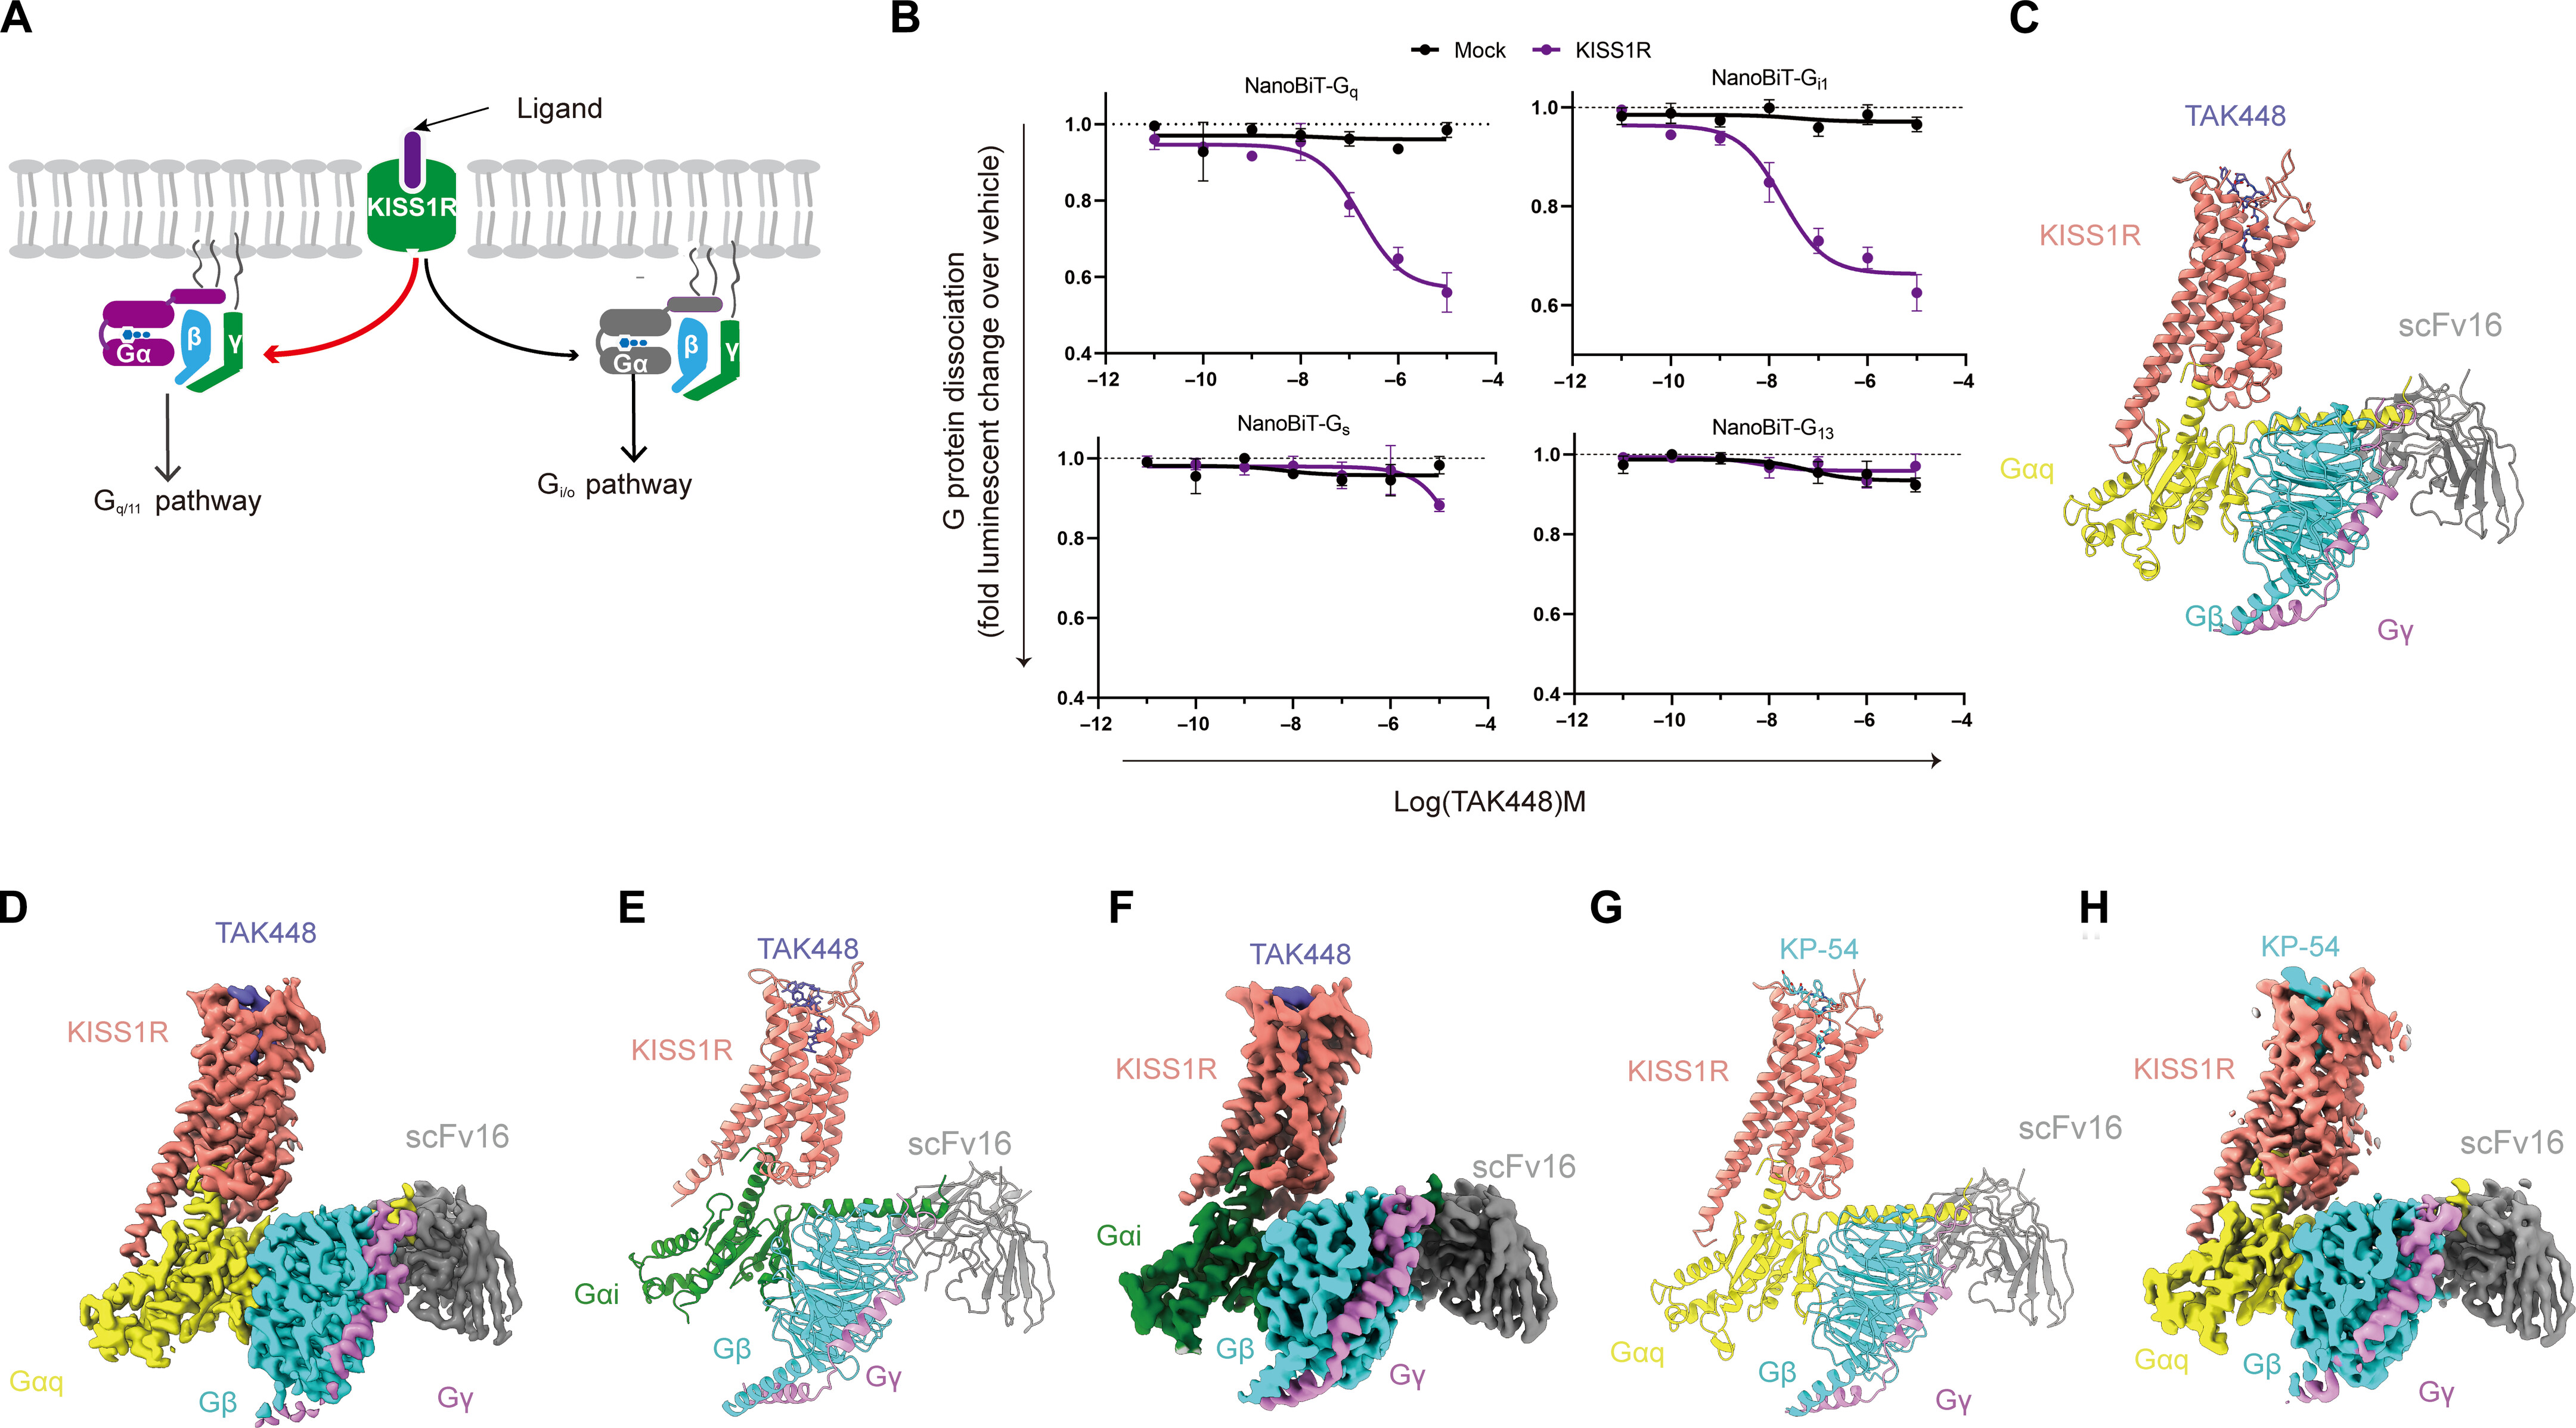
Fig1. Ang mga istrukturang Cryo-EM ng KISS1R-G protein complex ay iniulat na may TAK448 at KP54 sa binanggit na pag-aaral.[2]
(A) Ang eskematiko na representasyon ng KISS1R G-protein coupling ay sinuri sa source study. (B) NanoBiT G-protein dissociation assays para sa ipinahiwatig na mga miyembro ng G-protein kasunod ng pagkakalantad sa TAK448. (CH) Cryo-EM na mga modelo at mapa ng TAK448-KISS1R-Gq, TAK448-KISS1R-Gi, at KP54-KISS1R-Gq complex. Ang mga pang-eksperimentong kundisyon at mga detalye ng istatistika ay iniulat sa orihinal na publikasyon.[2]
Pinag-aralan nina Jenny Clarkson at Allan Herbison ang postnatal development ng kisspeptin neuron populations at ang kanilang projection sa GnRH neurons sa mga daga. Gamit ang isang antiserum na nakataas laban sa kisspeptin-10 ng mouse, natukoy nila ang mga populasyon ng kisspeptin-immunoreactive sa anteroventral periventricular/preoptic periventricular region, dorsomedial hypothalamus, at arcuate nucleus. Ang mga may-akda ay nag-ulat ng isang minarkahang pagkakaiba-iba ng babaeng nangingibabaw sa mga numero ng AVPV/PeN kisspeptin neuron at naobserbahan ang malapit na mga apposition sa pagitan ng mga kisspeptin fibers at GnRH neuron cell body na umuusbong sa panahon ng postnatal development. Ang gawaing ito ay naglalarawan ng endogenous neuronal expression at pag-unlad sa halip na ang mga epekto ng isang panlabas na ibinibigay na materyal na KP-10.[3]
Alexander S. Kauffman at mga kasamahan ay gumamit ng adult wild-type (WT) at GPR54/KISS1R knockout (KO) na mga daga upang suriin ang papel ng kisspeptin-receptor signaling sa sexually dimorphic na pag-uugali at neural development. Ang pinalitan ng hormone na GPR54 KO na mga lalaki at babae ay nagpapanatili ng sex-typical na copulatory behavior, habang ang mga pagkakaiba ay naobserbahan sa olfactory partner preference at sa ilang sexually dimorphic neural traits. Napagpasyahan ng mga may-akda na ang pagsenyas ng GPR54 ay hindi kinakailangan para sa pag-uugali ng pang-adulto sa ilalim ng mga kundisyon ng pagpapalit ng hormone na ginamit, ngunit ito ay kasangkot sa pagbuo ng mga napiling sexually dimorphic na katangian.[4]
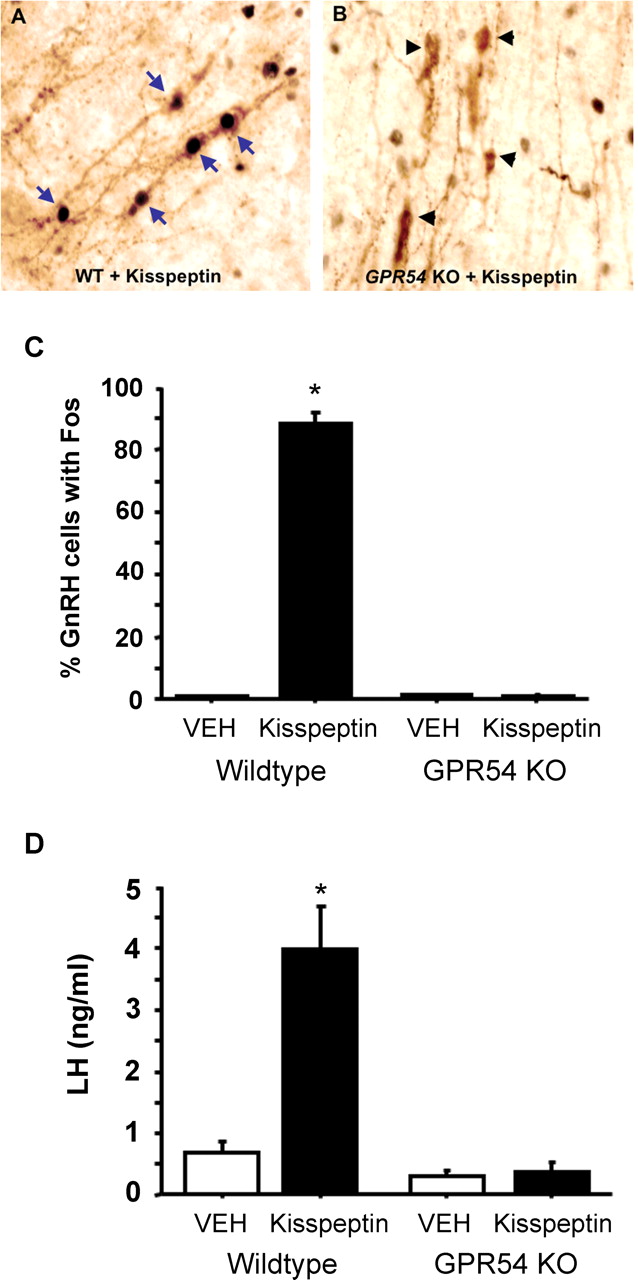
Fig2. Ang immunoreactivity ng GnRH-neuron Fos at mga sukat ng LH ng plasma ay iniulat pagkatapos ng pagkakalantad ng intracerebroventricular kisspeptin sa WT at GPR54 KO na mga daga ng lalaki.[4]
*p <0.05 kumpara sa grupong WT na ginagamot sa sasakyan, gaya ng iniulat sa orihinal na pag-aaral.[4]
Sinuri ni Oscar González-Flores at mga kasamahan ang intracerebroventricular kisspeptin exposure sa mga ovariectomized na daga na may estradiol benzoate. Sinukat ng mga may-akda ang lordosis quotient at lordosis reflex intensity at pagkatapos ay ginamit ang KISS1R antagonist na Kiss-234, ang progesterone receptor antagonist na RU486, at ang GnRH-1 receptor antagonist antide upang suriin ang paglahok ng receptor. Ang pagkakalantad sa Kisspeptin ay nauugnay sa mas mataas na mga sukat ng lordosis sa modelo ng daga, habang ang antagonist na pretreatment ay nagbawas ng tugon sa mga napiling oras. Sinuportahan ng mga natuklasan ang paglahok ng KISS1R, progesterone-receptor, at GnRH-receptor signaling sa ilalim ng mga kondisyon ng pag-aaral.[5]
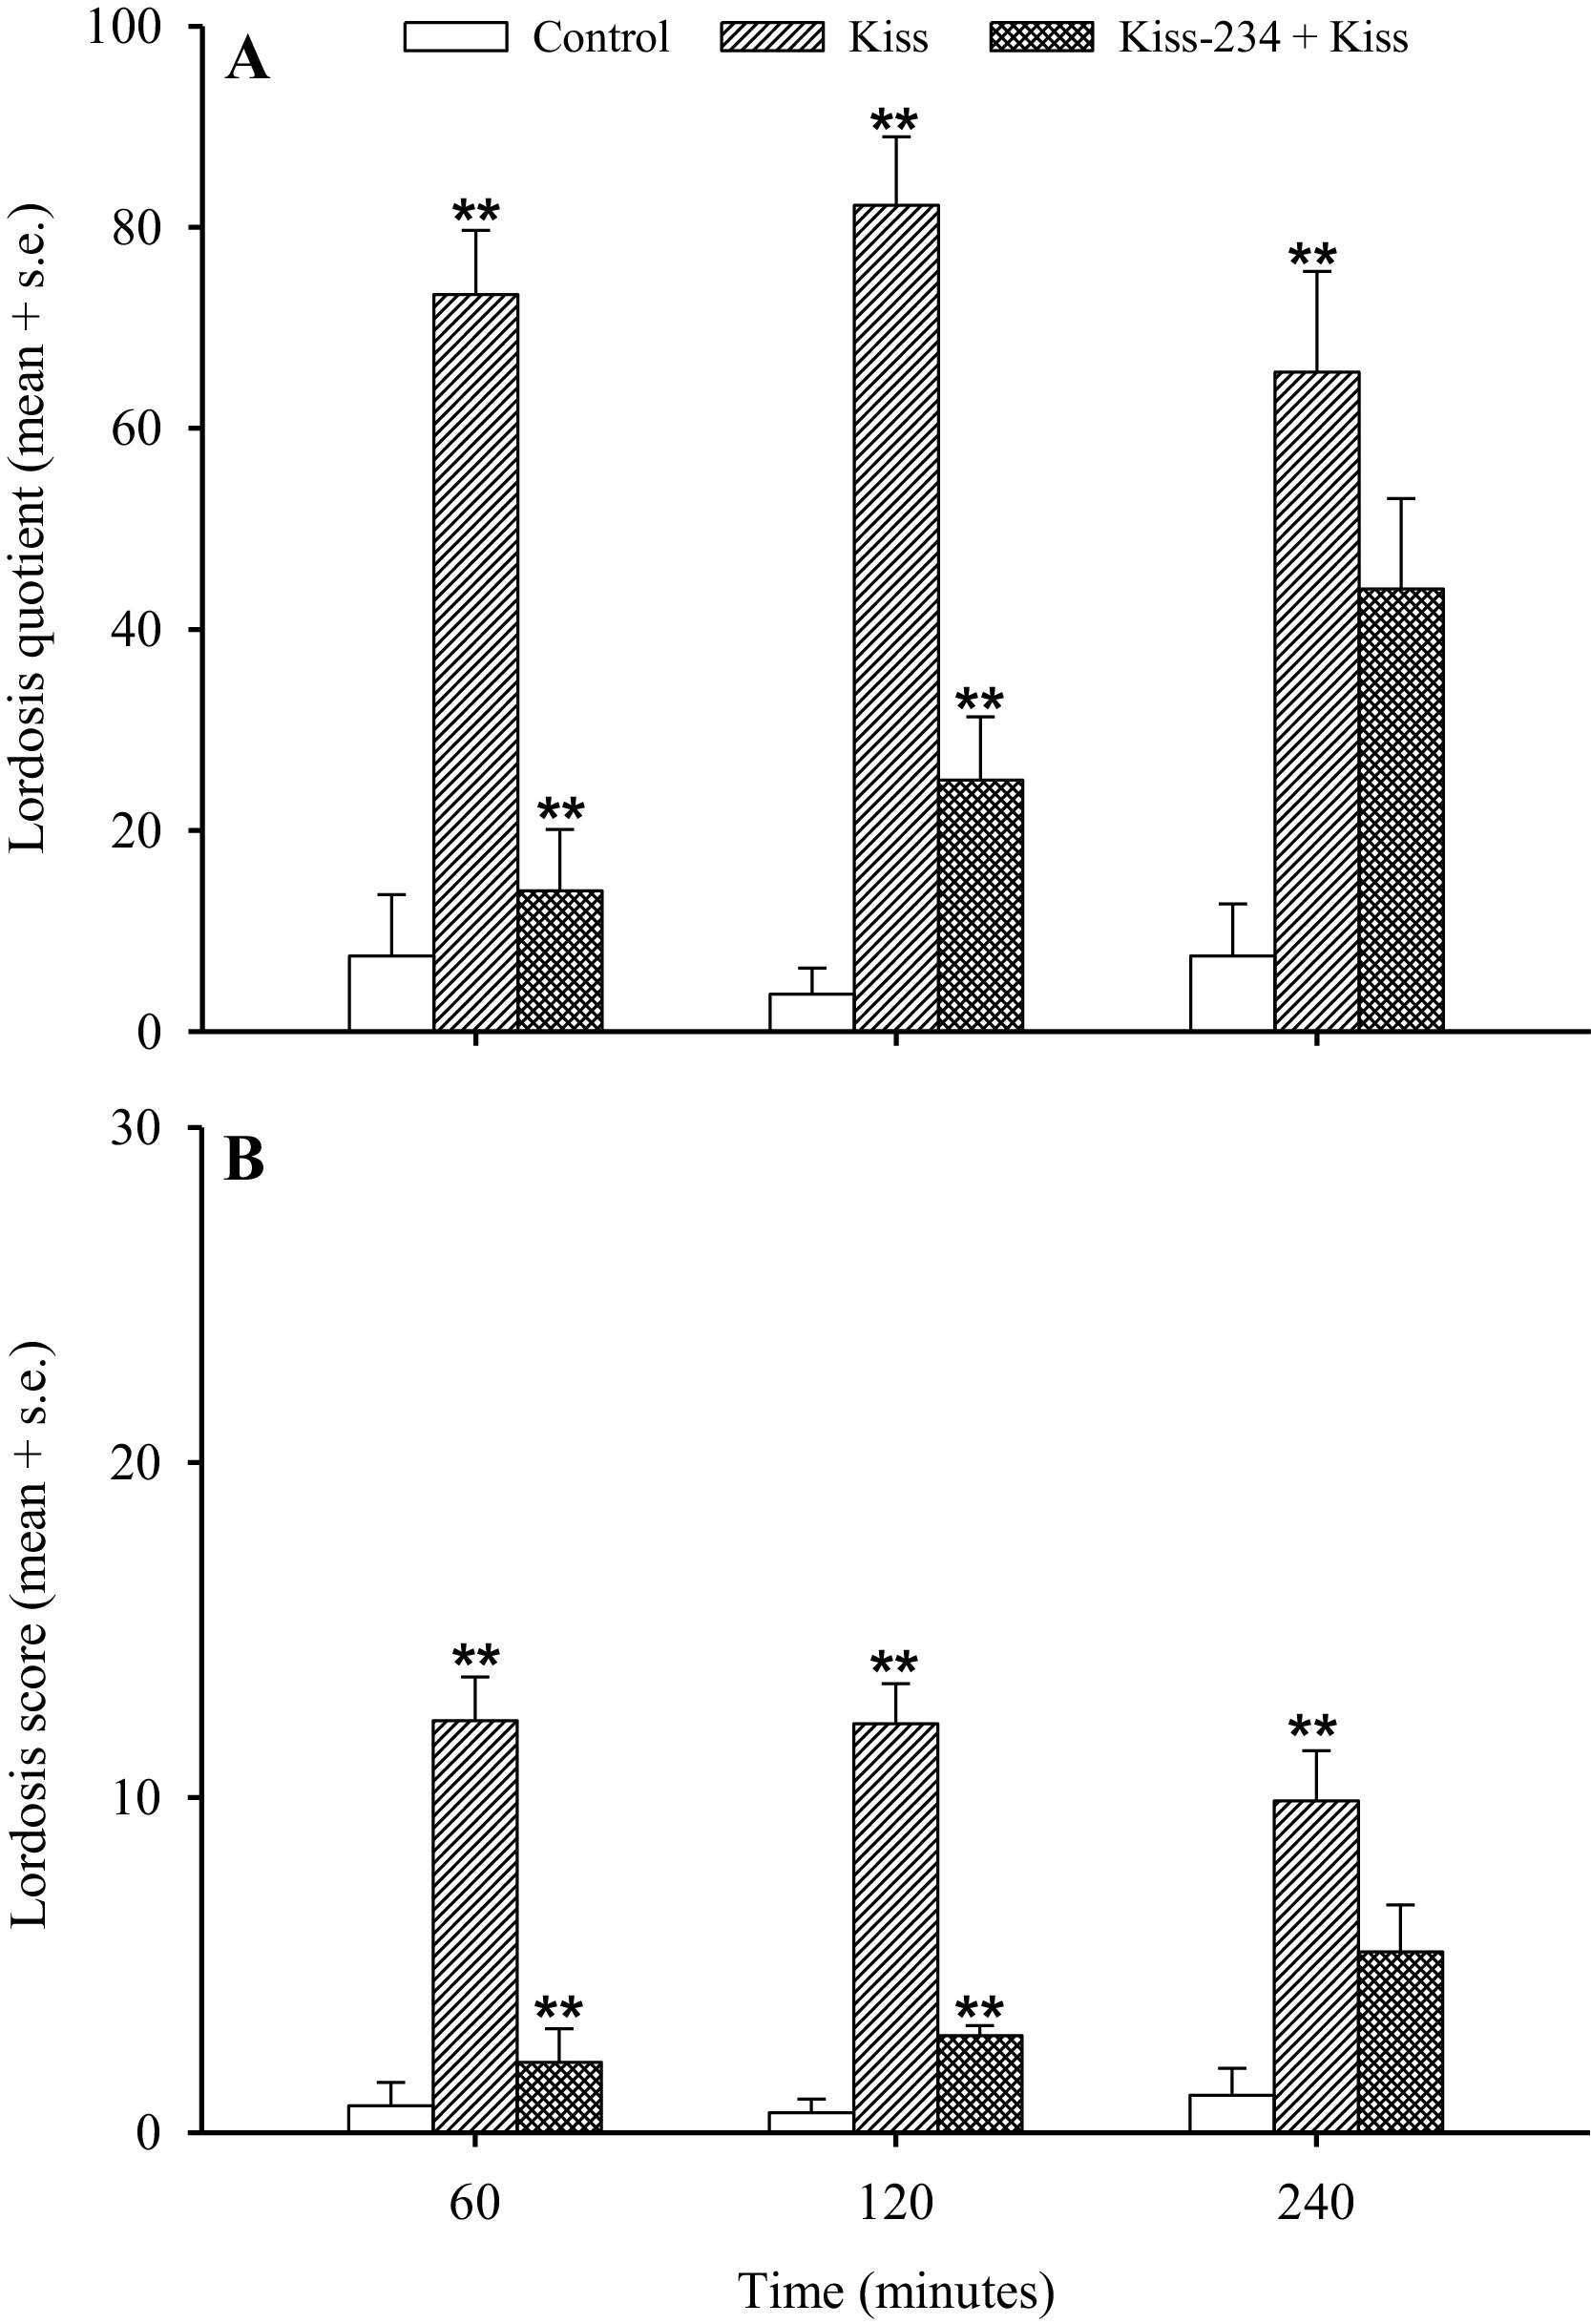
Fig3. Iniulat ang mga sukat ng Lordosis pagkatapos ng pagkakalantad ng kisspeptin na mayroon o wala ang KISS1R antagonist na Kiss-234 sa mga ovariectomized na daga.[5]
Inihambing ng pinagmumulan ng pag-aaral ang kisspeptin at control group at sinuri ang epekto ng Kiss-234 pretreatment sa lordosis quotient at lordosis reflex intensity. Ang mga laki ng grupo, mga dosis ng pag-aaral, mga punto ng oras, at mga paghahambing sa istatistika ay iniulat sa orihinal na publikasyon.[5]
Si Suvi T. Ruohonen at mga kasamahan ay nakabuo ng mga daga na may oocyte-selective na pagtanggal ng Gpr54/Kiss1r sa pamamagitan ng pagtawid sa linya ng Gdf9-Cre na may linya ng Gpr54 LoxP. Ang nagresultang OoGpr54−/− mice ay sumailalim sa phenotypic, histological, hormonal, at molecular analysis sa ilang postnatal na edad. Ang mga may-akda ay nag-ulat ng normal na pagsisimula ng pagdadalaga ngunit ang progresibong ovulatory failure sa edad, kabilang ang mga pagbabago sa histological at binago ang mga profile ng ovarian gene-expression. Dahil ang pag-aaral na ito ay gumamit ng pagtanggal ng receptor sa halip na pangangasiwa ng isang kisspeptin peptide, ang mga natuklasan nito ay may kinalaman sa biyolohikal na papel ng ovarian KISS1R signaling at hindi isang direktang pag-aaral sa pagkakalantad sa KP-10.[6]
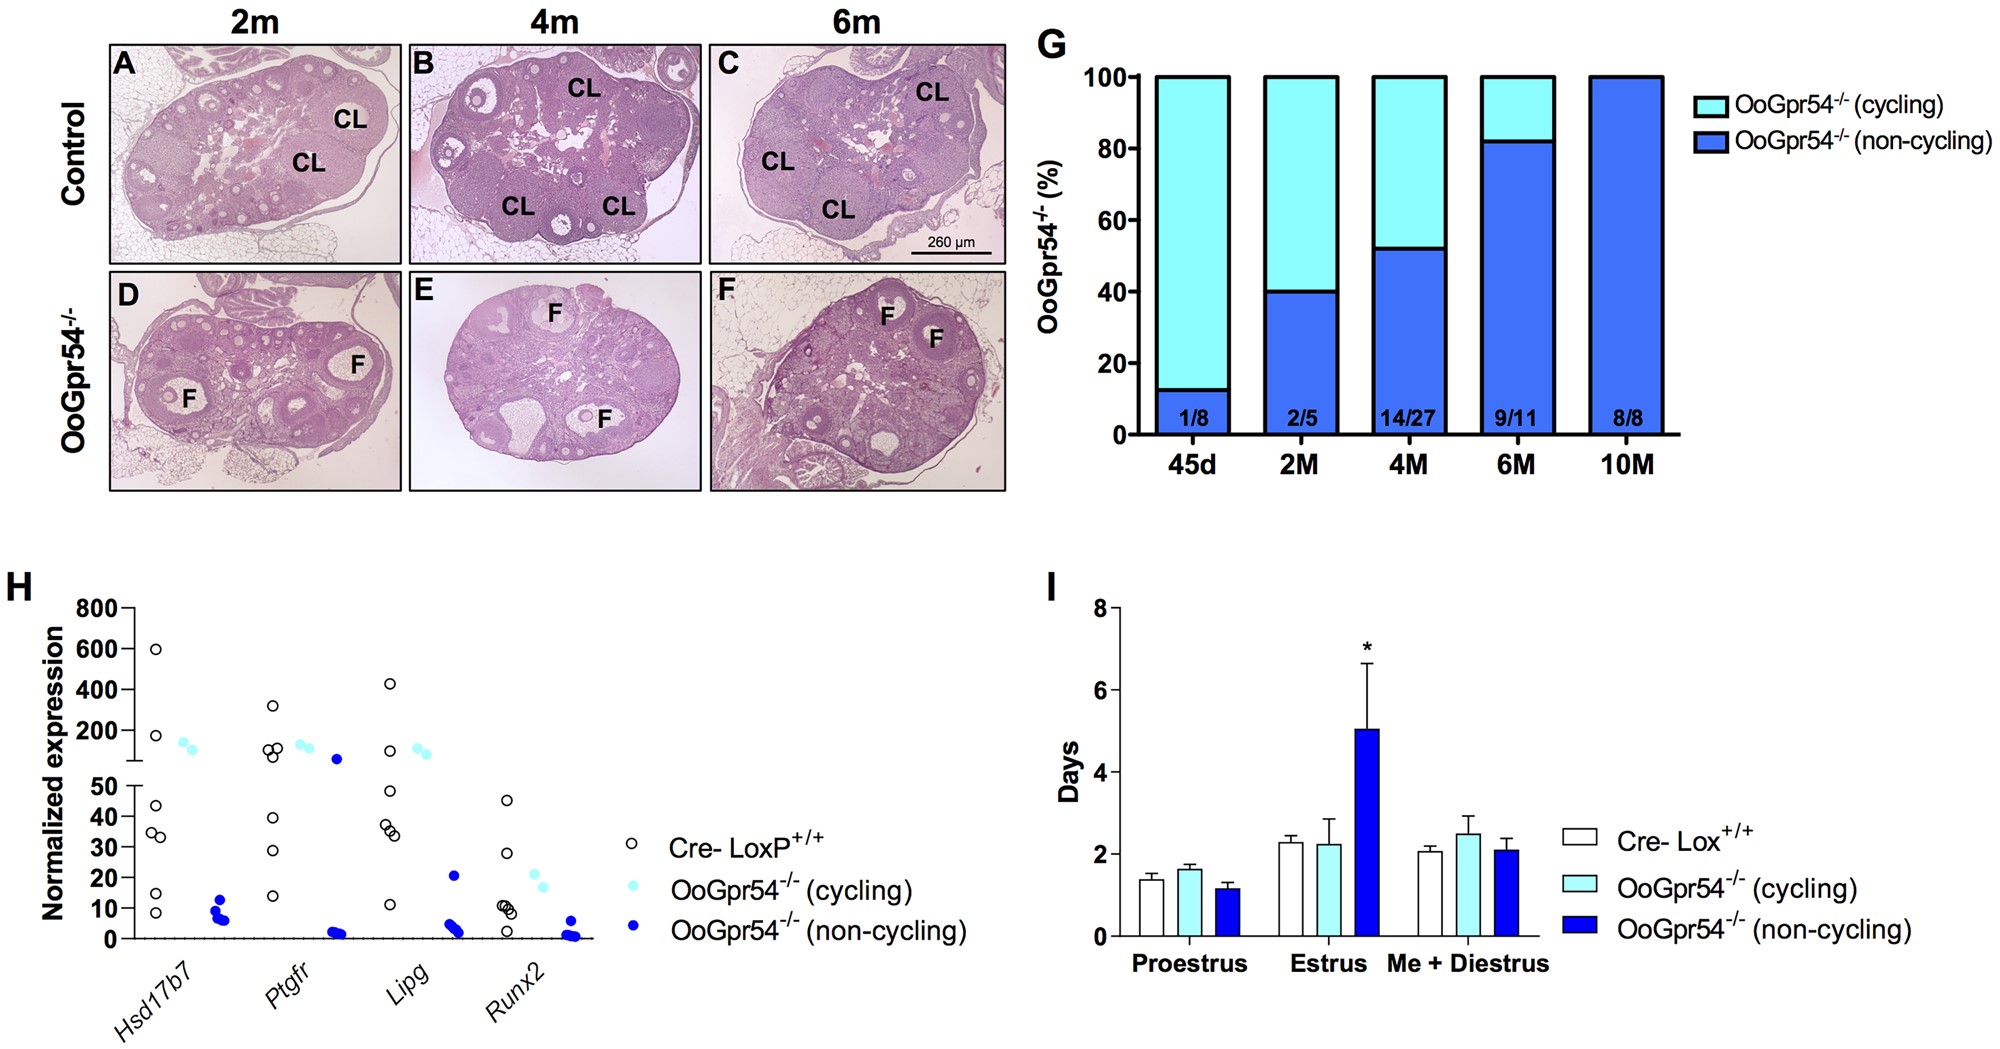
Fig4. Ang mga progresibong pagbabago sa ovulatory ay iniulat sa mga daga na may oocyte-selective na Gpr54/Kiss1r na pagtanggal.[6]
Ang mga panel (AF) ay nagpapakita ng kinatawan ng ovarian histology mula sa control at OoGpr54−/− mice sa mga ipinahiwatig na edad. Binubuod ng Panel (G) ang proporsyon ng OoGpr54−/− mga babaeng walang corpora lutea, ang panel (H) ay nagpapakita ng mga napiling RNA-sequencing findings, at ang panel (I) ay nagpapakita ng estrous-cycle measurements. Ang mga laki ng grupo at mga pamamaraan ng istatistika ay iniulat sa orihinal na publikasyon.[6]
Mga Limitasyon sa Pananaliksik
Ang mga pag-aaral na buod sa itaas ay hindi lahat ay sinusuri ang parehong kisspeptin molecular form. Ang KISS1 precursor ay maaaring iproseso sa maraming bioactive peptides, kabilang ang KP54, KP14, KP13, at KP10, na nagbabahagi ng parehong C-terminal decapeptide ngunit naiiba sa haba at pharmacokinetic na pag-uugali. Ang pag-aaral ng Wu ay gumamit ng KP54 at TAK448, habang sinuri ng ibang binanggit na gawain ang endogenous kisspeptin signaling, receptor knockout na mga modelo, o mga paghahanda ng kisspeptin na hindi idinisenyo bilang direktang paghahambing ng isang komersyal na materyal sa pananaliksik na KP-10.[2,3,4,6,7]
Ang KISS1R ay isang class AG protein-coupled receptor at kilala sa Gq/11 signaling, bagama't ang kamakailang structural at functional na trabaho ay sumusuporta din sa pag-coupling sa Gi/o sa ilalim ng mga partikular na eksperimentong kondisyon.[2] Ang mga pagkakaiba sa peptide isoform, expression ng receptor, species, konteksto ng tissue, ruta ng pagkakalantad, at eksperimentong disenyo ay maaaring makaimpluwensya sa naobserbahang tugon. Samakatuwid, ang mga resulta mula sa mga modelo ng mouse at daga ay dapat manatiling nakatali sa eksaktong peptide, modelo ng receptor, at mga eksperimentong kondisyon na inilarawan sa bawat publikasyon.[2,7]
Ang COCER Peptides ay nagtatanghal ng Kisspeptin-10 para lamang sa pagsasaliksik sa laboratoryo at paggamit ng analytical. Hindi ito inilaan para sa paggamit ng tao o beterinaryo. Ang pananaliksik na inilarawan sa itaas ay nagbubuod ng mga natuklasan na iniulat sa mga third-party na publikasyon at hindi isang pahayag ng klinikal na bisa, kaligtasan, diagnosis, paggamot, pag-iwas, o isang pagtuturo para sa paggamit.


