

|
1 комплект (10 флаконів)
| кількість: | |
|---|---|
▎ кіспептину Структура
Джерело: PubChem |
Послідовність: GTSLSPPPESSGSRQQPGLSAPHSRQIPAPQGAVLVQREKDLPNYNWNSFGLRF Молекулярна формула: C 258H 401N 79O78 Молекулярна маса: 5857 г/моль PubChem CID: 71306396 Синоніми: протеїн KISS-1;Кісспептини |
▎ Kisspeptin Research
Молекулярна фону
Кіспептин-10 (KP-10) є С-кінцевим фрагментом із 10 амінокислот попередника кіспептину, отриманого з KISS1. Його амінокислотна послідовність Tyr-Asn-Trp-Asn-Ser-Phe-Gly-Leu-Arg-Phe-NH2 (YNWNSFGLRF-NH2), і він зв’язує G-білковий рецептор KISS1R. PubChem перераховує людський Kisspeptin-10 під CID 25240297, з молекулярною формулою C63H83N17O14 і молекулярною масою приблизно 1302,4 г/моль [1,8].
Прогрес дослідження
Zhangsong Wu та його колеги визначили кріо-ЕМ структури комплексів KISS1R-Gq і KISS1R-Gi, пов’язаних із синтетичним агоністом TAK448, разом із комплексом KISS1R-Gq, зв’язаним з ендогенним KP54. Функціональні аналізи в тому ж дослідженні показали, що KISS1R може з’єднуватися з шляхом Gi/o на додаток до встановленого шляху Gq/11. Автори повідомили про структурні відмінності в позаклітинних і внутрішньоклітинних петлях рецепторів і в інтерфейсі Gα-субодиниці, які можуть сприяти селективності сполучення G-білка. Це структурне дослідження використовувало KP54 і TAK448, а не KP-10 як зв'язані ліганди.[2]
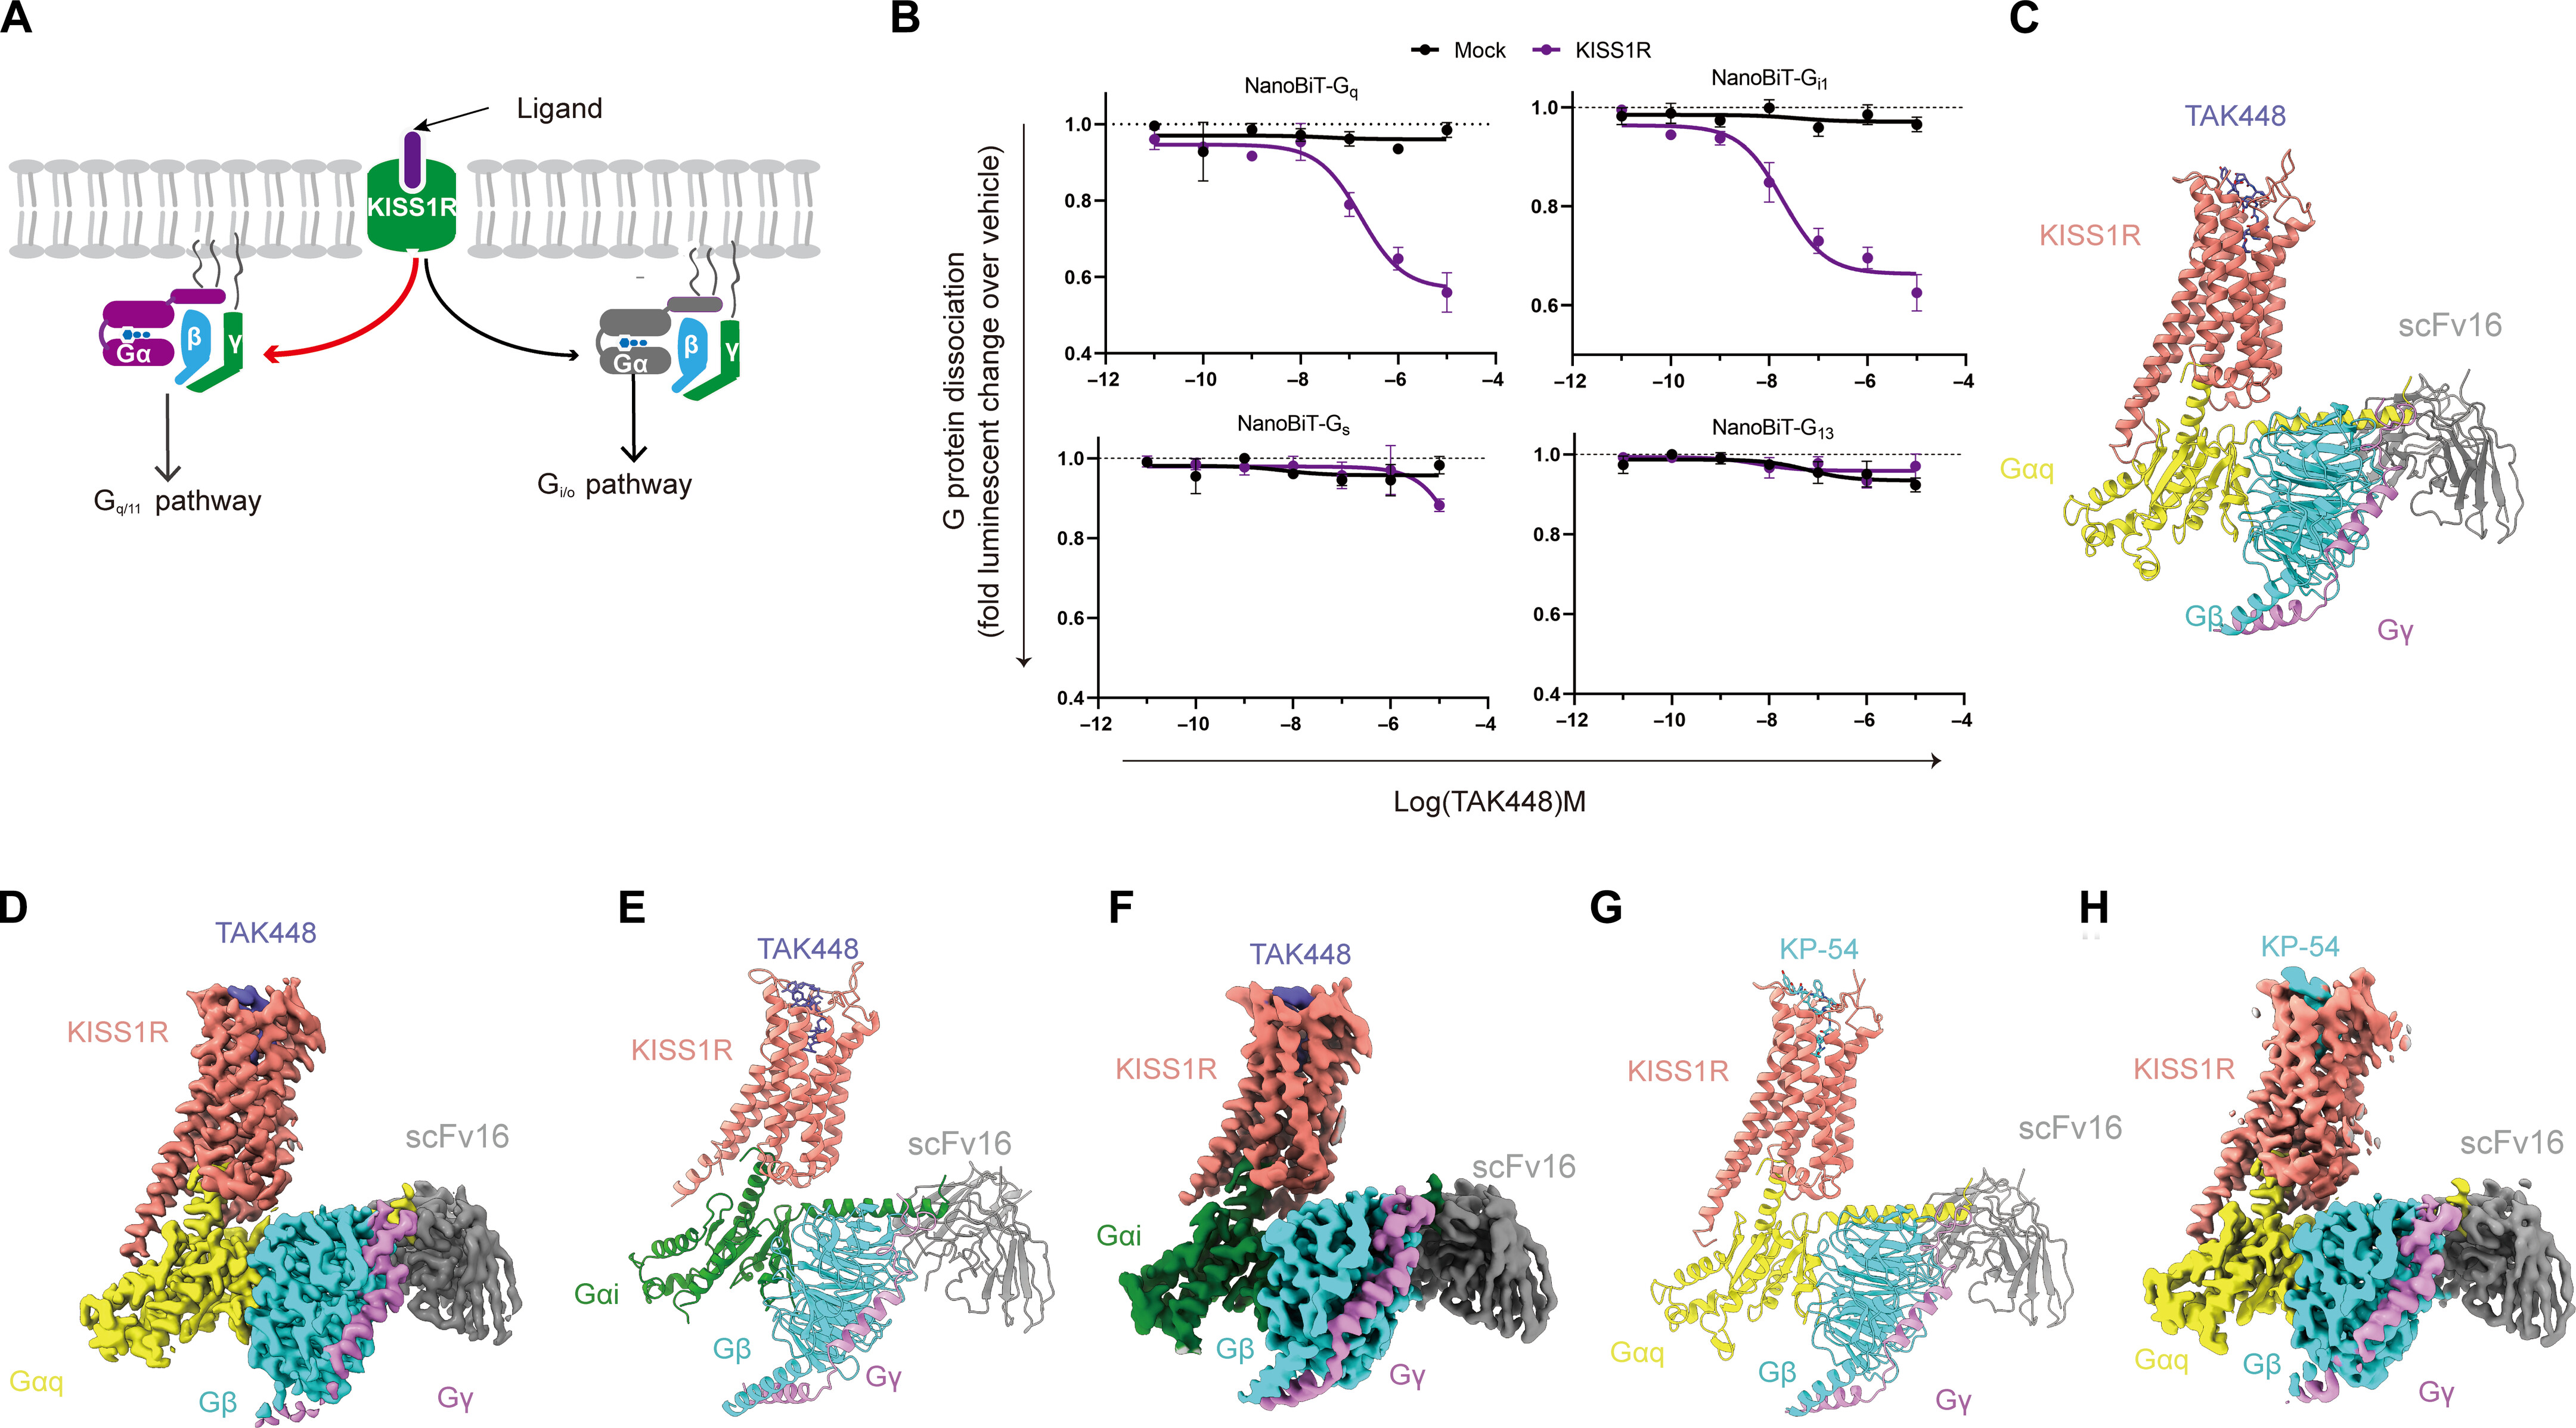
Рис.1. Кріо-ЕМ структури білкових комплексів KISS1R-G, про які повідомлялося з TAK448 і KP54 у цитованому дослідженні.[2]
(A) Схематичне зображення сполучення G-білка KISS1R, дослідженого в дослідженні джерела. (B) Аналізи дисоціації G-білка NanoBiT для вказаних членів G-білка після впливу TAK448. (CH) Cryo-EM моделі та карти комплексів TAK448-KISS1R-Gq, TAK448-KISS1R-Gi та KP54-KISS1R-Gq. Експериментальні умови та статистичні подробиці наведені в оригінальній публікації.[2]
Дженні Кларксон і Аллан Гербісон вивчали постнатальний розвиток популяцій нейронів кіспептину та їх проекції на нейрони GnRH у мишей. Використовуючи антисироватку, отриману проти мишачого кіспептину-10, вони ідентифікували імунореактивні популяції кіспептину в передньовентральній перивентрикулярній/преоптичній перивентрикулярній області, дорсомедіальному гіпоталамусі та дугоподібному ядрі. Автори повідомили про помітну домінантну різницю між жінками в кількості нейронів кіспептину AVPV/PeN і спостерігали близьке розташування між волокнами кіспептину та тілами нейронних клітин GnRH, що виникають під час постнатального розвитку. Ця робота характеризувала експресію та розвиток ендогенних нейронів, а не вплив зовнішнього матеріалу KP-10.[3]
Alexander S. Kauffman і його колеги використовували дорослих мишей дикого типу (WT) і GPR54/KISS1R нокаутних (KO) мишей, щоб дослідити роль передачі сигналів через кіспептин-рецептор у статевій диморфній поведінці та нейронному розвитку. Чоловіки та жінки GPR54 KO із заміною гормону зберігали типову для статі копулятивну поведінку, тоді як відмінності спостерігалися в перевагах нюхового партнера та в кількох статево диморфних нервових рисах. Автори прийшли до висновку, що передача сигналів GPR54 не потрібна для копулятивної поведінки дорослої людини в умовах заміни гормонів, але бере участь у розвитку вибраних ознак статевої диморфії.[4]
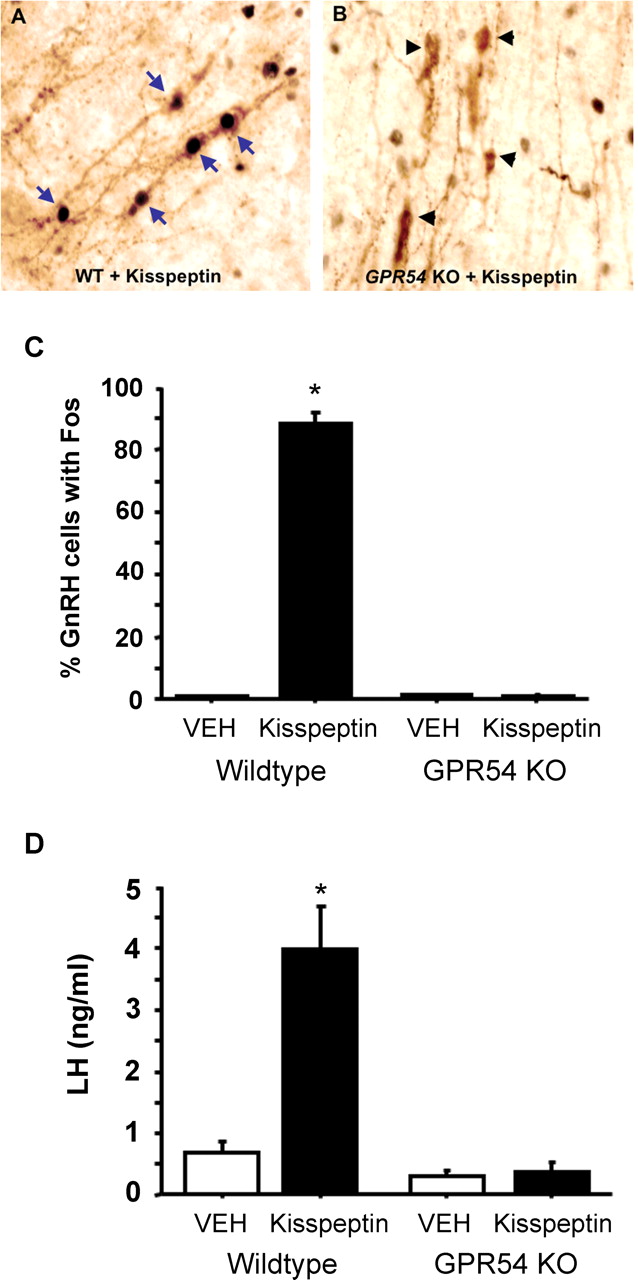
Рис.2. Імунореактивність GnRH-нейрона Fos і вимірювання ЛГ в плазмі, про які повідомлялося після інтрацеребровентрикулярного впливу кіспептину на самців мишей WT і GPR54 KO.[4]
*p <0,05 порівняно з групою WT, яка отримувала розчинник, як повідомлялося в оригінальному дослідженні.[4]
Оскар Гонсалес-Флорес і його колеги досліджували інтрацеребровентрикулярну експозицію кісспептину у щурів з оваріектомією, які отримували естрадіол бензоат. Автори виміряли коефіцієнт лордозу та інтенсивність рефлексу лордозу, а потім використали антагоніст KISS1R Kiss-234, антагоніст рецептора прогестерону RU486 та антид антагоніста рецептора GnRH-1, щоб дослідити участь рецептора. Експозиція кіспептину була пов’язана з більш високими вимірюваннями лордозу в моделі щурів, тоді як попереднє лікування антагоністом зменшувало відповідь у вибрані моменти часу. Результати підтвердили участь KISS1R, рецепторів прогестерону та рецепторів GnRH в умовах дослідження.[5]
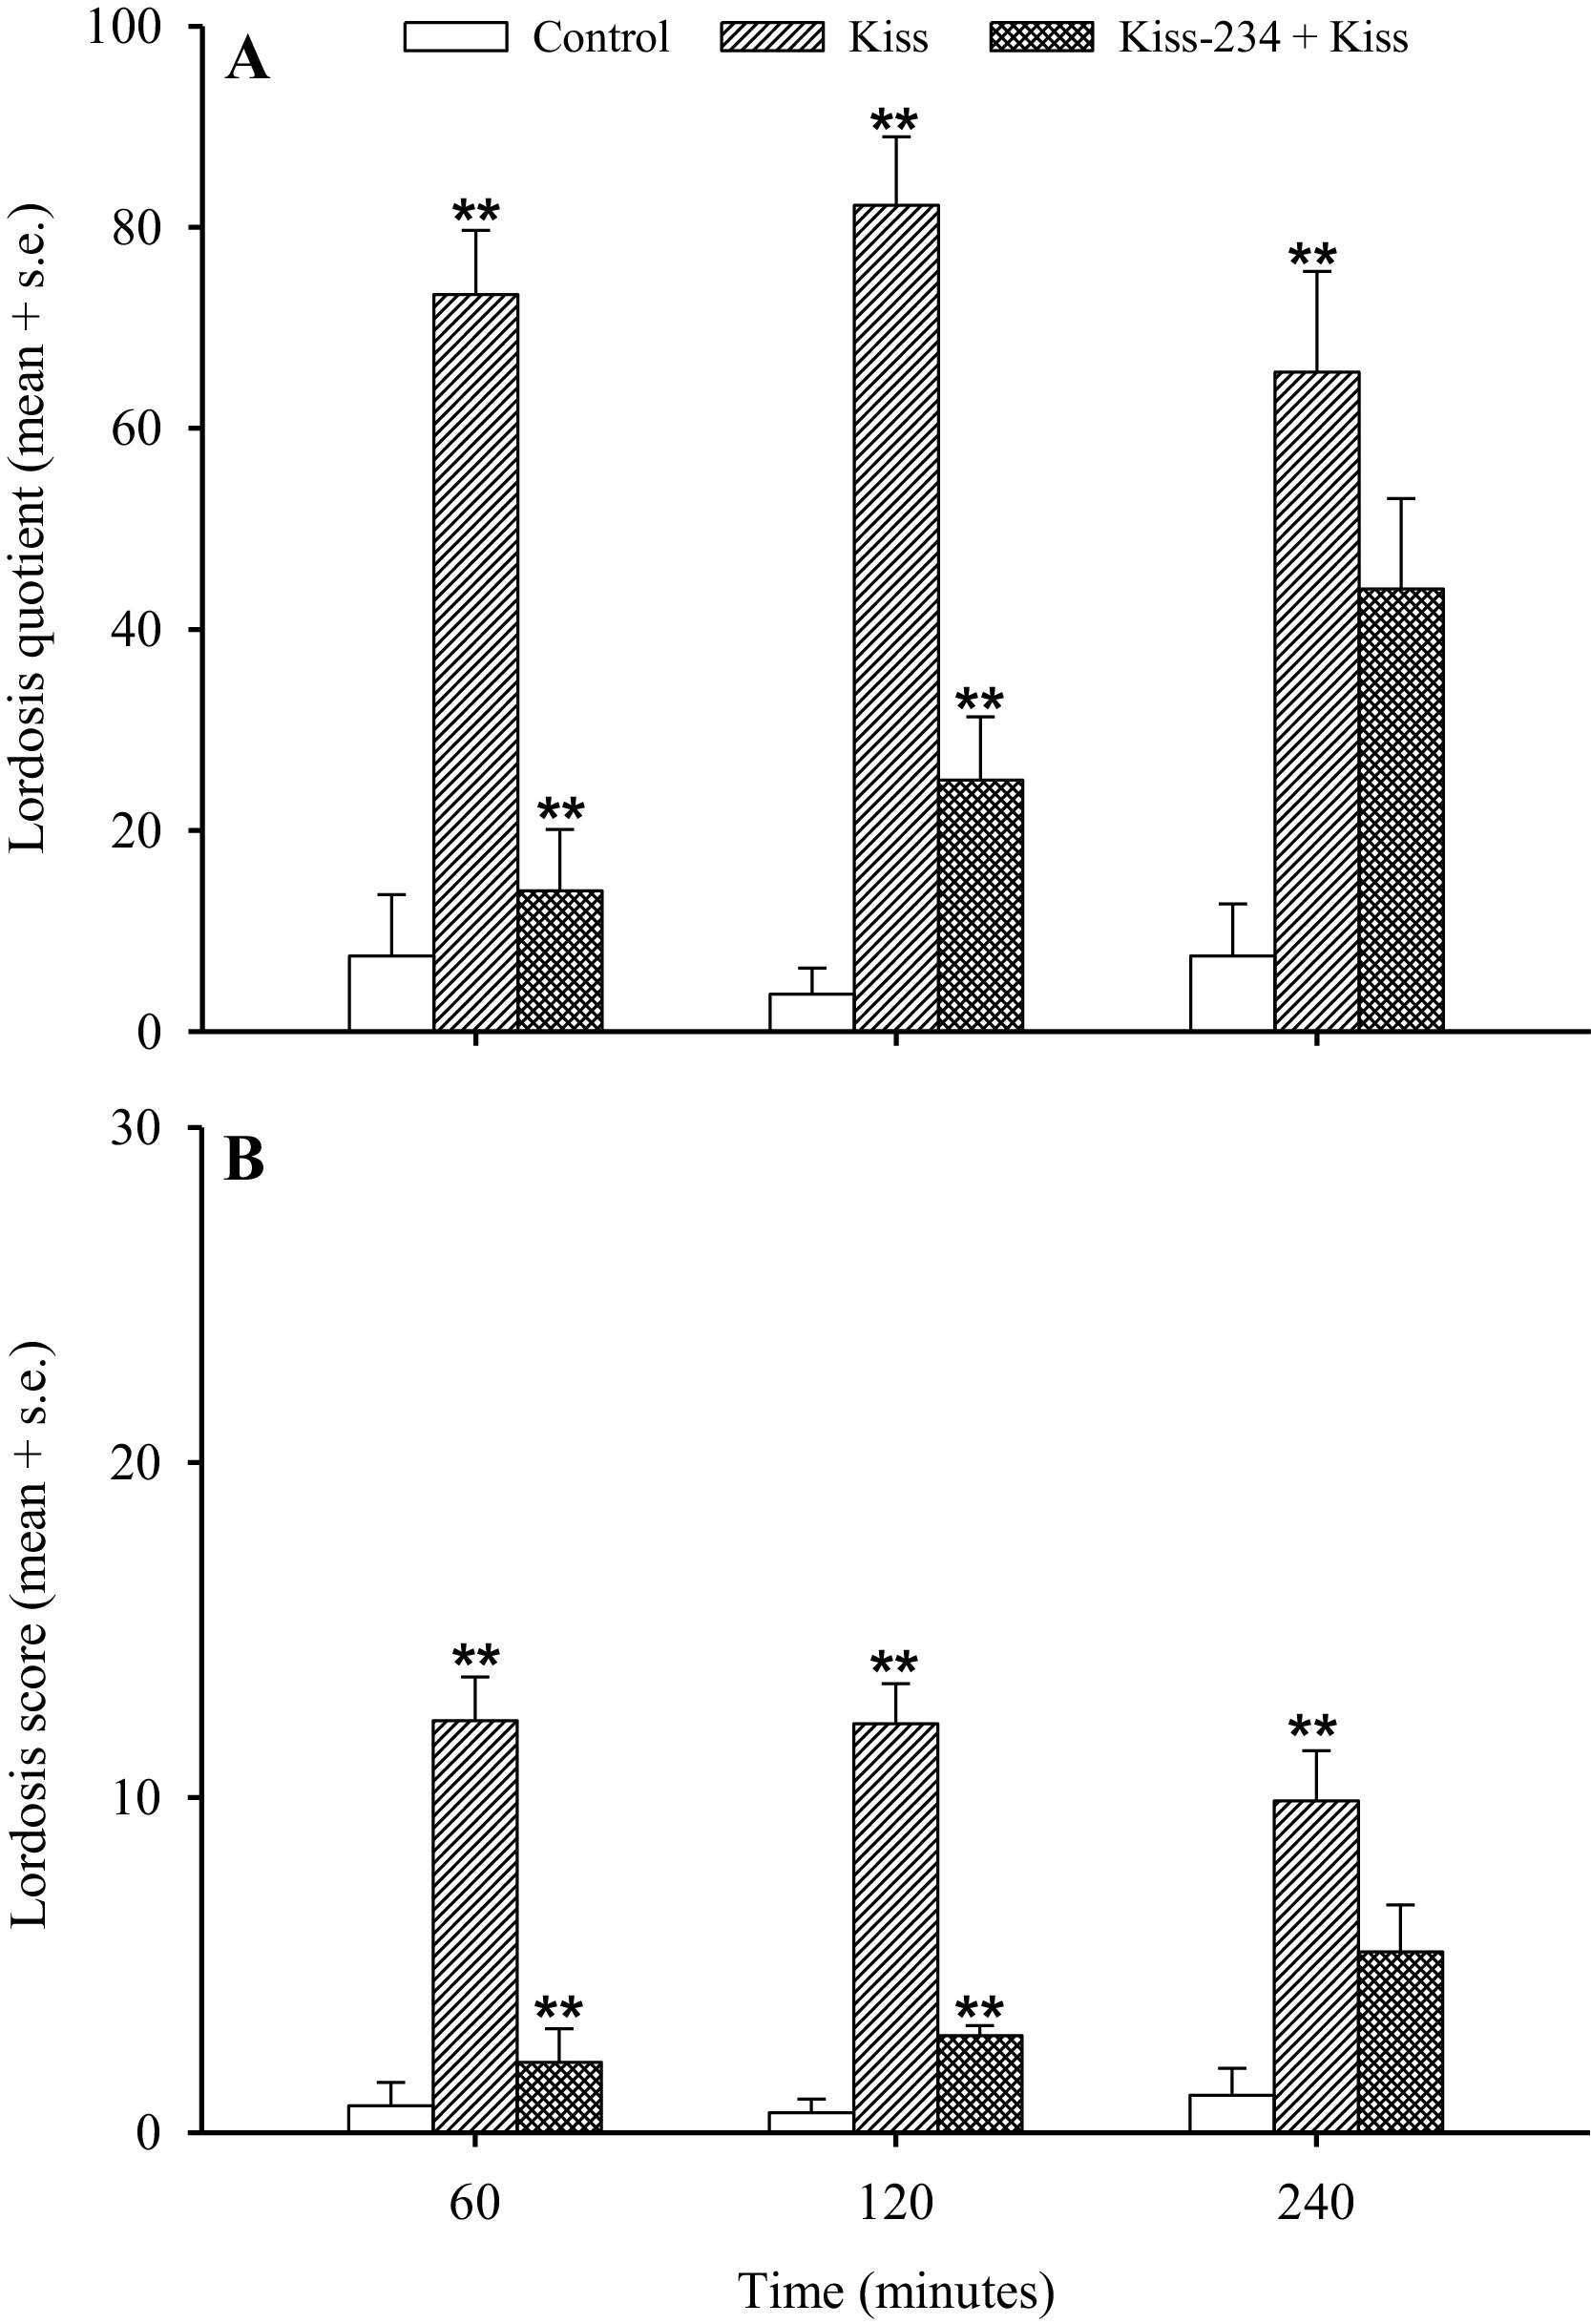
Рис.3. Повідомлялося про вимірювання лордозу після впливу кіспептину з або без антагоніста KISS1R Kiss-234 у щурів з оваріектомією.[5]
У вихідному дослідженні порівнювали кіспептин і контрольну групи та оцінювали вплив попереднього лікування Kiss-234 на коефіцієнт лордозу та інтенсивність рефлексу лордозу. Розміри груп, досліджувані дози, часові точки та статистичні порівняння наведені в оригінальній публікації.[5]
Suvi T. Ruohonen та його колеги створили мишей із селективною до ооцитів делецією Gpr54/Kiss1r шляхом схрещування лінії Gdf9-Cre з лінією Gpr54 LoxP. Отримані OoGpr54-/- миші піддалися фенотиповому, гістологічному, гормональному та молекулярному аналізу протягом кількох постнатальних віків. Автори повідомили про нормальний початок статевого дозрівання, але прогресуючу овуляційну недостатність з віком, включаючи гістологічні зміни та змінені профілі експресії генів яєчників. Оскільки в цьому дослідженні використовувалося видалення рецептора, а не введення пептиду кіспептину, його висновки стосуються біологічної ролі сигналізації яєчників KISS1R і не є прямим дослідженням впливу KP-10.[6]
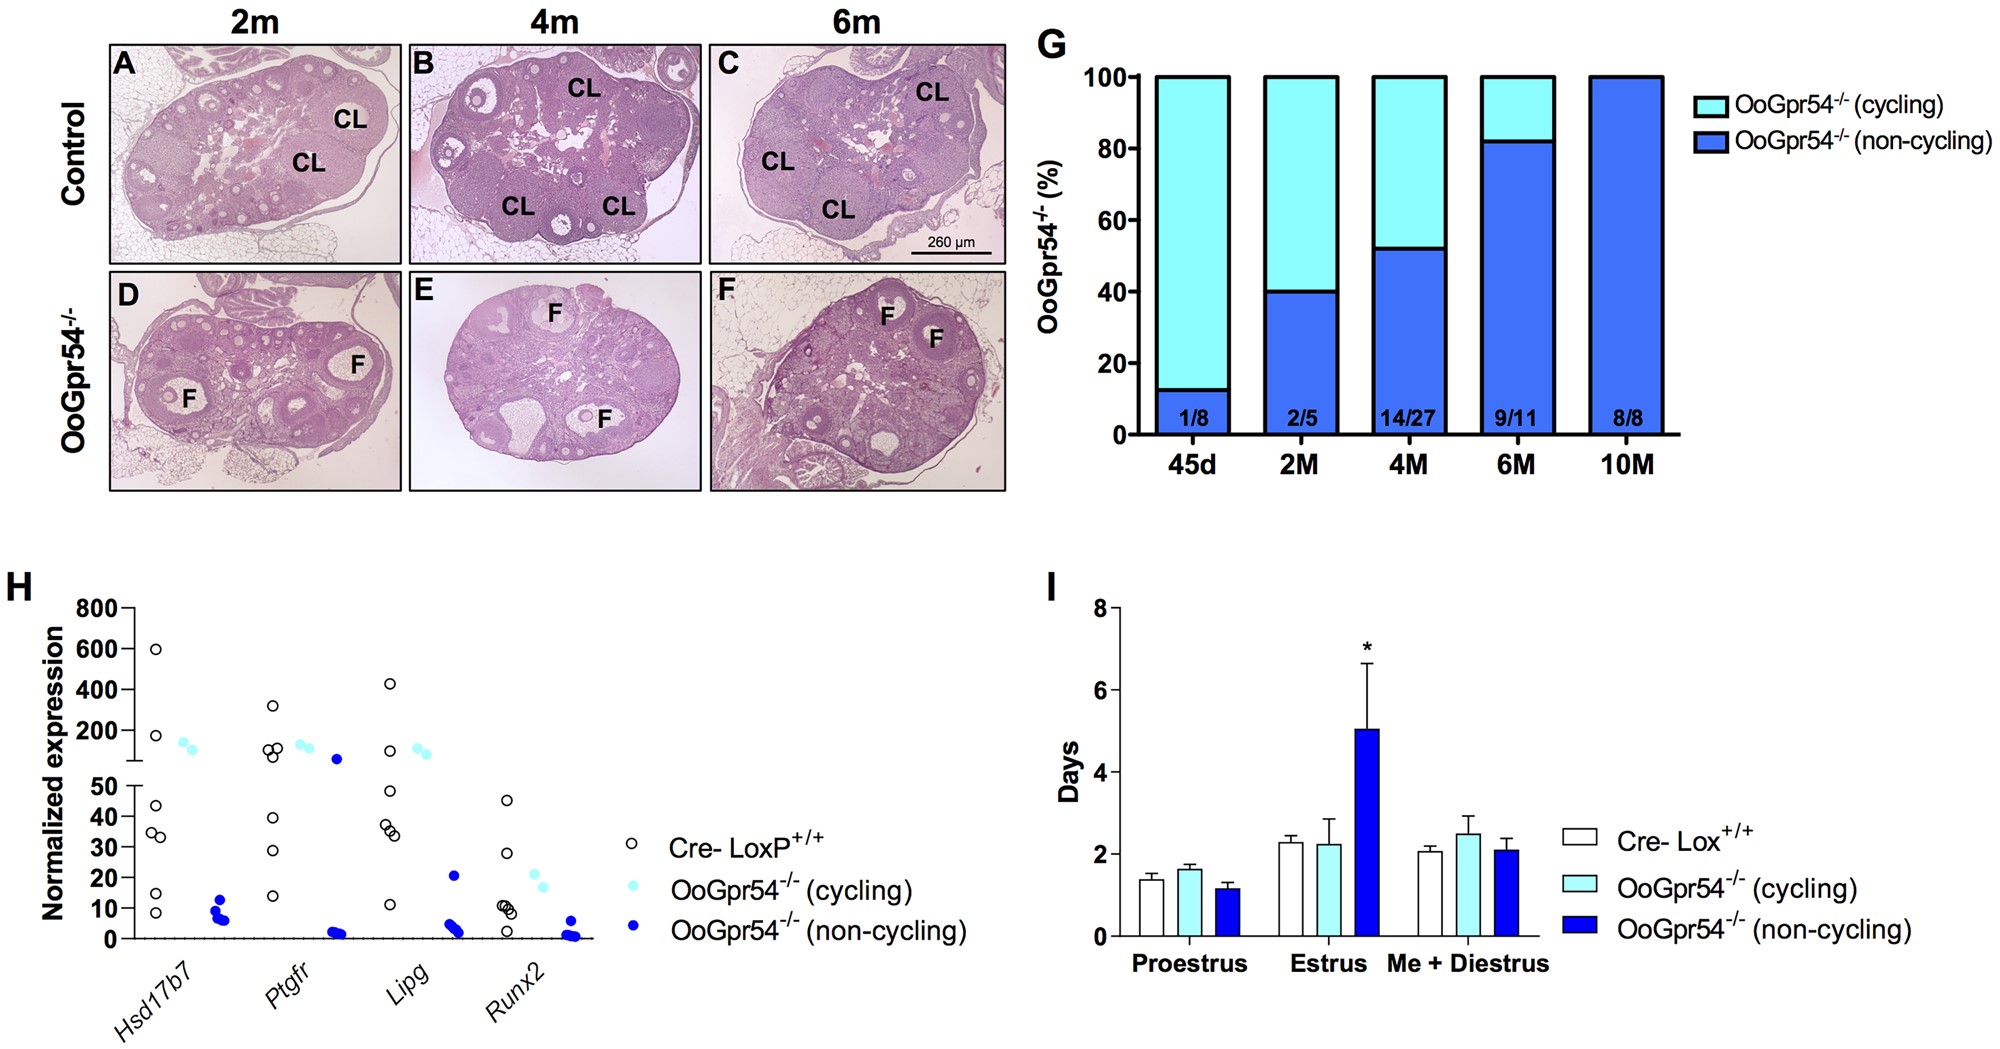
рис.4. Повідомлялося про прогресуючі овуляторні зміни у мишей із селективною до ооцитів делецією Gpr54/Kiss1r.[6]
Панелі (AF) демонструють репрезентативну гістологію яєчників від контрольних мишей і мишей OoGpr54−/− у вказаному віці. Панель (G) узагальнює частку OoGpr54−/− самок без жовтих тіл, панель (H) представляє вибрані результати секвенування РНК, а панель (I) показує вимірювання естрального циклу. Розміри груп і статистичні методи наведені в оригінальній публікації.[6]
Обмеження дослідження
Дослідження, наведені вище, не оцінюють однакову молекулярну форму кіспептину. Попередник KISS1 може бути перероблений у кілька біоактивних пептидів, включаючи KP54, KP14, KP13 і KP10, які мають той самий C-кінцевий декапептид, але відрізняються довжиною та фармакокінетичною поведінкою. У дослідженні Wu використовувалися KP54 і TAK448, тоді як інші цитовані роботи досліджували передачу сигналів ендогенного кіспептину, моделі нокауту рецепторів або препарати кіспептину, які не були розроблені як пряме порівняння комерційного дослідницького матеріалу KP-10 [2,3,4,6,7].
KISS1R — це білково-зв’язаний рецептор класу AG і найбільш відомий завдяки передачі сигналів Gq/11, хоча нещодавні структурні та функціональні дослідження також підтверджують зв’язок із Gi/o за конкретних експериментальних умов.[2] Відмінності в ізоформі пептиду, експресії рецептора, виді, тканинному контексті, шляху впливу та плані експерименту можуть впливати на спостережувану відповідь. Таким чином, результати моделей мишей і щурів повинні залишатися прив’язаними до точного пептиду, моделі рецептора та експериментальних умов, описаних у кожній публікації [2,7].
COCER Peptides представляє Kisspeptin-10 виключно для лабораторних досліджень і аналітичного використання. Він не призначений для використання людиною чи ветеринарією. Дослідження, описане вище, узагальнює результати, наведені в публікаціях третіх сторін, і не є заявою про клінічну ефективність, безпеку, діагностику, лікування, профілактику чи інструкцію із застосування.


