

|
1 kit (10 viales)
| Cantidad: | |
|---|---|
▎ Estructura SS-31
Fuente: PubChem |
Secuencia: RXKF Fórmula molecular: C 32H 49N 9O5 Peso molecular: 639,8 g/mol Número CAS: 736992-21-5 CID de PubChem: 11764719 Sinónimos: elamipretida |
▎ Investigación SS-31
Fondo molecular
Elamipretida (SS-31) es un tetrapéptido sintético con la secuencia D-Arg-2',6'-dimetilTyr-Lys-Phe-NH₂. PubChem incluye elamipretida con el número CID 11764719, con la fórmula molecular C32H49N9O5 y un peso molecular de aproximadamente 639,8 g/mol. Las investigaciones publicadas han examinado su interacción con la cardiolipina y otros componentes mitocondriales en condiciones experimentales definidas.[1,8]
Progreso de la investigación
Beatrice Vahle y sus colegas utilizaron ratas magras híbridas F1 con insuficiencia cardíaca espontáneamente hipertensas y grasas Zucker (n = 10, grupo de control) y ratas obesas (n = 24, grupo HFpEF). A las 20 semanas de edad, las ratas HFpEF fueron asignadas al azar para recibir cloruro de sodio (n = 12) o elamipretida (n = 12) durante 12 semanas. Luego se evaluó el tejido del músculo esquelético mediante pruebas de fuerza muscular completa, mecánica de fibra única, respiración mitocondrial, histología y análisis moleculares. Los autores informaron niveles reducidos de cardiolipina y expresión de tafazzin en ratas HFpEF, junto con disfunción contráctil, hiperfosforilación de titina, atrofia de fibras y aumento de los marcadores de estrés oxidativo. En el grupo de elamipretida, los investigadores informaron diferencias en las mediciones contráctiles de todo el músculo y de una sola fibra, la fosforilación de titina y el tamaño de las fibras. Propusieron que los cambios en la fosforilación oxidativa asociados a la cardiolipina pueden contribuir a los hallazgos mitocondriales y contráctiles observados en este modelo de rata.[2]
Silvia Russo y sus colegas estudiaron SS-31 en un modelo de ratón con tafazzin-knockdown (TazKD) caracterizado por una remodelación anormal de cardiolipina y alteraciones mitocondriales. Se evaluaron las mitocondrias cardíacas para determinar la ultraestructura de la membrana, la dinámica mitocondrial, las proteínas relacionadas con la mitofagia, la actividad respiratoria y la organización supercompleja de la cadena respiratoria. Los autores informaron cambios en la morfología mitocondrial, proteínas seleccionadas involucradas en la dinámica mitocondrial y la autofagia, mediciones respiratorias y ensamblaje supercomplejo en ratones TazKD tratados con SS-31 en comparación con animales TazKD no tratados.[3]
Gavin Pharaoh y sus colegas trataron ratones machos de edad avanzada con elamipretida (ELAM) mediante una minibomba osmótica durante aproximadamente 8 semanas y compararon las mediciones mitocondriales y fisiológicas con las de ratones jóvenes y de edad avanzada no tratados. Los investigadores evaluaron la fuerza muscular, la función cardíaca, las respuestas mitocondriales al ADP y las proteínas implicadas en el transporte y la síntesis de ADP/ATP. Informaron de una mayor sensibilidad al ADP en las mitocondrias musculares envejecidas después de la exposición a ELAM, junto con cambios en la fuerza muscular y la función sistólica cardíaca. La abundancia de proteínas en la vía de transporte de ADP/ATP no cambió sustancialmente, mientras que se informó una reducción de la S-glutationilación de varias proteínas, incluida la translocasa de nucleótidos de adenina (ANT). Los autores también examinaron las interacciones directas de ELAM con ANT y ATP sintasa como parte del marco mecanicista propuesto.[4]
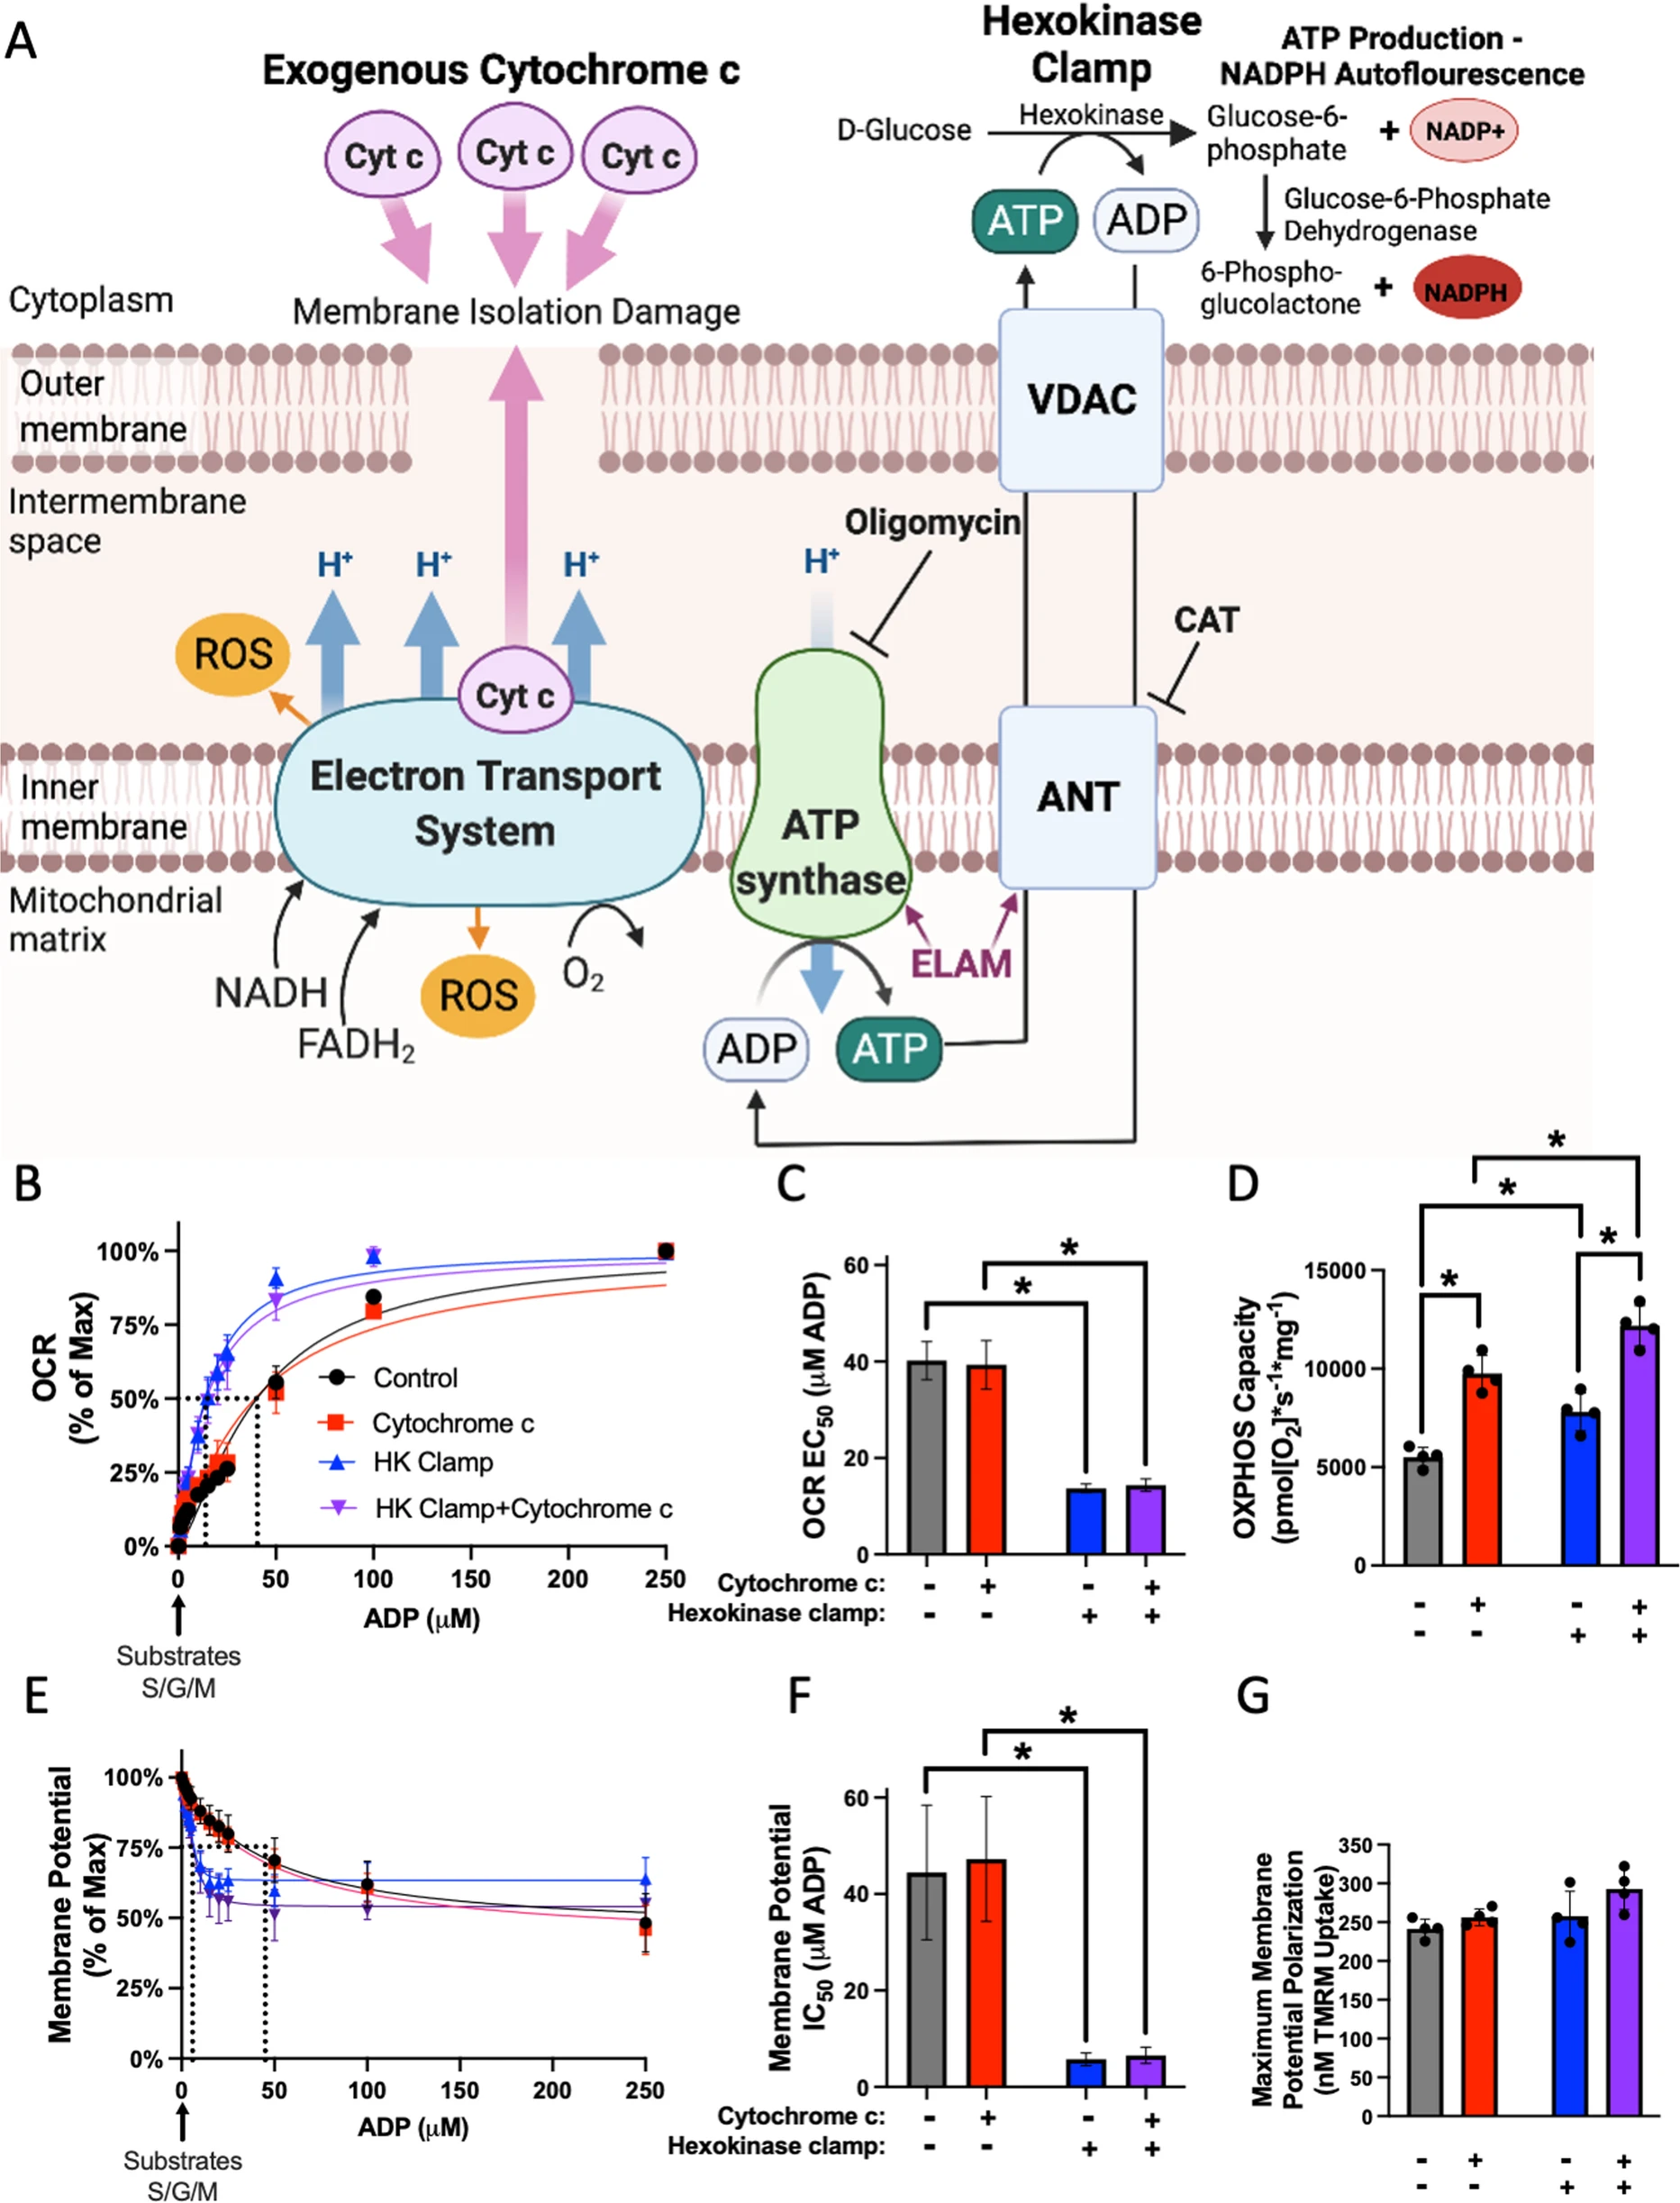
Fig1. Mediciones de la respiración estimulada por ADP y del potencial de membrana en mitocondrias musculares aisladas en el estudio citado.[4]
La figura fuente ilustra la vía de transporte de ADP/ATP y las condiciones experimentales de sujeción de hexoquinasa y citocromo-c utilizadas para medir el consumo de oxígeno y las respuestas de potencial de membrana en mitocondrias musculares aisladas. ANT, VDAC, ATP sintasa y componentes de la vía relacionados se muestran tal como los presentaron los autores del estudio. Los tamaños de los grupos, las concentraciones, los métodos estadísticos y los procedimientos completos se proporcionan en la publicación original.[4]
Yue-Ming Zhang y sus colegas sometieron a ratones adultos C57BL/6J a 21 días de privación crónica del sueño utilizando un protocolo de rueda giratoria mientras les administraban SS-31 o solución salina según el diseño del estudio. El comportamiento dependiente del hipocampo se evaluó mediante el reconocimiento de objetos novedosos y la prueba del laberinto acuático de Morris, y los análisis moleculares incluyeron marcadores mitocondriales, inflamatorios y sinápticos. Los autores informaron diferencias en las mediciones de comportamiento y en SIRT1, PGC-1α, NF-κB, citocinas inflamatorias, factor neurotrófico derivado del cerebro, proteína de densidad postsináptica-95 y sinaptofisina en el grupo de estudio SS-31 en comparación con los controles privados de sueño. Estos hallazgos se obtuvieron en un modelo de ratón con privación crónica del sueño.[5]
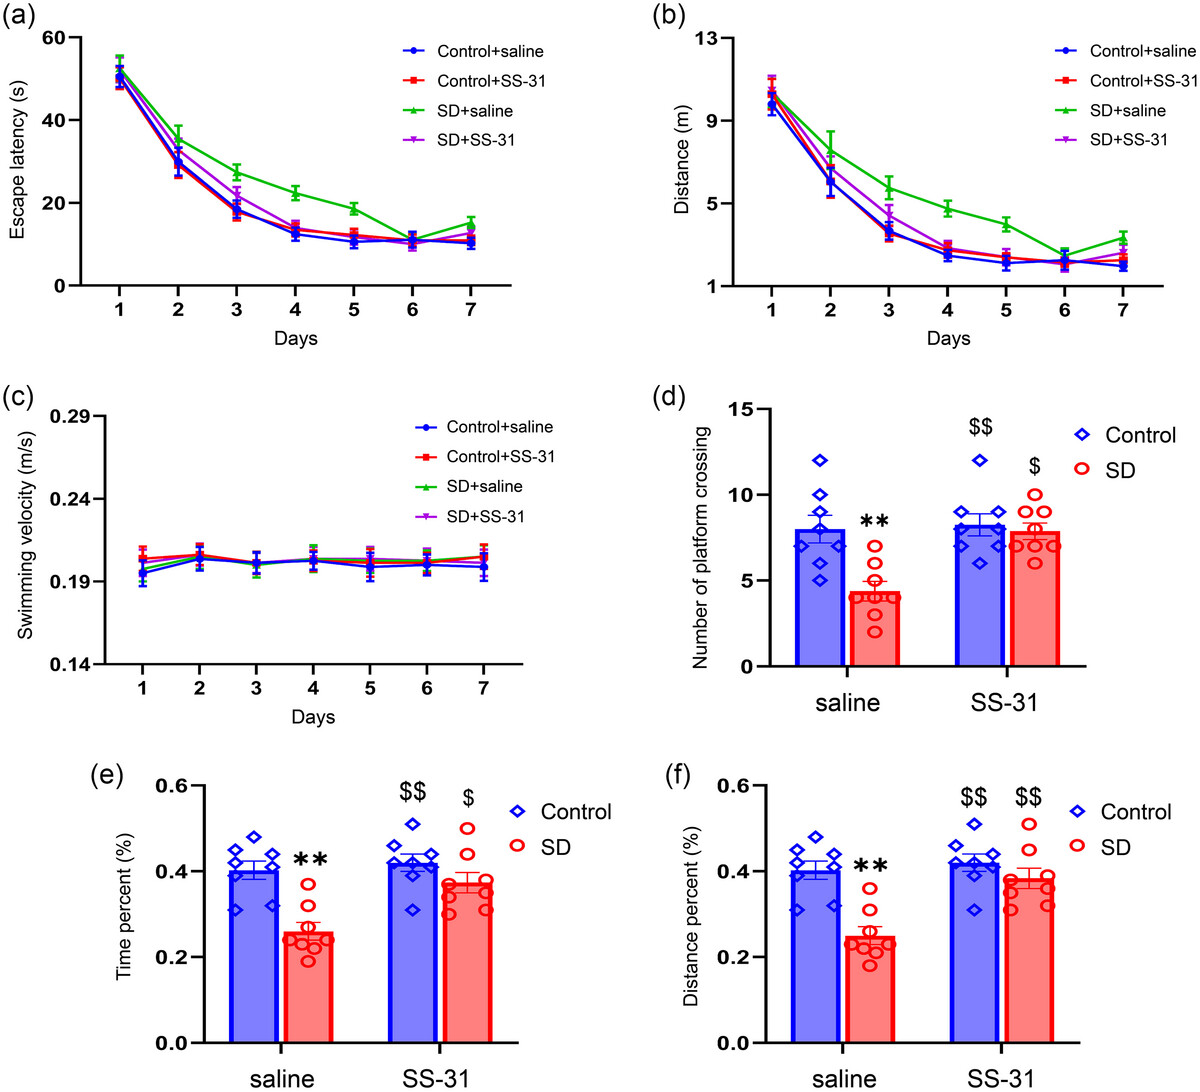
Fig2. Las mediciones del laberinto acuático de Morris informadas después de la exposición al SS-31 en el modelo de ratón con privación crónica del sueño.[5]
La figura fuente compara la latencia de escape de la fase de aprendizaje, la velocidad de natación, los cruces de plataformas y las mediciones basadas en el tiempo y la distancia durante la fase de memoria entre los grupos experimentales. Las comparaciones estadísticas y las condiciones completas del estudio se informan en la publicación original.[5]
Mengying Suo y sus colegas establecieron un modelo de sobrecarga de presión en ratones utilizando constricción aórtica transversal (TAC) y evaluaron SS31 en fibroblastos y animales de tipo salvaje y con desactivación de Sirt3. Los autores informaron diferencias en las mediciones de la función cardíaca y de la fibrosis miocárdica en ratones de tipo salvaje expuestos a SS31, junto con cambios en la proteína de atrofia óptica 1 (OPA1) y otras proteínas involucradas en la dinámica mitocondrial. En ratones y fibroblastos con desactivación de Sirt3, varias respuestas asociadas a SS31 observadas en el modelo de tipo salvaje no se reprodujeron. Por lo tanto, el estudio vinculó los hallazgos experimentales informados con la fusión mitocondrial asociada a Sirt3 en las condiciones probadas.[7]
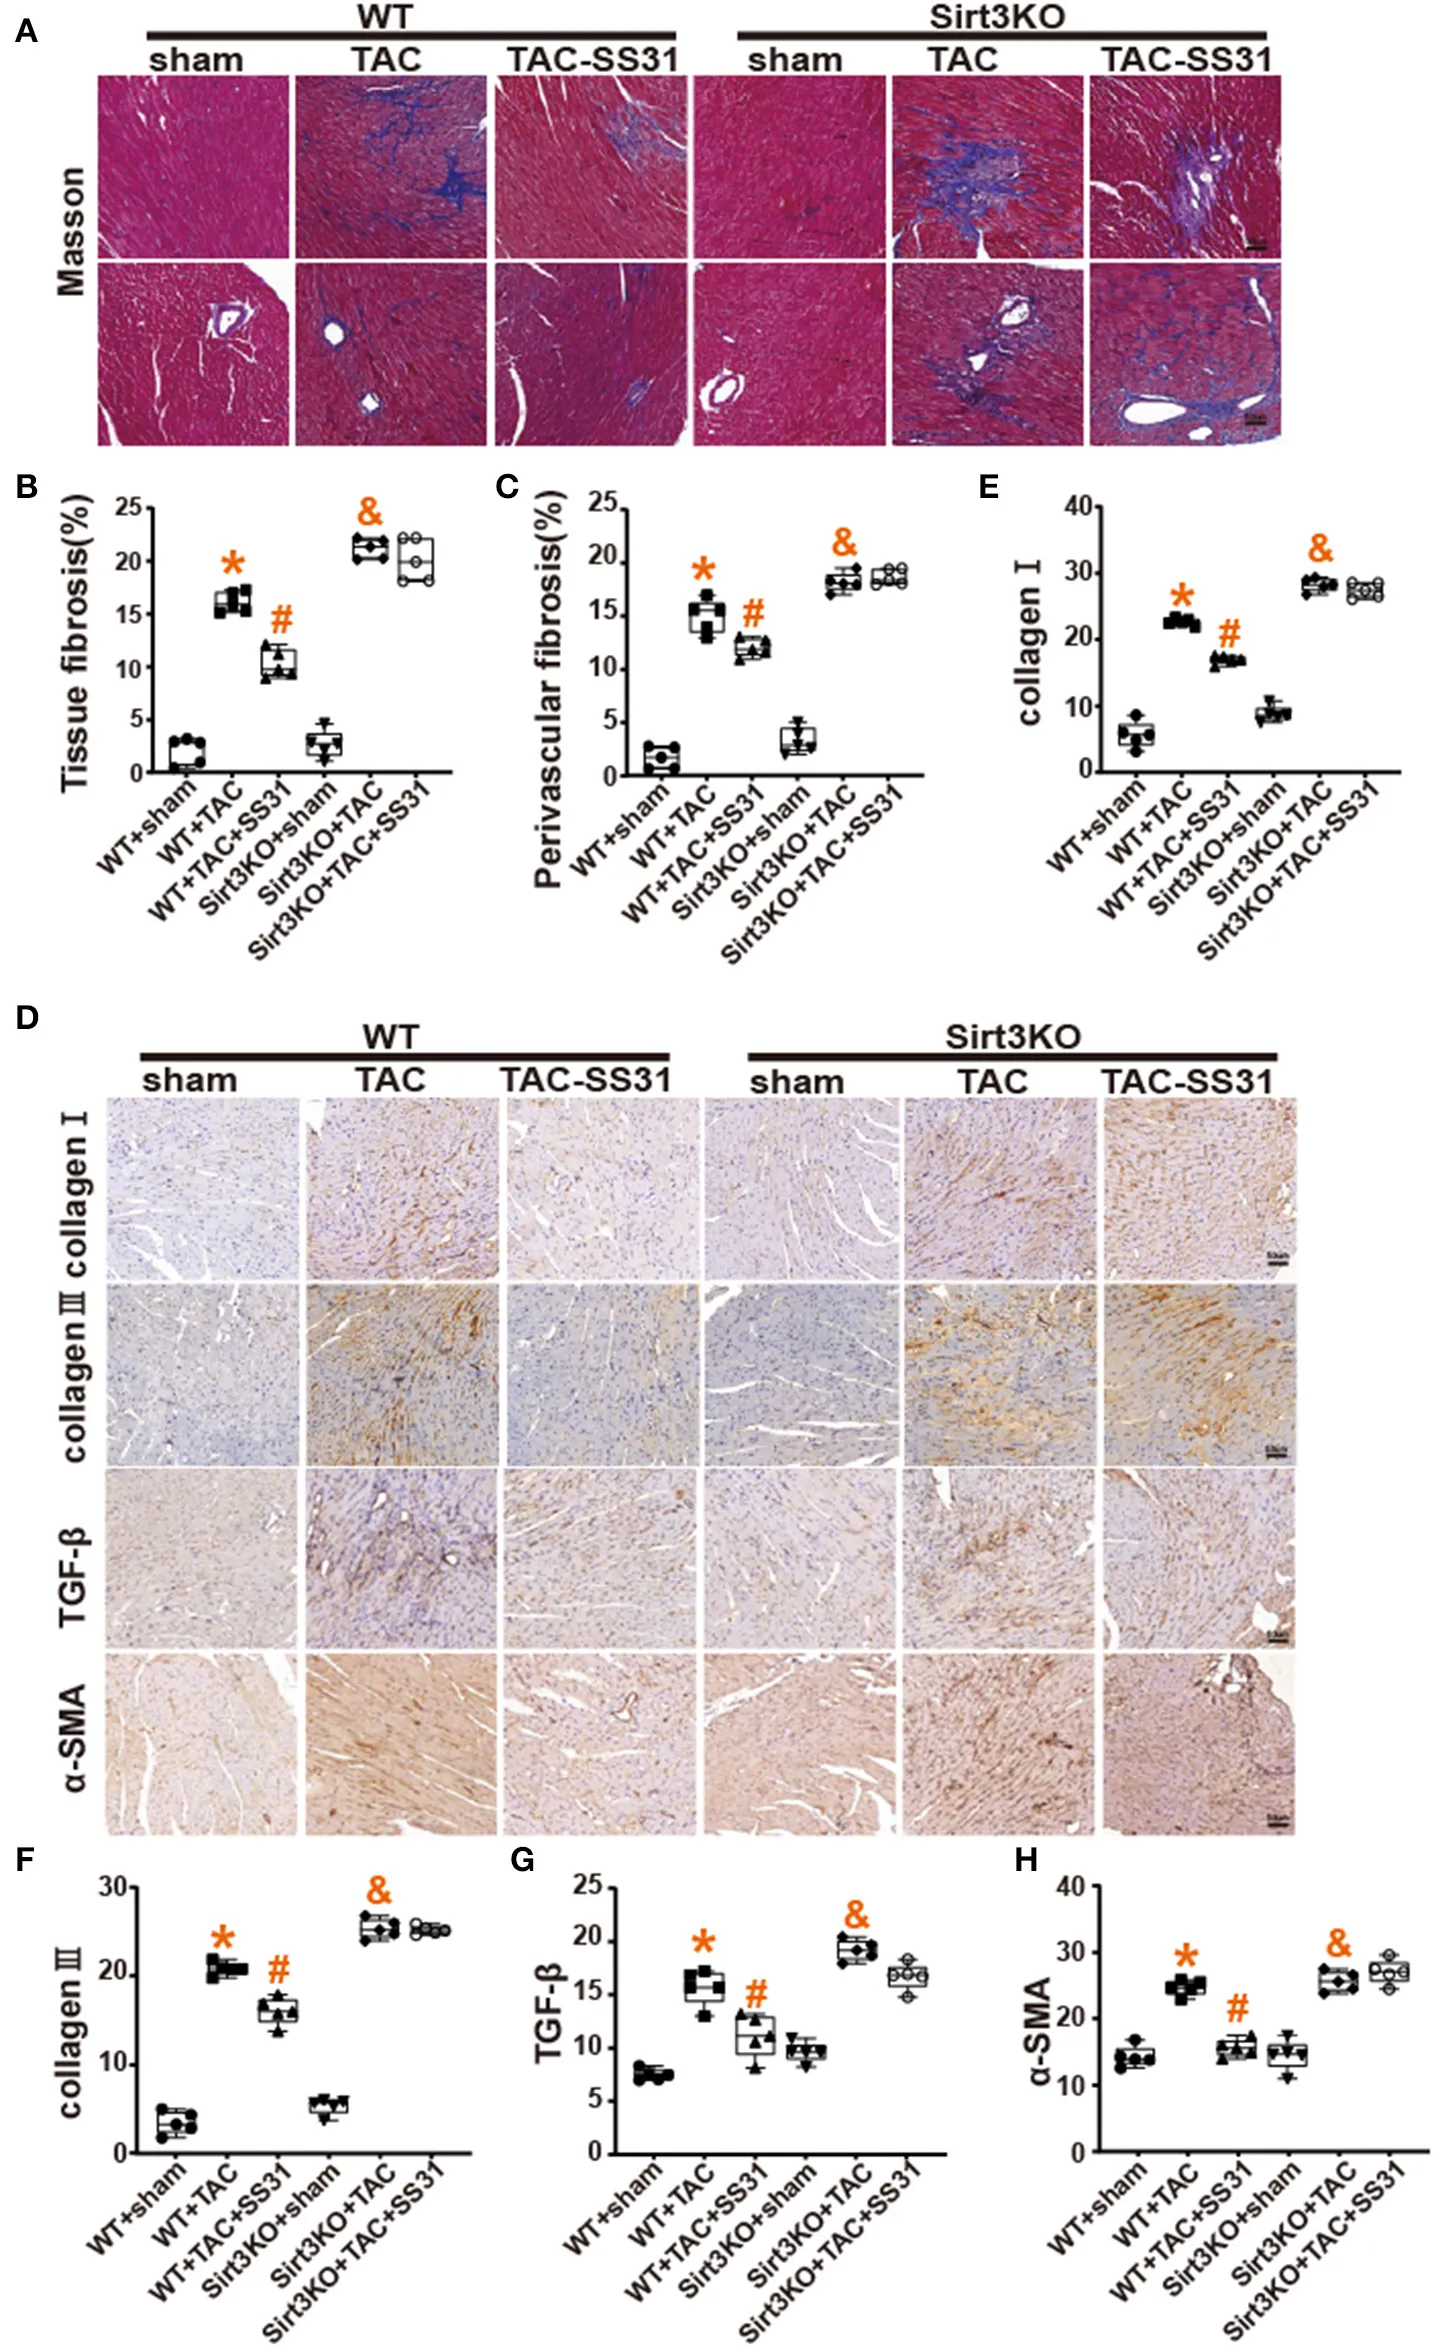
Fig3. Mediciones de fibrosis miocárdica informadas en ratones de tipo salvaje y con desactivación de Sirt3 en el estudio de sobrecarga de presión SS31.[7]
Imágenes de tinción de Masson de cada grupo; (B) Análisis estadístico de tinción de Masson del grado de fibrosis entre tejidos; (C) Análisis estadístico de tinción de Masson del grado de fibrosis perivascular (n = 5, *p < 0,05, WT + TAC frente a WT + simulado; #p < 0,05, WT + TAC + SS31 frente a WT + TAC; &p < 0,05, Sirt3KO + TAC frente a Sirt3KO + simulado); (D) Imágenes de tinción inmunohistoquímica de colágeno I, colágeno III, TGF-β y α-SMA en cada grupo (barra = 20 μm); (E – H) Análisis estadístico de tinción inmunohistoquímica de colágeno I y colágeno III. (Los resultados se expresan como medias ± SEM, n = 5. Se utilizó la prueba ANOVA unidireccional y n representa el número de experimentos independientes. *p < 0,05 frente a WT + grupo simulado; #p < 0,05 frente a WT + grupo TAC; &p < 0,05 frente a Sirt3KO + grupo simulado).
Limitaciones de la investigación
Los estudios resumidos anteriormente utilizan diferentes sistemas preclínicos, incluidas ratas HFpEF, ratones con deficiencia de tafazzin, ratones de edad avanzada, ratones con privación crónica del sueño y modelos cardíacos con sobrecarga de presión. Los resultados de estos modelos no son directamente intercambiables y las diferencias en las especies, el modelo de enfermedad, el programa de exposición, la formulación, el contexto del tejido y los criterios de valoración medidos pueden influir en las observaciones informadas. Un estudio de 2026 que examinó el SS31 modificado con PEG describió la rápida eliminación renal y la exposición farmacocinética limitada del SS31 no modificado como desafíos para la formulación, lo que ilustra que la distribución y la exposición también pueden afectar la interpretación de los resultados preclínicos.[6]
La elamipretida también es el ingrediente activo del medicamento recetado Forzinity, aprobado por la FDA, que recibió aprobación acelerada en 2025 para una indicación y un medicamento específicos para el síndrome de Barth. Esa aprobación se aplica a la formulación aprobada de Forzinity y al uso etiquetado y no establece equivalencia, seguridad, eficacia o estado de aprobación para los materiales de investigación SS-31 suministrados de forma independiente.[1,9]
COCER Peptides presenta SS-31 únicamente para investigación de laboratorio y uso analítico. No está destinado para uso humano o veterinario. La investigación descrita anteriormente resume los hallazgos informados en publicaciones de terceros y no representa una afirmación con respecto al rendimiento clínico, la seguridad, la eficacia, el diagnóstico, el tratamiento o el uso aprobado de ningún material de COCER Peptides.


