

|
1 sett (10 hetteglass)
| Mengde: | |
|---|---|
▎ SS-31 struktur
Kilde: PubChem |
Sekvens: RXKF Molekylformel: C 32H 49N 9O5 Molekylvekt: 639,8 g/mol CAS-nummer: 736992-21-5 PubChem CID: 11764719 Synonymer: Elamipretide |
▎ SS-31 Forskning
Molekylær bakgrunn
Elamipretide (SS-31) er et syntetisk tetrapeptid med sekvensen D-Arg-2',6'-dimetylTyr-Lys-Phe-NH2. PubChem lister elamipretid under CID 11764719, med molekylformelen C32H49N9O5 og en molekylvekt på omtrent 639,8 g/mol. Publisert forskning har undersøkt dets interaksjon med kardiolipin og andre mitokondrielle komponenter under definerte eksperimentelle forhold.[1,8]
~!phoenix_var81!~
Beatrice Vahle og kolleger brukte Zucker-fete spontant hypertensiv hjertesvikt F1 hybrid magre rotter (n = 10, kontrollgruppe) og overvektige rotter (n = 24, HFpEF-gruppe). Ved 20 ukers alder ble HFpEF-rottene randomisert til å motta enten natriumklorid (n = 12) eller elamipretid (n = 12) i 12 uker. Skjelettmuskelvev ble deretter evaluert ved hjelp av helmuskelkrafttesting, enkeltfibermekanikk, mitokondriell respirasjon, histologi og molekylære analyser. Forfatterne rapporterte reduserte kardiolipinnivåer og tafazzinekspresjon i HFpEF-rotter, sammen med kontraktil dysfunksjon, titinhyperfosforylering, fiberatrofi og økte markører for oksidativt stress. I elamipretid-gruppen rapporterte etterforskerne forskjeller i helmuskel- og enkeltfiberkontraktile målinger, titin-fosforylering og fiberstørrelse. De foreslo at kardiolipin-assosierte endringer i oksidativ fosforylering kan bidra til mitokondrie- og kontraktile funn observert i denne rottemodellen.[2]
Silvia Russo og kolleger studerte SS-31 i en tafazzin-knockdown (TazKD) musemodell preget av unormal kardiolipin-remodellering og mitokondrielle endringer. Hjertemitokondrier ble evaluert for membran-ultrastruktur, mitokondriell dynamikk, mitofagi-relaterte proteiner, respiratorisk aktivitet og respiratorisk kjede superkompleks organisering. Forfatterne rapporterte endringer i mitokondriell morfologi, utvalgte proteiner involvert i mitokondriell dynamikk og autofagi, respiratoriske målinger og superkompleks montering i SS-31-behandlede TazKD-mus sammenlignet med ubehandlede TazKD-dyr. [3]
Gavin Pharaoh og kolleger behandlet eldre hannmus med elamipretid (ELAM) med osmotisk minipumpe i omtrent 8 uker og sammenlignet mitokondrielle og fysiologiske målinger med de fra ubehandlede gamle og unge mus. Forskerne vurderte muskelstyrke, hjertefunksjon, mitokondrielle responser på ADP og proteiner involvert i ADP/ATP-transport og syntese. De rapporterte økt ADP-sensitivitet i gamle muskelmitokondrier etter ELAM-eksponering, sammen med endringer i muskelkraft og kardial systolisk funksjon. Proteinoverflod i ADP/ATP-transportveien ble ikke vesentlig endret, mens redusert S-glutationylering av flere proteiner, inkludert adenin-nukleotidtranslokase (ANT), ble rapportert. Forfatterne undersøkte også direkte interaksjoner av ELAM med ANT- og ATP-syntase som en del av det foreslåtte mekanistiske rammeverket.[4]
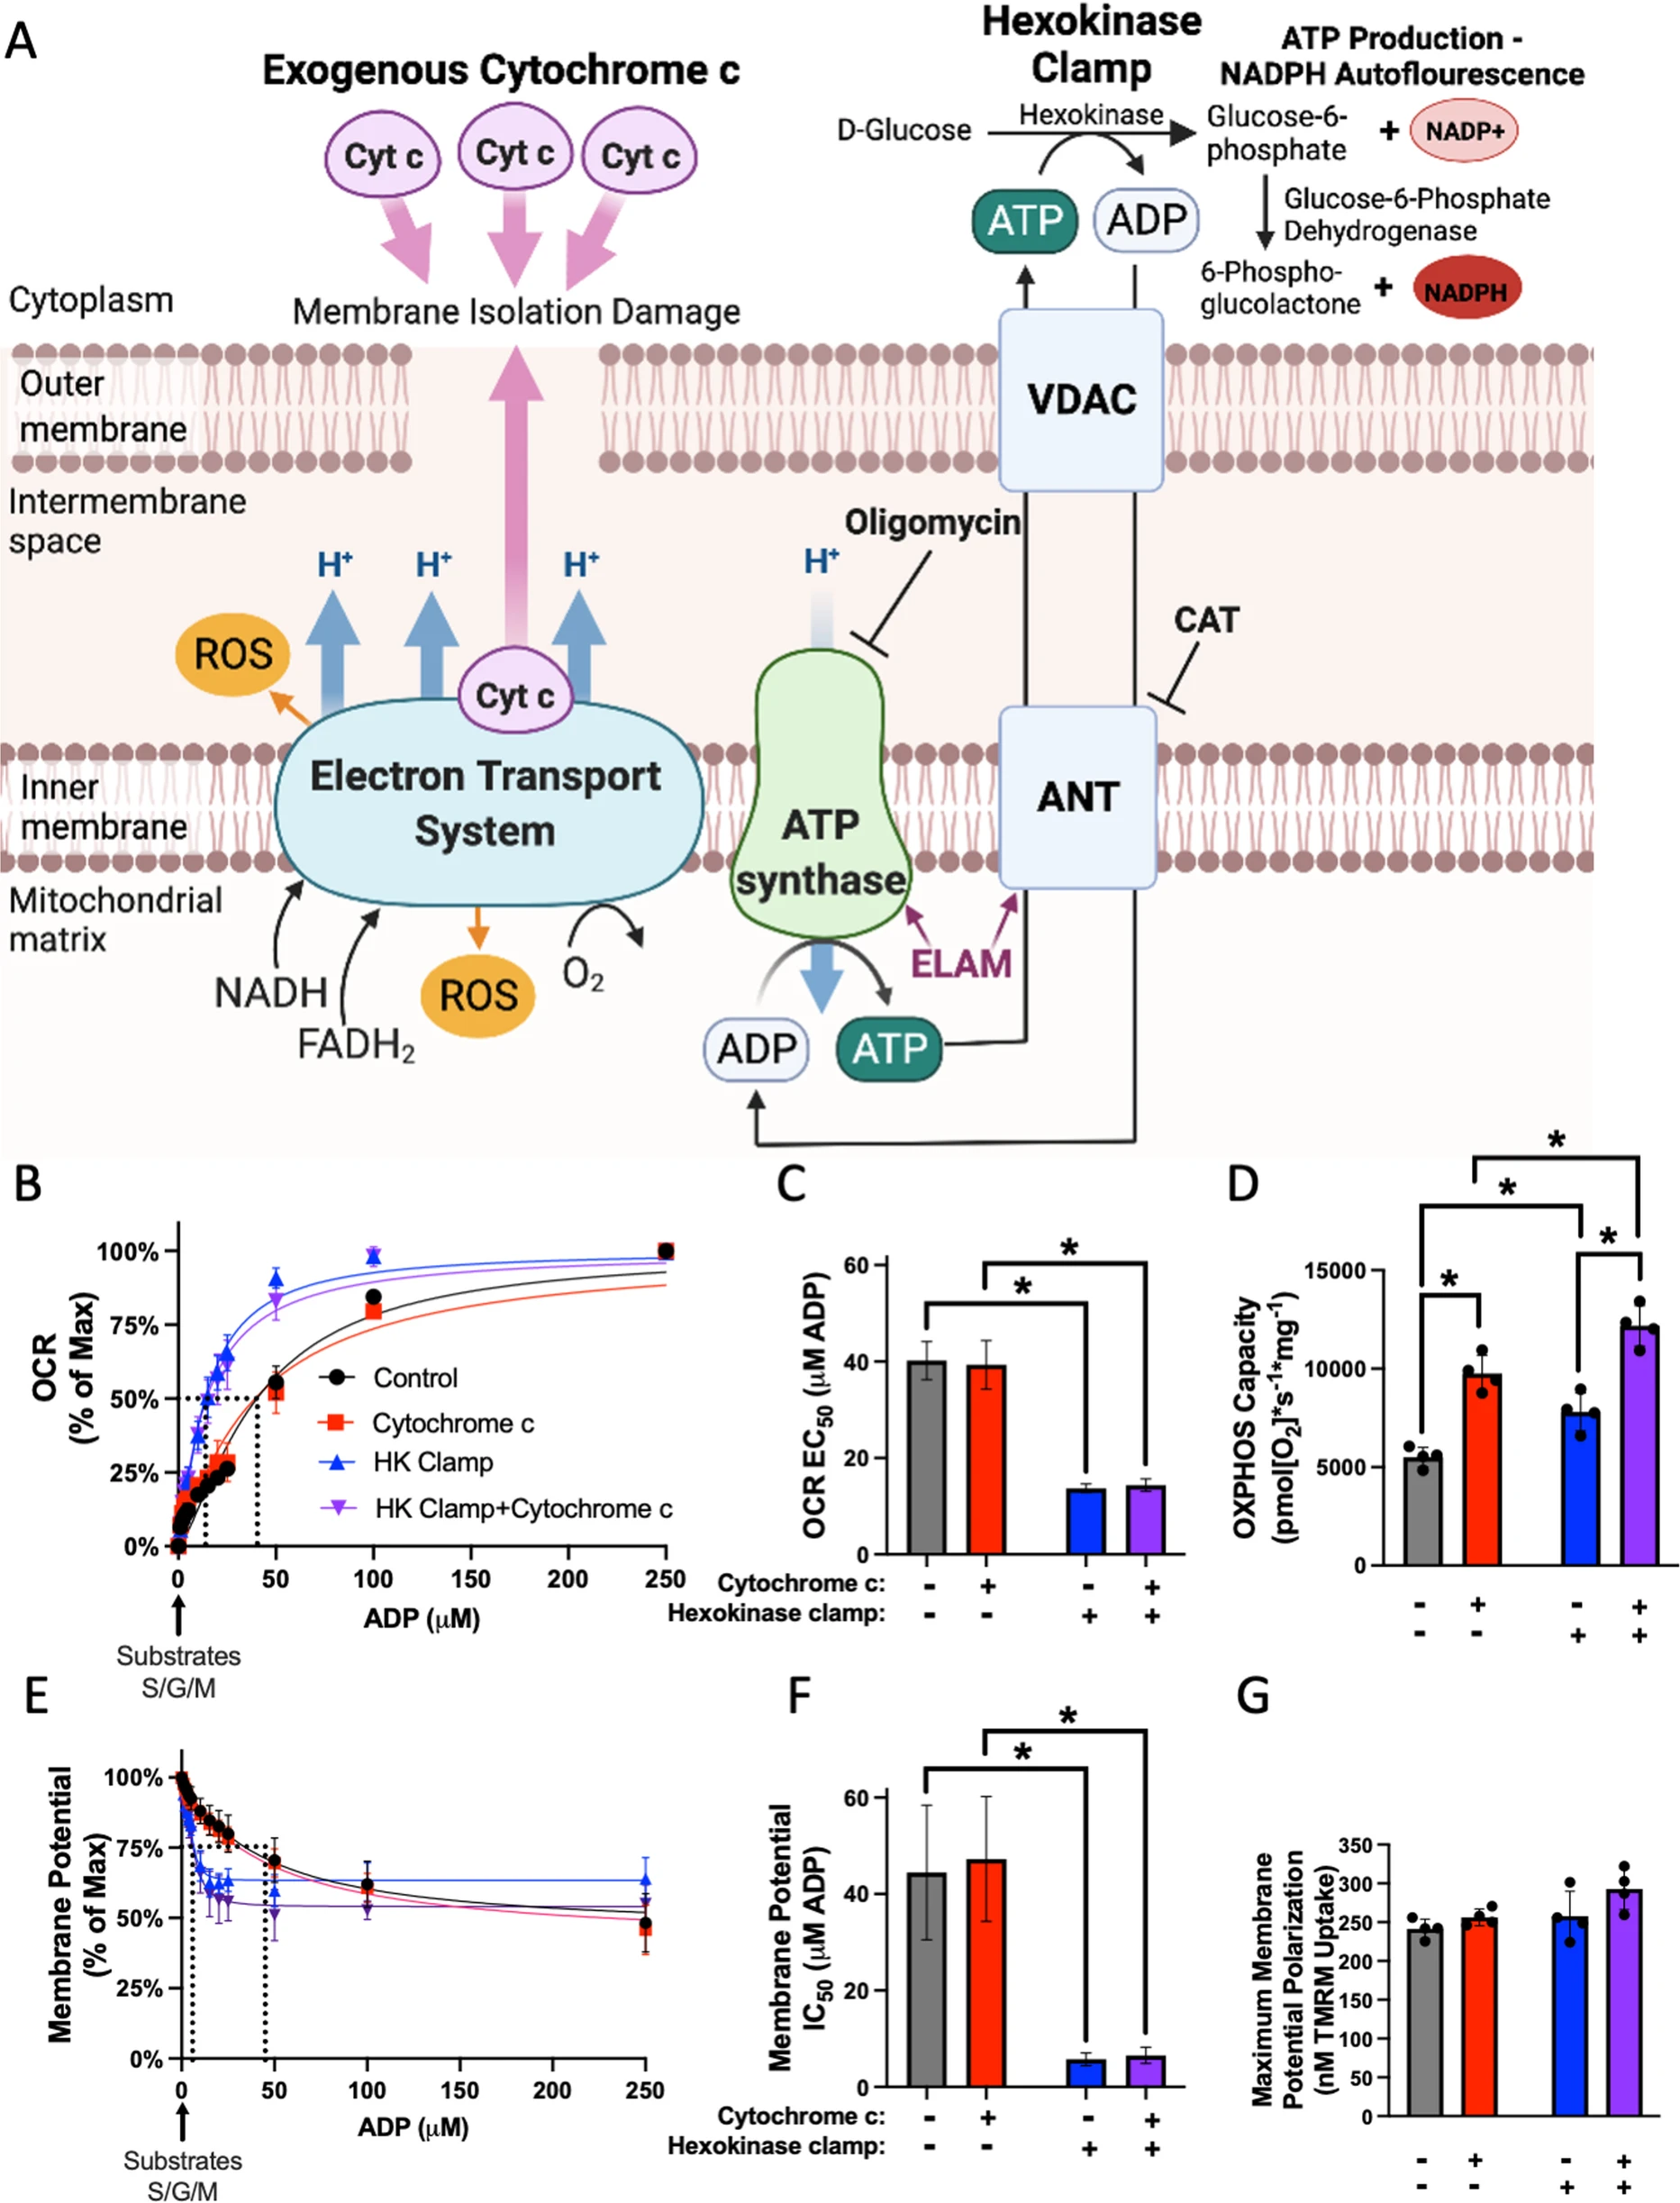
Fig1. ADP-stimulert respirasjon og membranpotensialmålinger i isolerte muskelmitokondrier i den siterte studien.[4]
Kildefiguren illustrerer ADP/ATP-transportveien og de eksperimentelle heksokinase-klemme- og cytokrom-c-forholdene som brukes til å måle oksygenforbruk og membranpotensielle responser i isolerte muskelmitokondrier. ANT, VDAC, ATP-syntase og relaterte banekomponenter er vist som presentert av studieforfatterne. Gruppestørrelser, konsentrasjoner, statistiske metoder og fullstendige prosedyrer er gitt i den originale publikasjonen.[4]
Yue-Ming Zhang og kolleger utsatte voksne C57BL/6J-mus for 21 dager med kronisk søvnmangel ved å bruke en protokoll med roterende hjul mens de administrerte SS-31 eller saltvann under studiedesignet. Hippocampus-avhengig atferd ble evaluert ved å bruke nye objekt-gjenkjenning og Morris vann-labyrint-testing, og molekylære analyser inkluderte mitokondrielle, inflammatoriske og synaptiske markører. Forfatterne rapporterte forskjeller i atferdsmålinger og i SIRT1, PGC-1α, NF-κB, inflammatoriske cytokiner, hjerneavledet nevrotrofisk faktor, postsynaptisk tetthetsprotein-95 og synaptophysin i SS-31-studiegruppen sammenlignet med søvnberøvede kontroller. Disse funnene ble oppnådd i en musemodell for kronisk søvnmangel.[5]
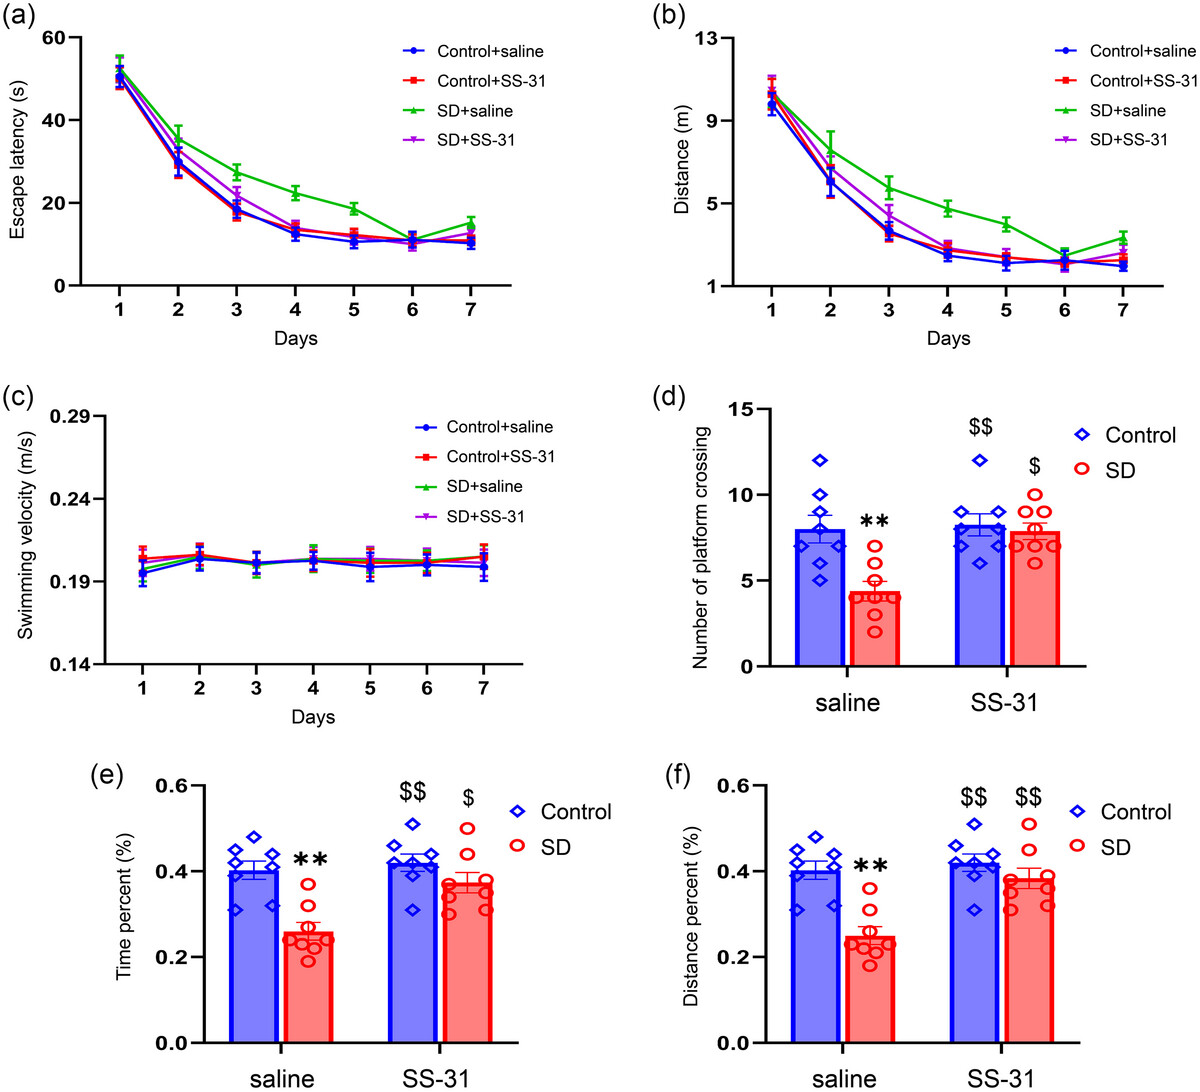
Fig2. Morris vannlabyrint-målinger rapportert etter SS-31-eksponering i musemodellen for kronisk søvnmangel.[5]
Kildefiguren sammenligner escape-latens i læringsfasen, svømmehastighet, plattformkryssinger og tids- og avstandsbaserte målinger under hukommelsesfasen blant eksperimentelle grupper. Statistiske sammenligninger og fullstendige studieforhold er rapportert i den originale publikasjonen.[5]
Mengying Suo og kolleger etablerte en trykkoverbelastningsmodell i mus ved bruk av transversal aortakonstriksjon (TAC) og evaluerte SS31 i villtype- og Sirt3-knockout-dyr og fibroblaster. Forfatterne rapporterte forskjeller i målinger av hjertefunksjon og myokardfibrose hos villtype mus eksponert for SS31, sammen med endringer i optisk atrofi protein 1 (OPA1) og andre proteiner involvert i mitokondriell dynamikk. Hos Sirt3-knockout-mus og fibroblaster ble flere SS31-assosierte responser observert i villtypemodellen ikke reprodusert. Studien koblet derfor de rapporterte eksperimentelle funnene til Sirt3-assosiert mitokondriell fusjon under de testede betingelsene.[7]
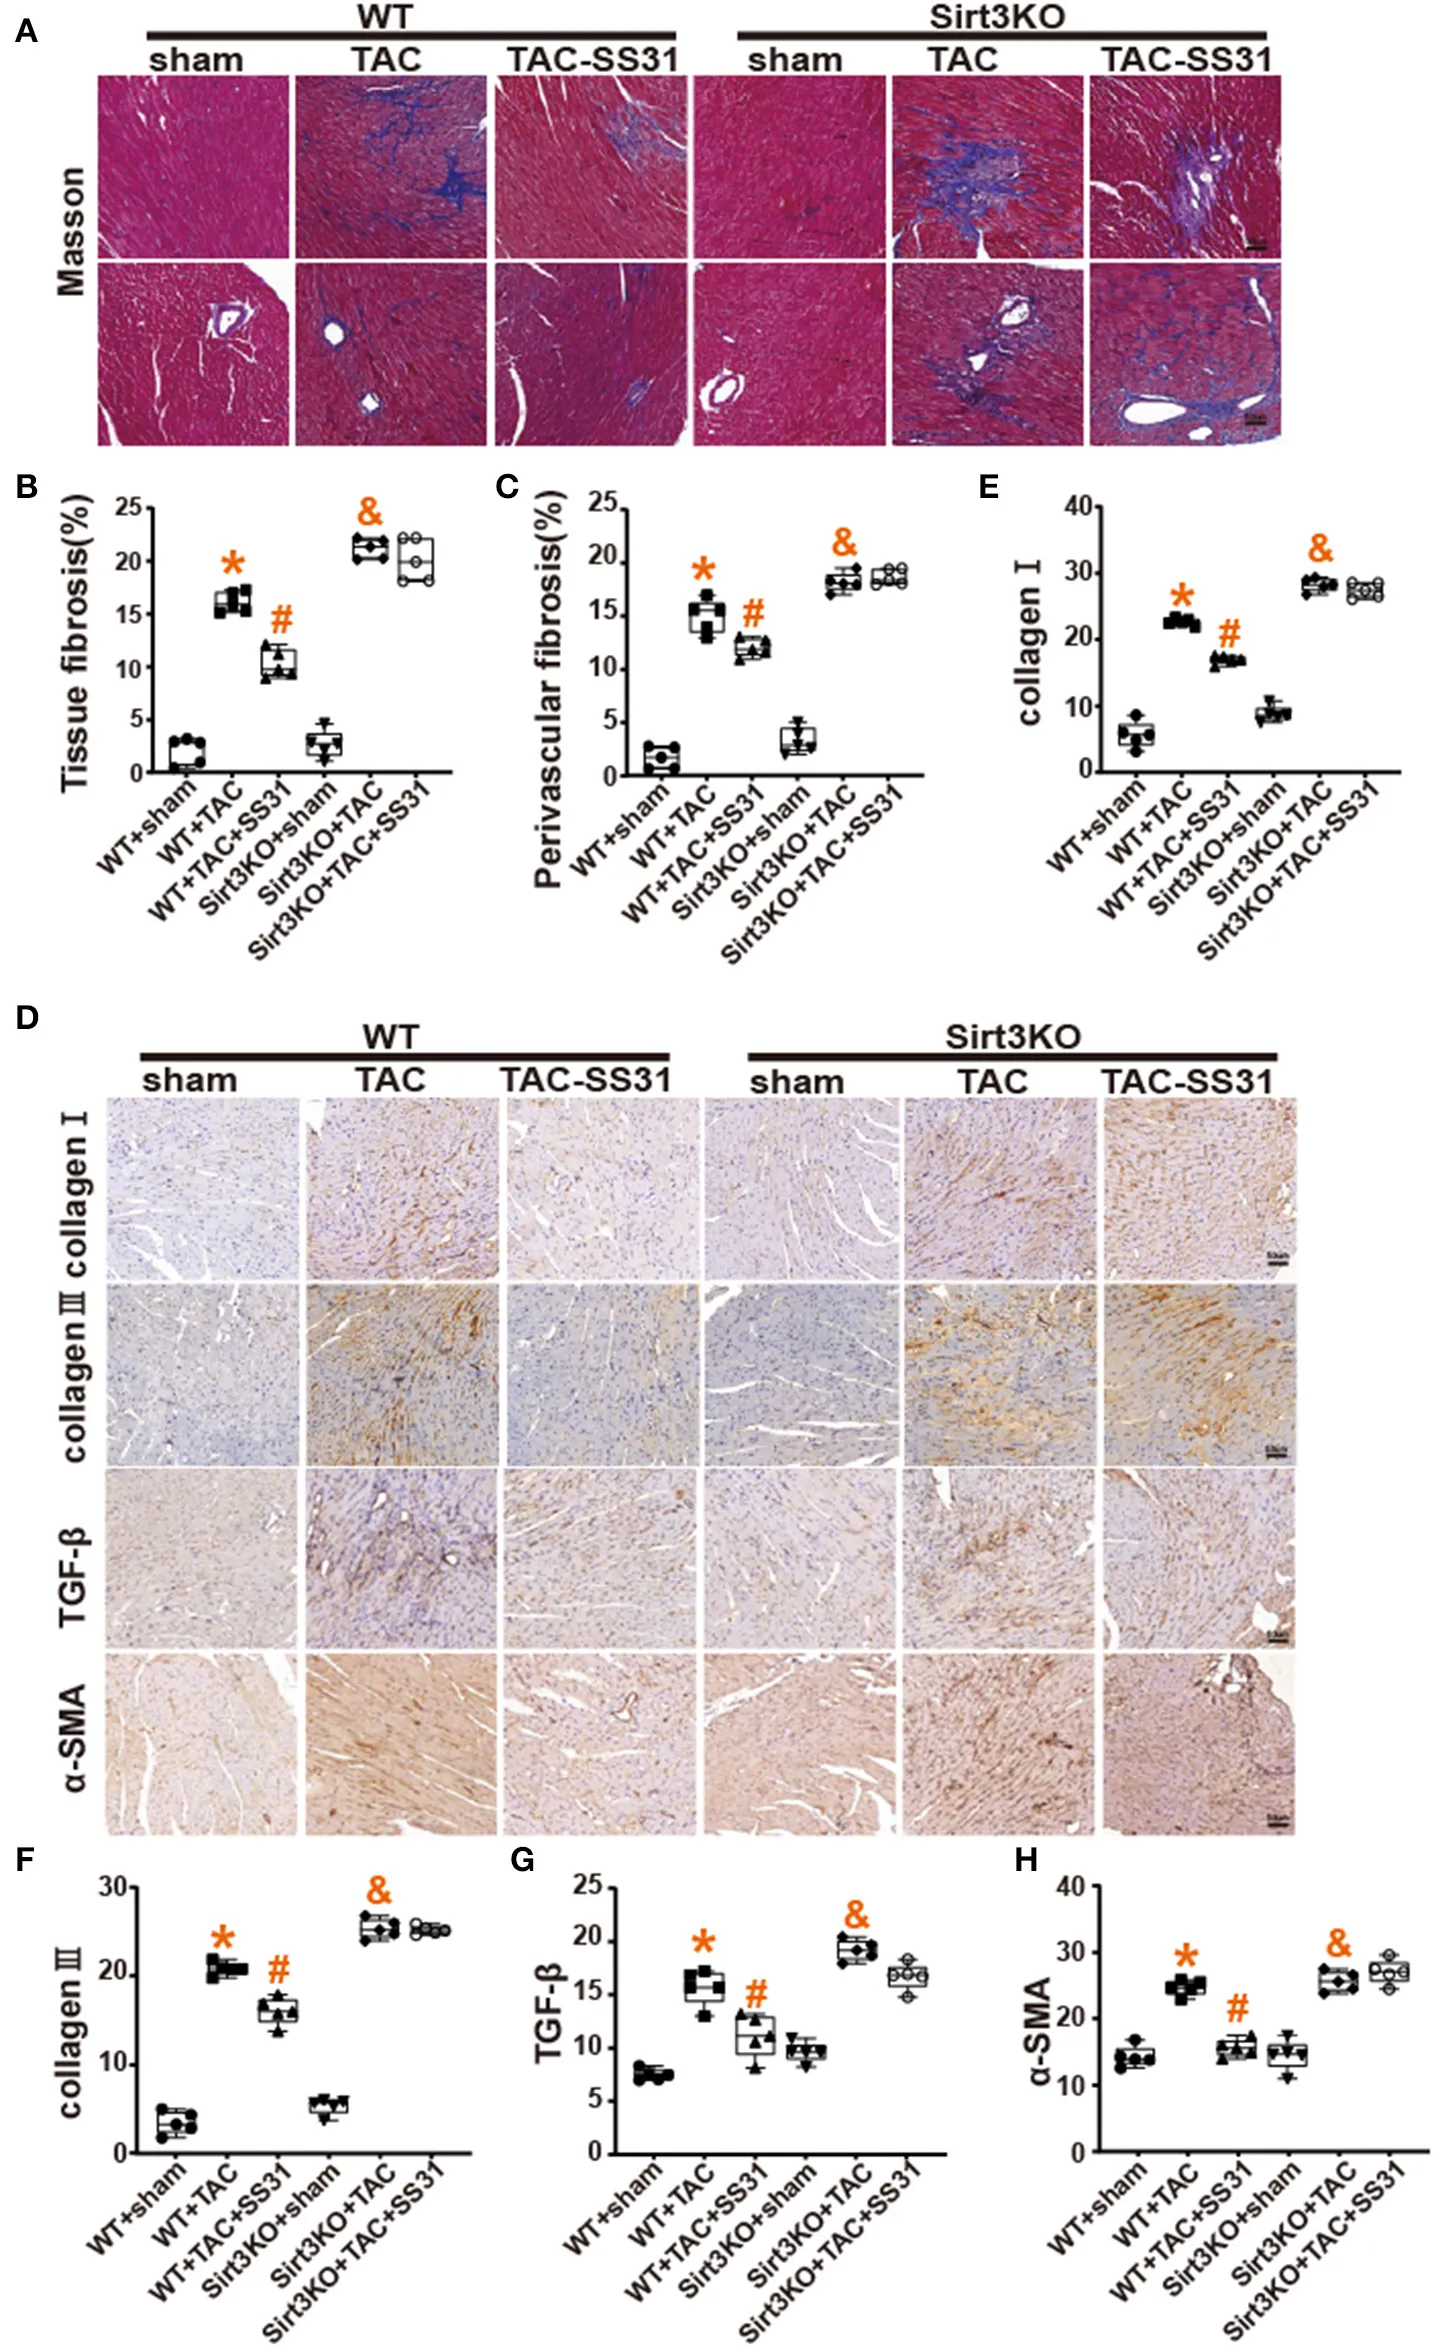
Fig3. Myokard-fibrose-målinger rapportert i villtype- og Sirt3-knockout-mus i SS31-trykkoverbelastningsstudien.[7]
Masson-fargingsbilder av hver gruppe; (B) Masson-farging statistisk analyse av graden av fibrose mellom vev; (C) Masson-farging statistisk analyse av graden av perivaskulær fibrose (n = 5, *p < 0,05, WT + TAC vs. WT + sham; #p < 0,05, WT + TAC + SS31 vs. WT + TAC; &p < 0,05, vs. KOs.Sirt3KO + TAC); (D) Immunhistokjemiske fargingsbilder av kollagen I, kollagen III, TGF-β og α-SMA i hver gruppe (bar = 20 μm); (E–H) kollagen I og kollagen III immunhistokjemisk farging statistisk analyse. (Resultatene er uttrykt som gjennomsnitt ± SEM, n = 5. Enveis ANOVA-testen ble brukt, og n representerer antall uavhengige eksperimenter. *p < 0,05 vs. WT + sham-gruppe; #p < 0,05 vs. WT + TAC-gruppe; &p < 0,05 vs. Sirt3 KO +).
Forskningsbegrensninger
Studiene oppsummert ovenfor bruker forskjellige prekliniske systemer, inkludert HFpEF-rotter, tafazzin-mangelfulle mus, gamle mus, kroniske søvnmangelmus og hjertemodeller med overbelastning av trykk. Resultater fra disse modellene er ikke direkte utskiftbare, og forskjeller i arter, sykdomsmodell, eksponeringsplan, formulering, vevskontekst og målte endepunkter kan påvirke observasjonene som er rapportert. En studie fra 2026 som undersøkte PEG-modifisert SS31 beskrev rask renal eliminering og begrenset farmakokinetisk eksponering av umodifisert SS31 som formuleringsutfordringer, og illustrerer at distribusjon og eksponering også kan påvirke tolkningen av prekliniske resultater.[6]
Elamipretide er også den aktive ingrediensen i det FDA-godkjente reseptbelagte legemidlet Forzinity, som fikk akselerert godkjenning i 2025 for en spesifikk Barth-syndromindikasjon og medikamentprodukt. Denne godkjenningen gjelder den godkjente Forzinity-formuleringen og merket bruk og etablerer ikke ekvivalens, sikkerhet, effekt eller godkjent status for uavhengig levert SS-31-forskningsmateriale.[1,9]
COCER Peptides presenterer SS-31 utelukkende for laboratorieforskning og analytisk bruk. Den er ikke beregnet på human eller veterinær bruk. Forskningen beskrevet ovenfor oppsummerer funn rapportert i tredjepartspublikasjoner og representerer ikke et krav angående klinisk ytelse, sikkerhet, effekt, diagnose, behandling eller godkjent bruk av COCER Peptides materiale.


